01
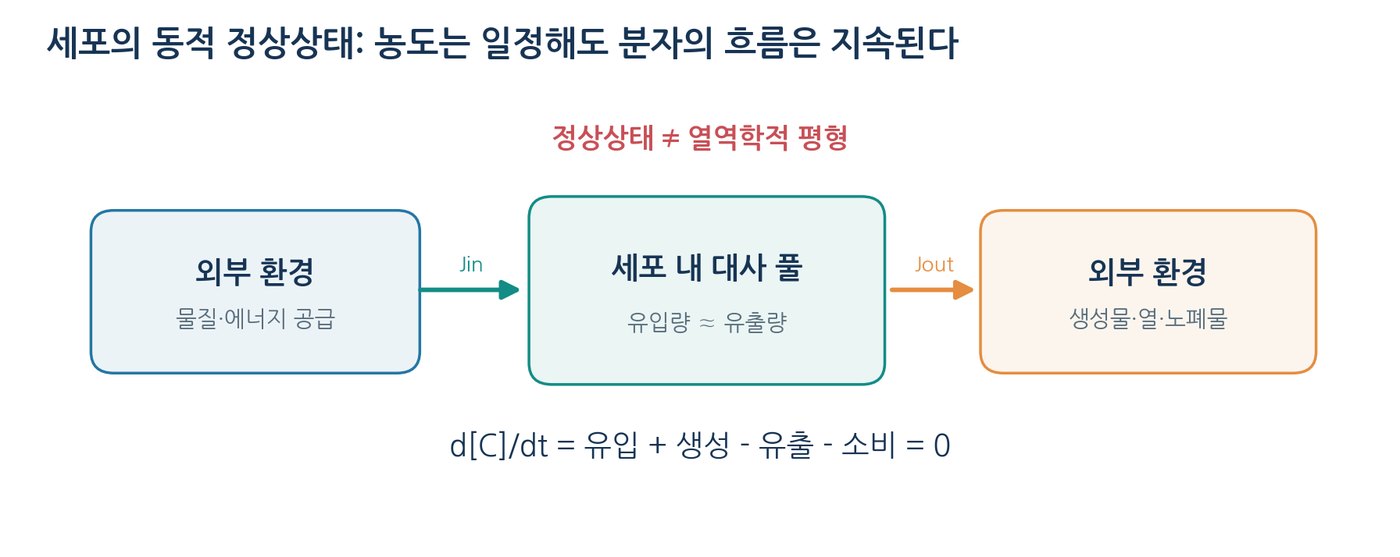
생물은 동적 정상상태로 존재하며 주변 환경과 평형을 이루지 않는다
- 세포 = 물질과 에너지를 주위와 교환하는 열린계, 막은 선택적 경계
- 정상상태 = 농도가 일정해 보여도 반응·이동은 계속되는 상태 / 평형 = 순구동력 ΔG가 0
- 물질수지 d[C]/dt = J유입 − J유출 + v생성 − v소비, d[C]/dt = 0이어도 각 항은 0이 아님
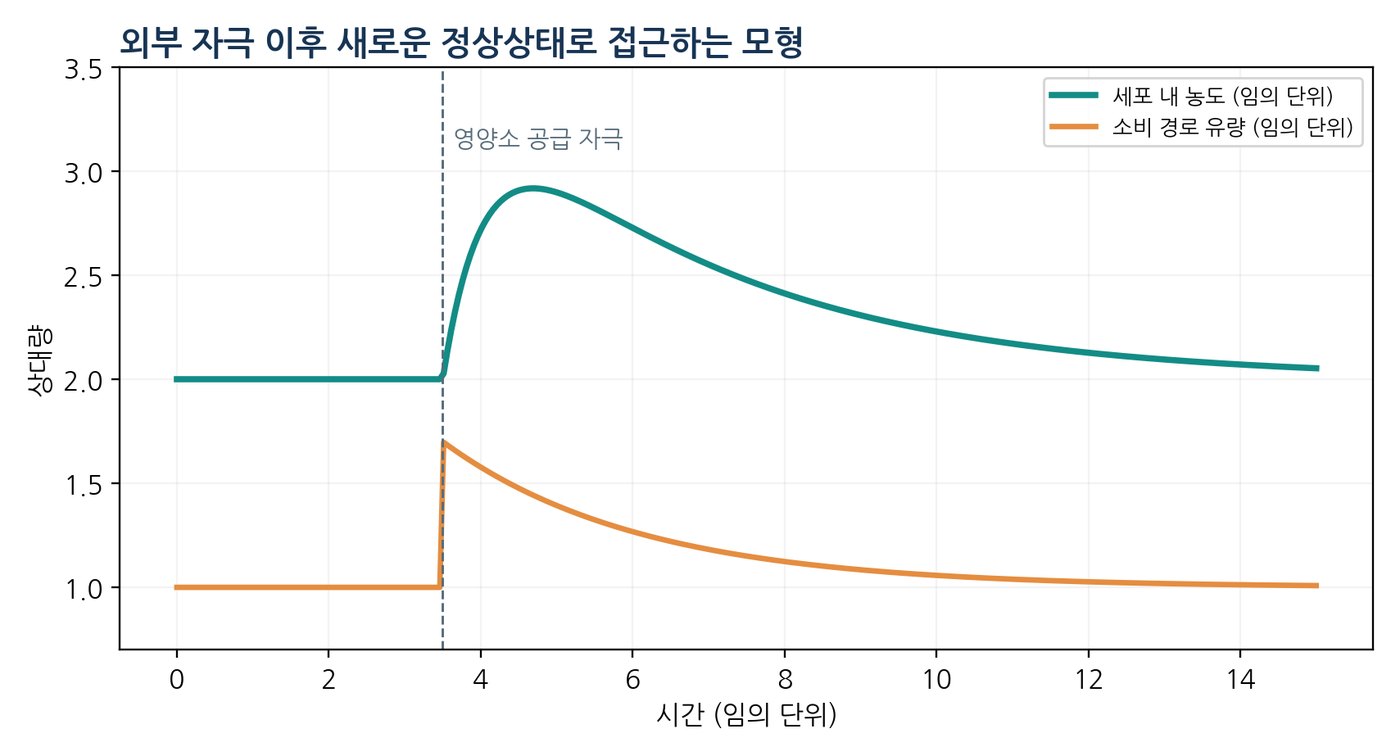
- ATP 생성 8·소비 8이면 농도 유지, 소비가 11로 늘면 −3mmol·L⁻¹·min⁻¹로 감소 후 조절로 새 정상상태 도달
- 항상성은 조절의 성질을, 정상상태는 그 결과로 관측되는 시간적 안정성을 기술
물질수지: d[C]/dt = J유입 − J유출 + v생성 − v소비
02
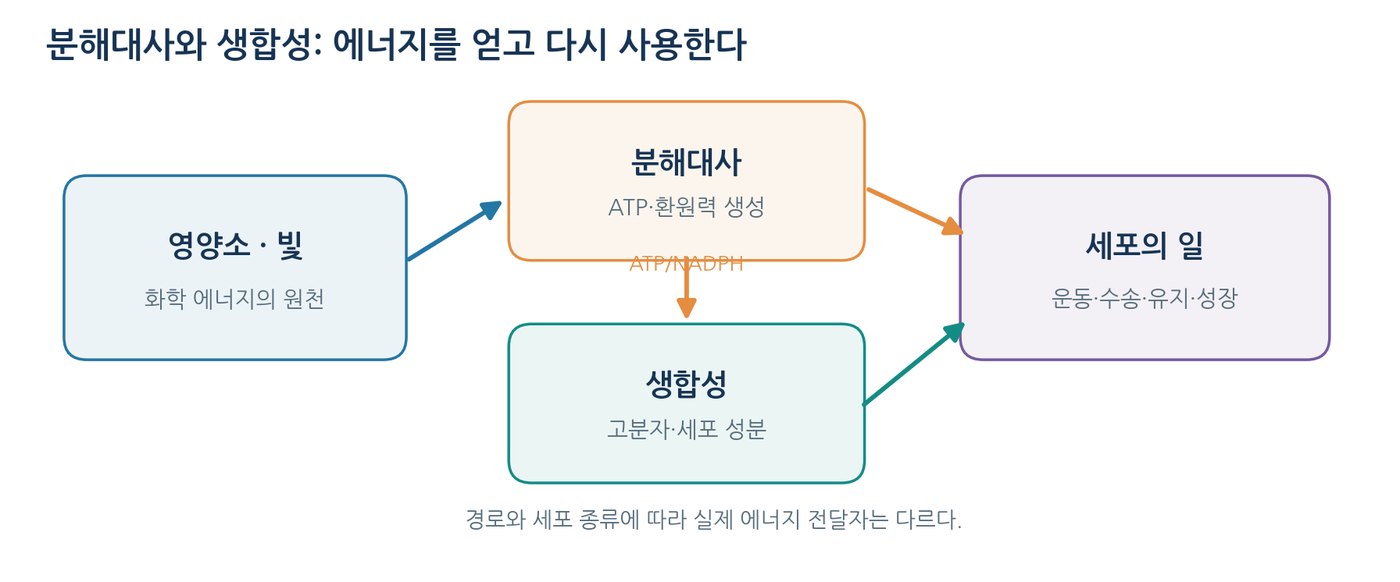
생물은 주위에서 얻은 에너지와 물질을 변환시킨다
- 분해대사 = 복잡 분자 분해로 전구체·에너지·환원당량 확보(해당과정·β산화)
- 동화대사 = ATP와 NADPH를 소비해 세포 성분 합성
- 열역학 제1법칙 ΔU = q + w, 생체는 열린계이므로 물질 이동 동반 에너지까지 포함해야 함
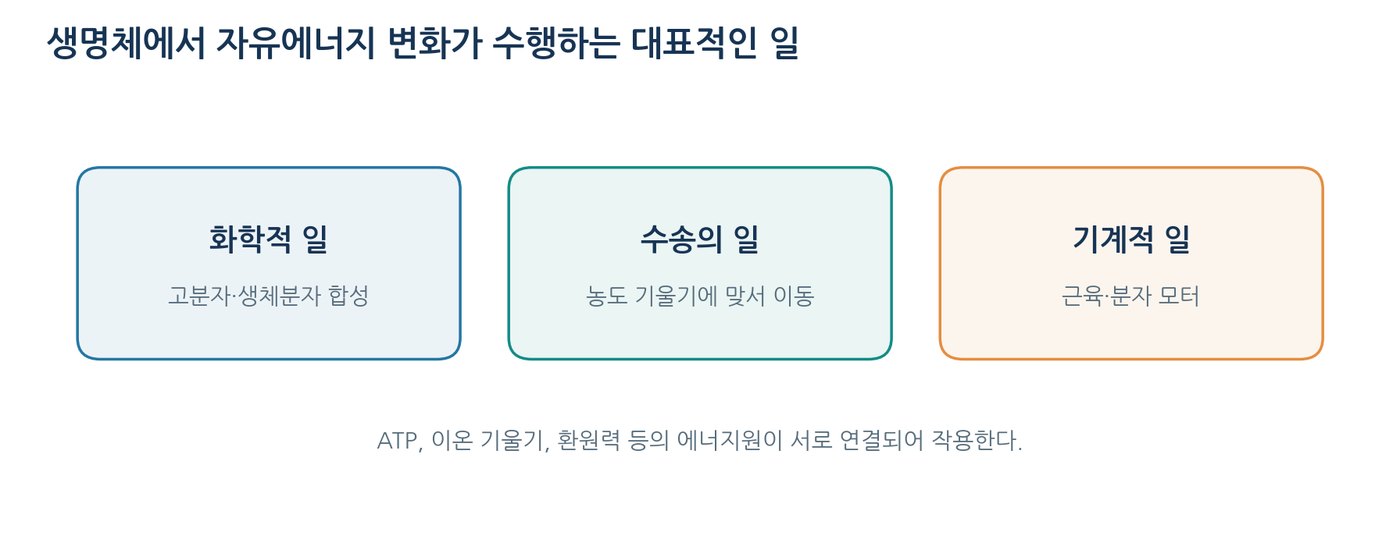
- 생명체의 일 3형태 = 화학적 일(합성), 수송의 일(기울기 역행), 기계적 일(수축·모터)
열역학 제1법칙(닫힌계): ΔU = q + w
03
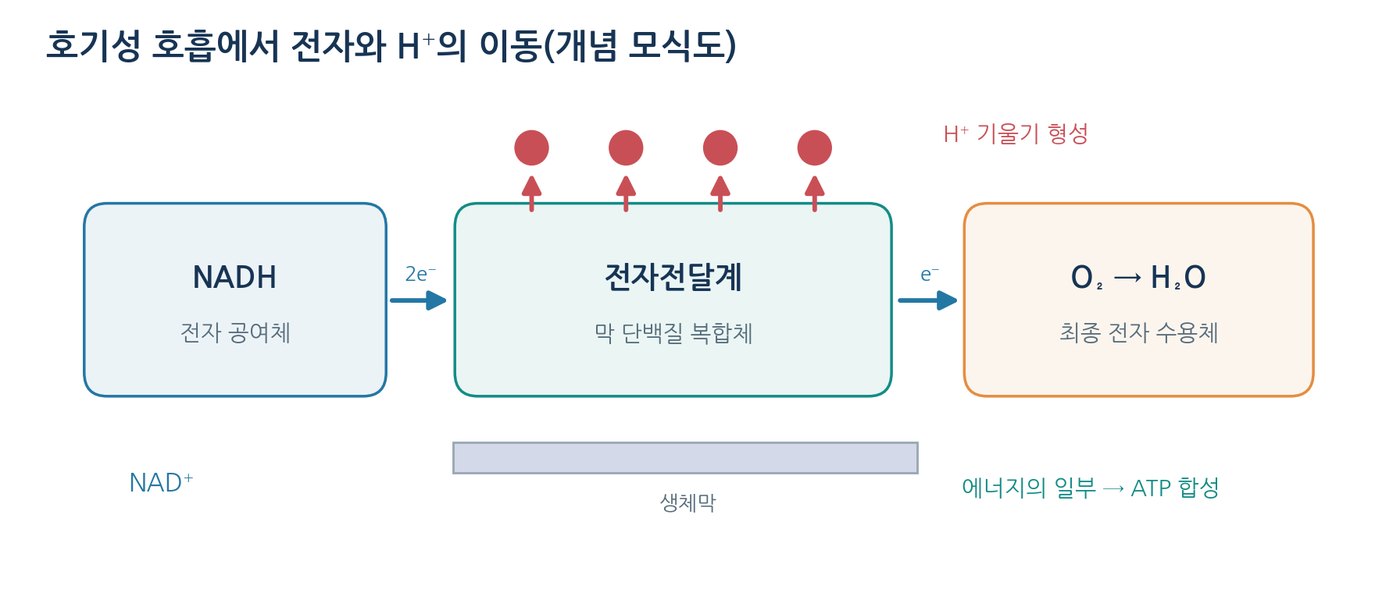
전자의 흐름이 생명체에 에너지를 제공한다
- 산화 = 전자 잃음, 환원 = 전자 얻음, 공여체는 산화되고 수용체는 환원
- 전자는 NAD⁺/NADH·FAD·퀴논·철-황·사이토크롬 같은 운반체를 따라 이동
- 전자전달계가 H⁺를 막 한쪽으로 이동시켜 전기화학적 기울기(양성자 구동력) 형성
- ATP 합성효소가 H⁺ 이동과 ADP+Pi → ATP 합성을 연결
- ΔG°′ = −nFΔE°′, ΔE°′ = E°′(수용체) − E°′(공여체)
- NADH(−0.32V)→O₂(+0.82V): ΔE°′ = +1.14V, ΔG°′ ≈ −220kJ/mol(이론값, 전부 ATP로 전환되지 않음)
산화: 전자 방출 | 환원: 전자 획득
ΔG°′ = −nFΔE°′ ; ΔE°′ = E°′(수용체) − E°′(공여체)
04
[별도 설명 1-3] 엔트로피: 질서의 파괴가 주는 이점
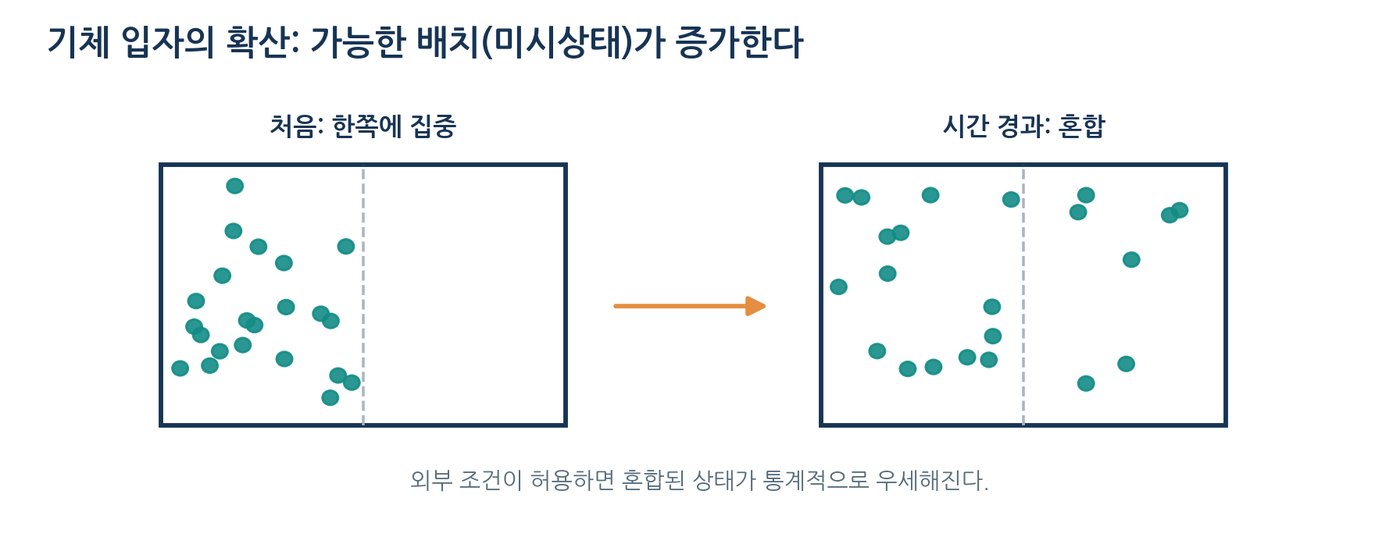
- 엔트로피 = 주어진 거시 상태를 만드는 미시상태 수의 척도, S = kB ln Ω
- 열·혼합·농도 변화·자유도 변화가 엔트로피에 영향
- 제2법칙 = ΔS전체 = ΔS계 + ΔS주위 ≥ 0
- 세포가 내부 질서를 유지해도 영양소 소비·열·노폐물 배출로 주위 엔트로피가 증가 → 법칙 위반 아님
- ΔS계 부호만으로 자발성을 판단하면 오류, 전체 ΔS 또는 ΔG로 판단
- 혼합은 자연히 일어나지만 분리는 일(자유에너지 공급)이 필요
볼츠만 식: S = kB ln Ω
ΔS전체 = ΔS계 + ΔS주위 ≥ 0 (고립된 전체의 자발 과정)
05
질서를 생성하고 유지하려면 일과 에너지가 필요하다
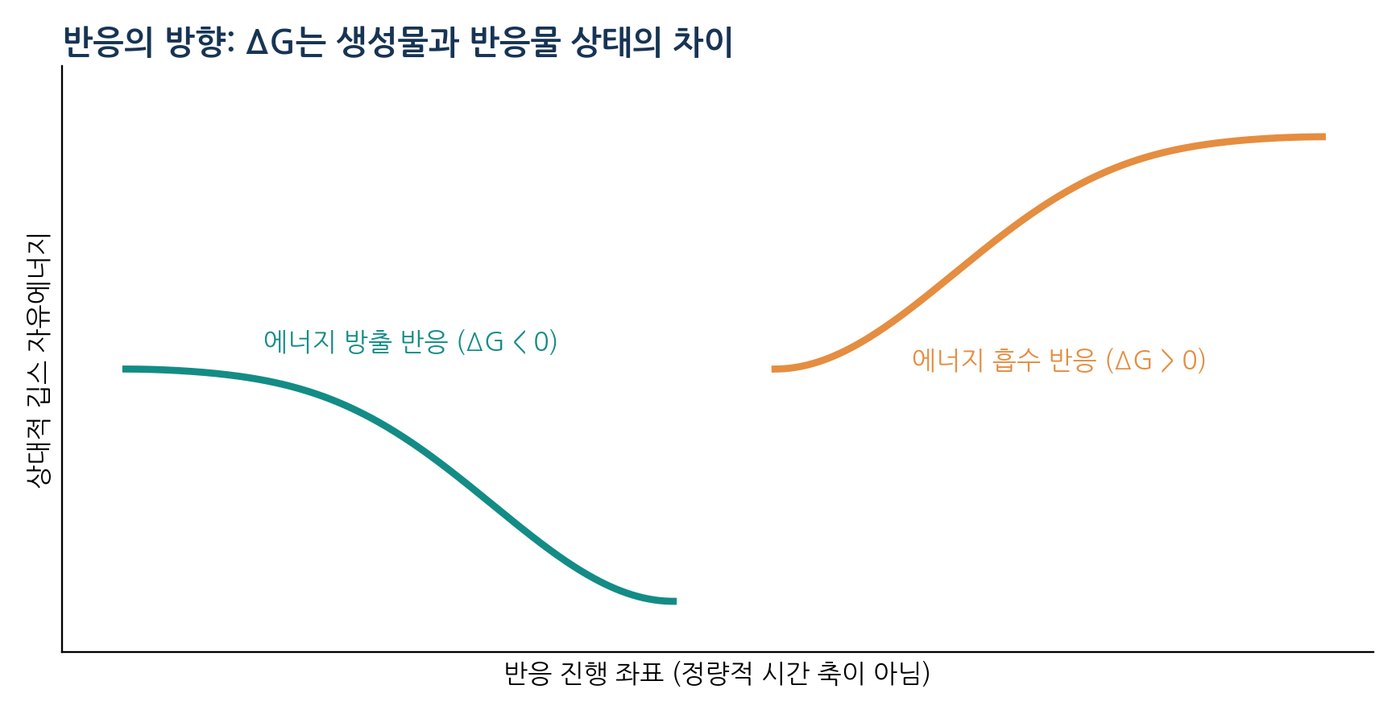
- ΔG = ΔH − TΔS, ΔG<0이면 정반응 유리, >0이면 역반응 유리, =0이면 평형
- 발열(ΔH<0)과 자발성은 다름 → 엔트로피 항까지 함께 판단
- ΔH=+20kJ/mol·ΔS=+0.10kJ·mol⁻¹·K⁻¹ → 298K에서 ΔG ≈ −9.8kJ/mol(흡열이지만 유리)
- ΔH=−30.0·ΔS=−50.0J·mol⁻¹·K⁻¹ → 298K에서 ΔG = −15.1kJ/mol, 온도가 오르면 −TΔS가 양으로 커져 유리함 감소
ΔG = ΔH − TΔS (일정한 온도·압력, 조성 변화의 해석)
06
에너지 짝짓기는 생물의 반응들과 연결되어 있다
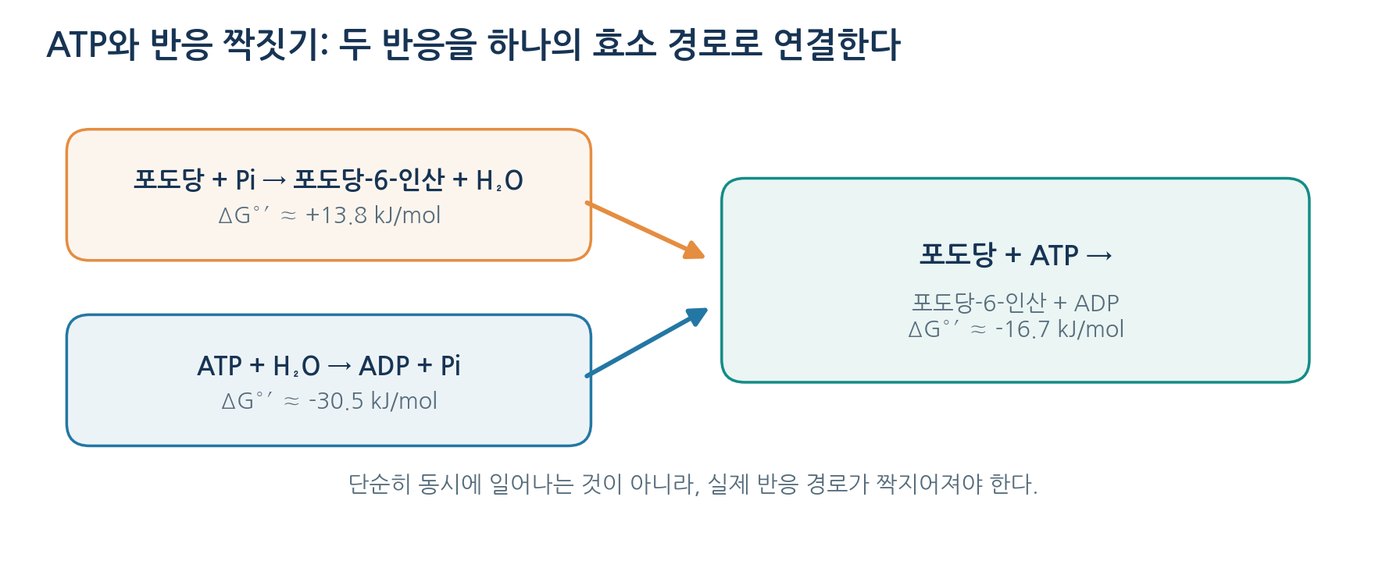
- ΔG>0 반응은 공통 중간체·구조 변화를 통해 유리한 반응과 짝지어야 진행
- 짝지어진 경로에서 ΔG전체 = ΔG₁ + ΔG₂ (단순히 같은 용기에 있다고 더해지지 않음)
- 헥소키네이스가 ATP의 인산기를 포도당에 전달해 전체 경로를 유리하게 만듦
- ATP 가수분해 ΔG°′ ≈ −30.5kJ/mol(25°C 근사), 실제 값은 농도·Mg²⁺·이온강도에 의존
- ‘결합을 끊으면 에너지가 나온다’는 설명은 부정확 → 생성물의 안정화 효과까지 포함한 순변화
- ATP 외 통화: H⁺ 전기화학 기울기, NADPH 환원력, Na⁺/H⁺ 공동·역수송
짝지어진 전체 반응: ΔG전체 = ΔG₁ + ΔG₂
07
K′eq와 ΔG°′는 자발적으로 진행되는 반응의 경향을 나타내는 척도다
- ΔG°′ = 생화학적 표준상태(pH 7 고정)의 값, ΔG = 실제 조건의 값
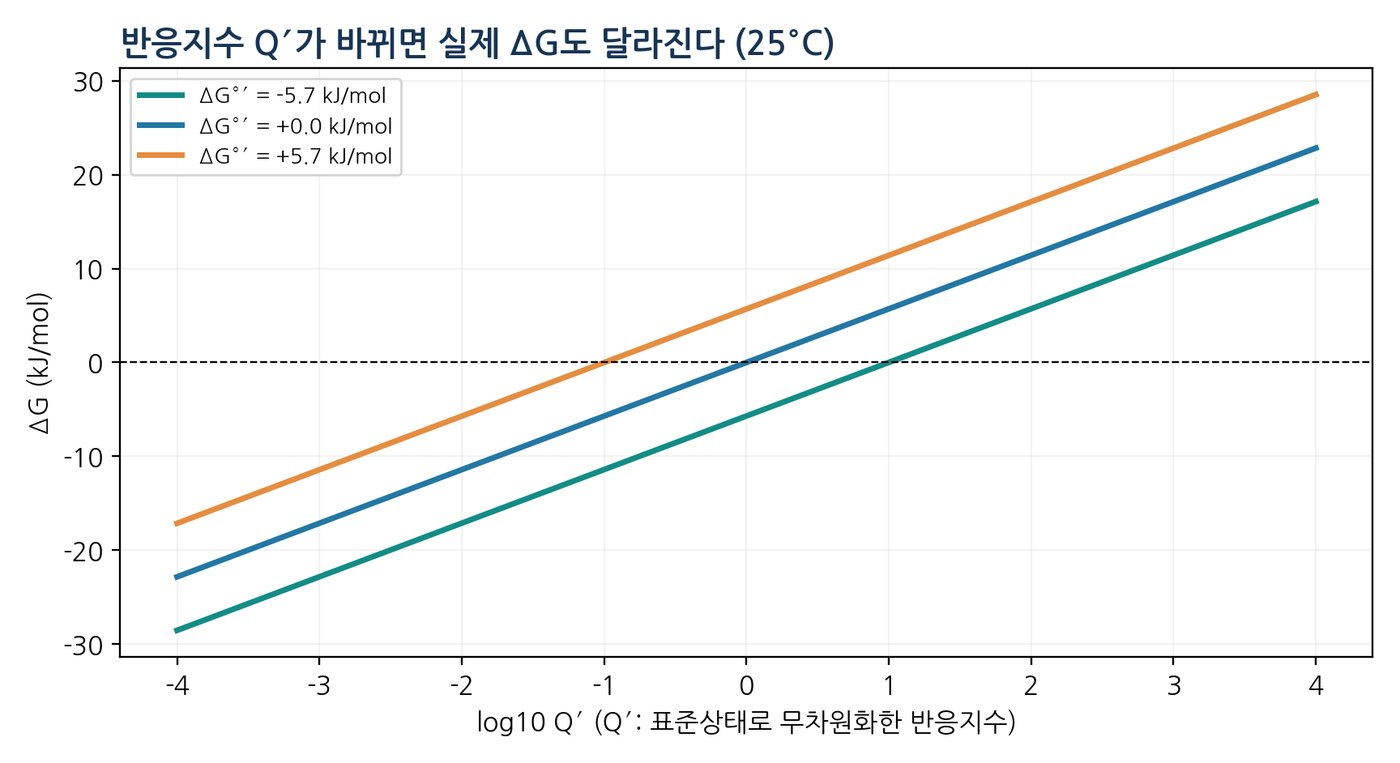
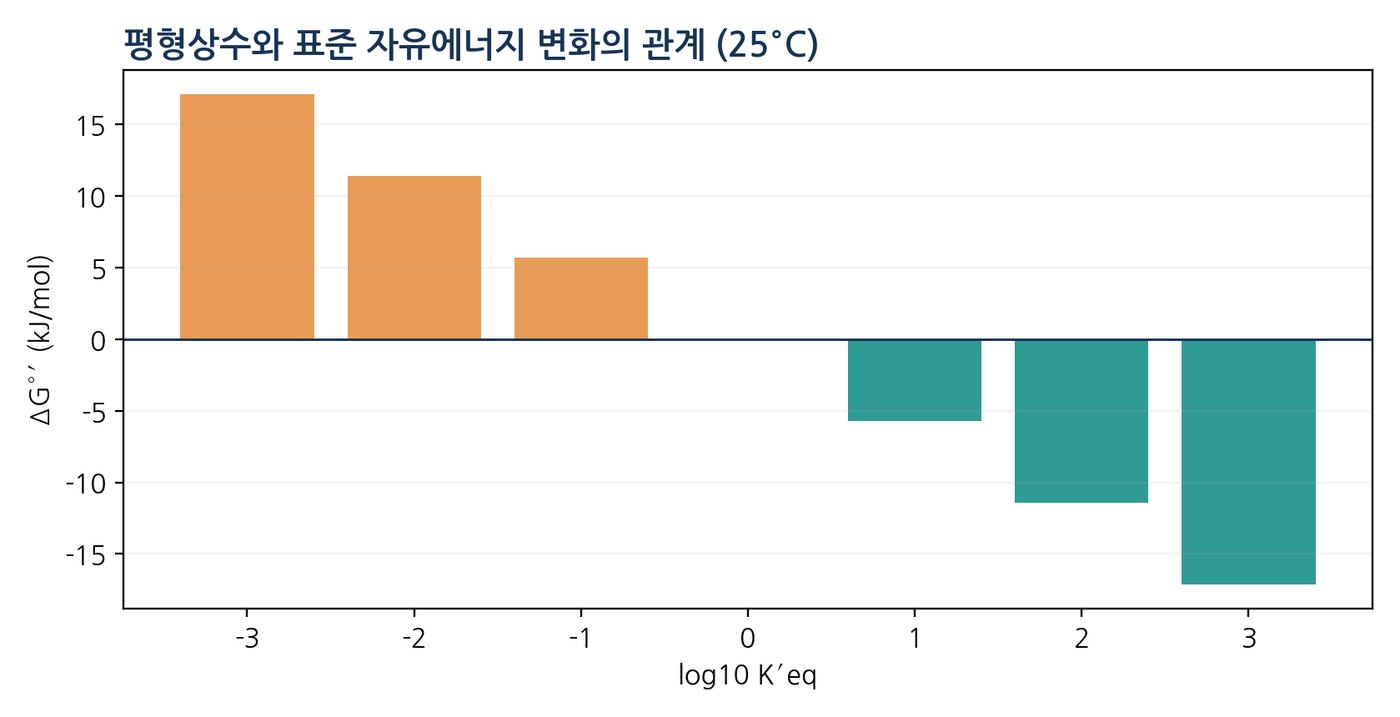
- ΔG = ΔG°′ + RT ln Q′, 평형에서 ΔG°′ = −RT ln K′eq
- 25°C에서 RT ≈ 2.479kJ/mol, RT ln10 ≈ 5.708kJ/mol → Q′가 10배 변하면 ΔG가 약 5.71kJ/mol 변함
- Q′ < K′eq이면 ΔG<0(정반응 유리), Q′ > K′eq이면 역반응 유리
- K′eq = 100 → ΔG°′ ≈ −11.42kJ/mol / ΔG°′ = +5.71 → K′eq ≈ 0.100
- ΔG°′ = +5.71에 Q′ = 0.010이면 ΔG ≈ −5.71kJ/mol → 표준조건에서 불리해도 실제로는 정반응 진행
- 흔한 오류: K′eq를 속도상수로 착각, ln 대신 log10 사용, 계수를 2배로 쓰면 ΔG°′도 2배·K′eq는 제곱
ΔG = ΔG°′ + RT ln Q′
평형에서: ΔG = 0, Q′ = K′eq ⇒ ΔG°′ = −RT ln K′eq
08
효소가 일련의 여러 가지 화학 반응을 촉진한다
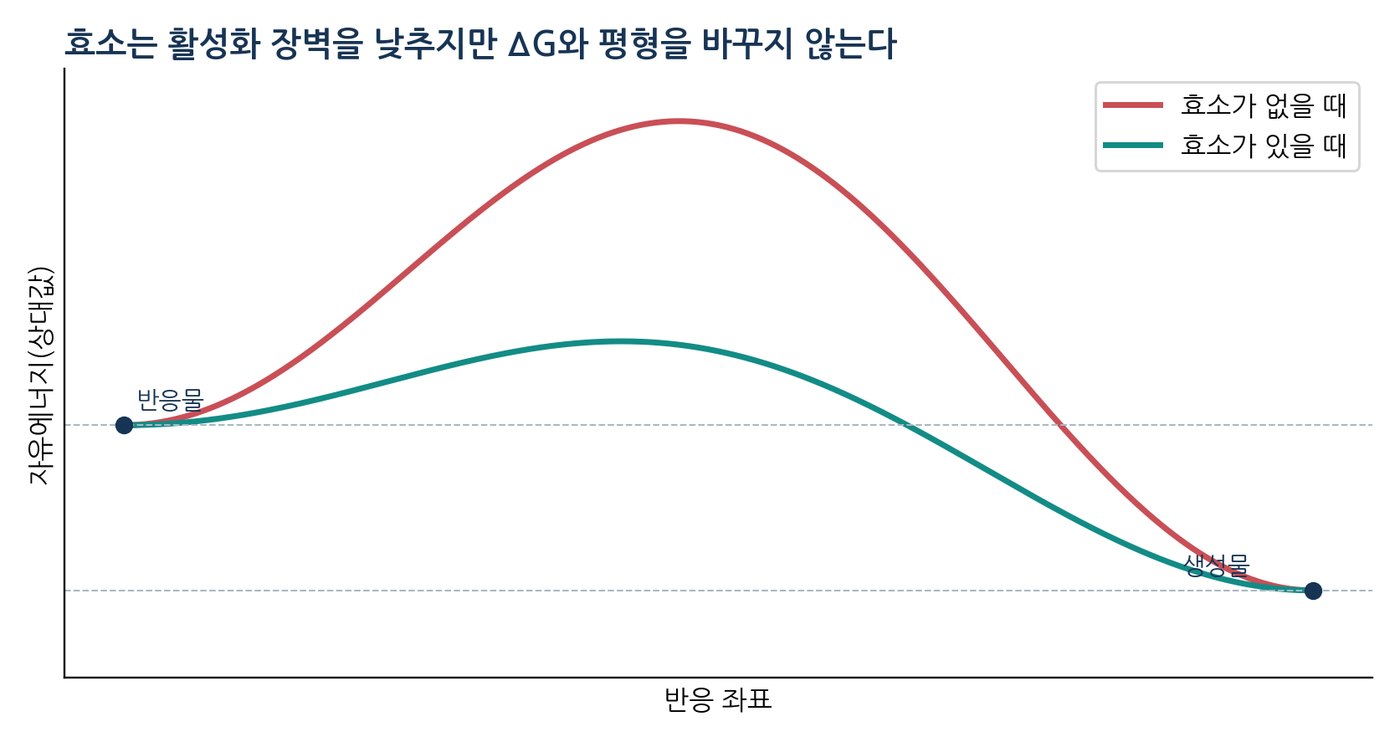
- 효소 = 전이상태를 안정화해 활성화 자유에너지 ΔG‡를 낮추는 생체 촉매, ΔG와 K′eq는 바꾸지 않음
- 정반응·역반응을 함께 촉진하므로 평형 위치는 그대로
- 활성 부위가 기질을 결합하고 작용기를 근접 배치, 정전기·수소결합·산염기·공유·금속이온 촉매를 조합
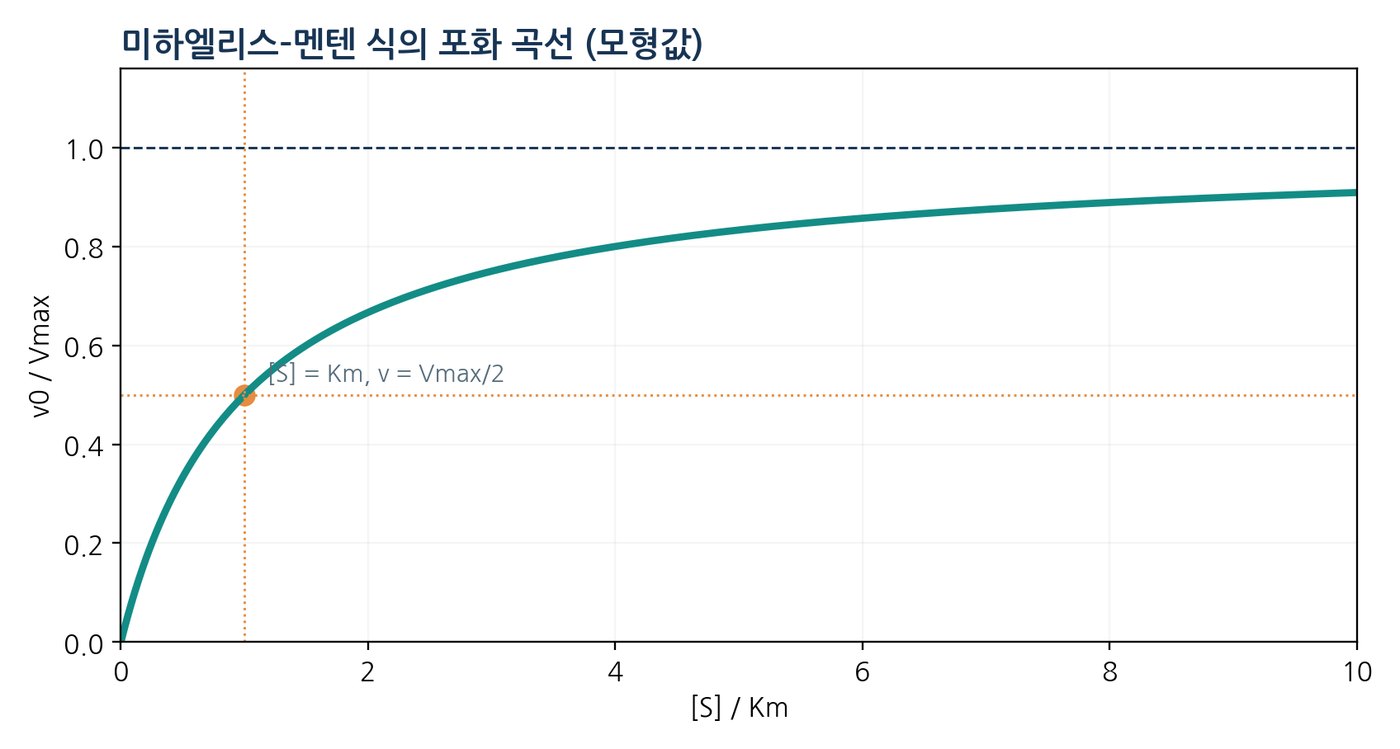
- 미하엘리스-멘텐 v₀ = Vmax[S]/(Km+[S]), Km은 v₀ = Vmax/2가 되는 [S]
- Km을 무조건 결합 친화도로 해석하면 오류(결합·해리·촉매 전환 속도상수의 조합)
- A→B→C 경로에서 병목은 각 효소 활성·기질 공급·생성물 제거에 따라 결정되므로 ‘첫 효소가 항상 속도결정단계’라는 일반화는 부적절
v₀ = Vmax[S] / (Km + [S])
09
대사는 균형과 경제성을 유지하도록 조절된다
- 조절의 목적 = 과잉 생산의 자원 낭비와 부족에 의한 기능 제한을 동시에 피하는 것
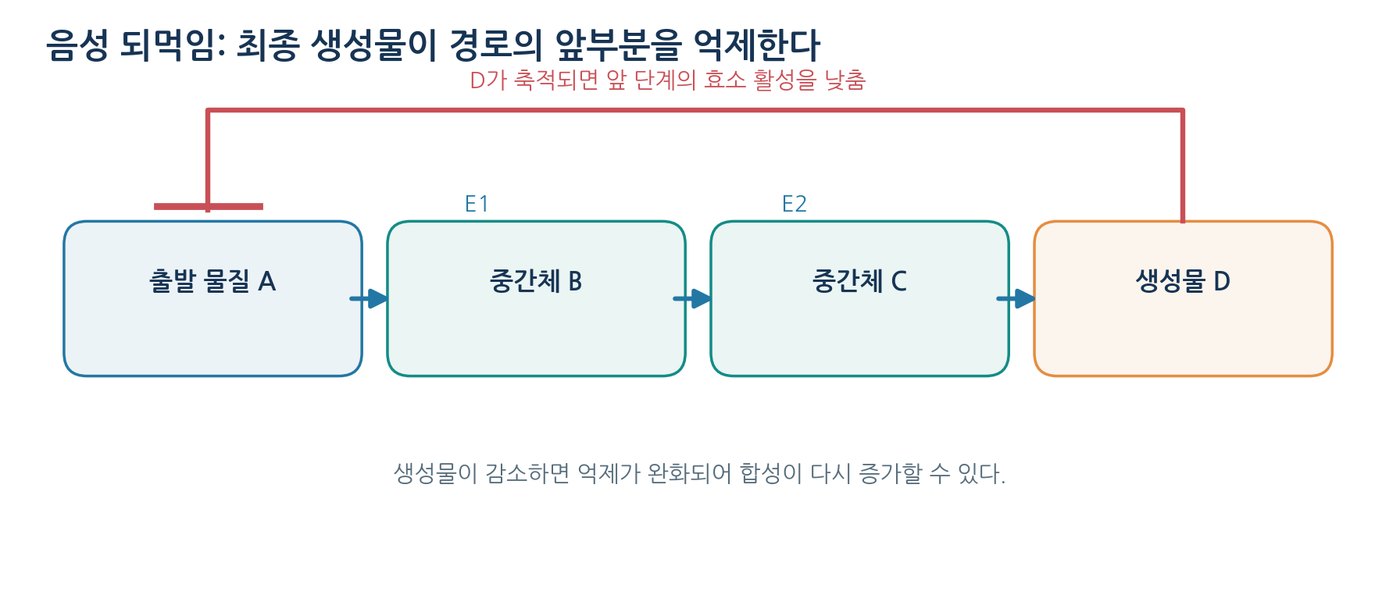
- 음성 되먹임 = 최종 생성물이 앞 단계 효소를 억제해 흐름을 낮춤
- 알로스테릭 조절 = 활성 부위가 아닌 곳에 결합해 구조·동역학을 변화
- 시간척도: 기질·생성물 농도(초~분) → 알로스테릭(매우 빠름) → 공유결합 변형(초~분) → 효소량 조절(분~시간)
- ATP/ADP/AMP 비는 에너지 상태를, NAD⁺/NADH는 산화환원 경향을, NADPH/NADP⁺는 환원적 생합성·항산화를 반영
- 실제 세포는 지연·진동·발달 단계 때문에 완벽한 정상상태를 유지하지 않음
참조 자료 · References
| 계의 종류 | 주위와의 교환 | 관련 예 |
|---|---|---|
| 열린계 | 물질과 에너지 모두 교환 | 살아 있는 세포, 식물의 잎 |
| 닫힌계 | 에너지는 교환하지만 물질은 교환하지 않음 | 밀폐 용기의 이상화된 화학 반응계 |
| 고립계 | 물질·에너지 교환이 없음 | 완전한 고립계는 이상적인 개념 |
| 비교 기준 | 분해대사 | 생합성 |
|---|---|---|
| 주된 기능 | 복잡한 분자를 분해하여 전구체·에너지 획득 | 작은 분자를 연결하여 필요한 세포 성분 제작 |
| 전자 전달자 | NAD⁺ → NADH 등 환원형 생성에 관여 | NADPH → NADP⁺ 등 환원력 소비에 관여 |
| 에너지 측면 | 전체 경로에서 유리한 반응들을 통해 ATP 생산과 연결 | ATP 등 에너지 투입과 반응 짝짓기 |
| 예 | 해당과정, 지방산 β-산화 | 단백질·지방산·핵산 생합성 |
| ΔG의 부호 | 반응 방향에 대한 해석 | 주의점 |
|---|---|---|
| ΔG < 0 | 현재 조성에서 정반응 방향이 유리함 | 반응 속도가 빠르다는 뜻은 아님 |
| ΔG = 0 | 평형: 정·역반응의 순구동력 0 | 분자 운동과 정·역반응은 지속 가능 |
| ΔG > 0 | 현재 조성에서 역반응 방향이 유리함 | 다른 반응과 짝지으면 전체 반응이 진행 가능 |
| 상태 | 반응지수 비교 | 자유에너지 | 유리한 방향 |
|---|---|---|---|
| 평형보다 반응물이 많음 | Q′ < K′eq | ΔG < 0 | 정반응 |
| 평형 조성 | Q′ = K′eq | ΔG = 0 | 순변화 없음 |
| 평형보다 생성물이 많음 | Q′ > K′eq | ΔG > 0 | 역반응 |
| [S] / Km | v₀ / Vmax | 해석 |
|---|---|---|
| 0.25 | 0.200 | 낮은 기질 농도, 기질 증가 효과 큼 |
| 0.50 | 0.333 | 기질 농도 증가에 민감 |
| 1.00 | 0.500 | Km은 반최대속도에 해당 |
| 2.00 | 0.667 | 포화로 접근 |
| 4.00 | 0.800 | 추가 증가 효과 감소 |
| 10.00 | 0.909 | Vmax에 가까워짐 |
| 조절 방식 | 시간척도(대략) | 주된 특징 |
|---|---|---|
| 기질·생성물 농도 변화 | 초~분 | 반응지수와 속도의 즉각적 변화 |
| 알로스테릭 결합 | 매우 빠름 | 효소 활성의 가역적 전환 |
| 가역적 인산화 등 공유결합 변형 | 초~분 | 효소 활성·상호작용 변화 |
| 전사·번역을 통한 효소량 조절 | 분~시간 이상 | 대사 용량의 비교적 장기적 변화 |
| 소기관·세포 구획화 | 지속적 + 동적 | 반응물 접근과 경로 간 분리·연결 |
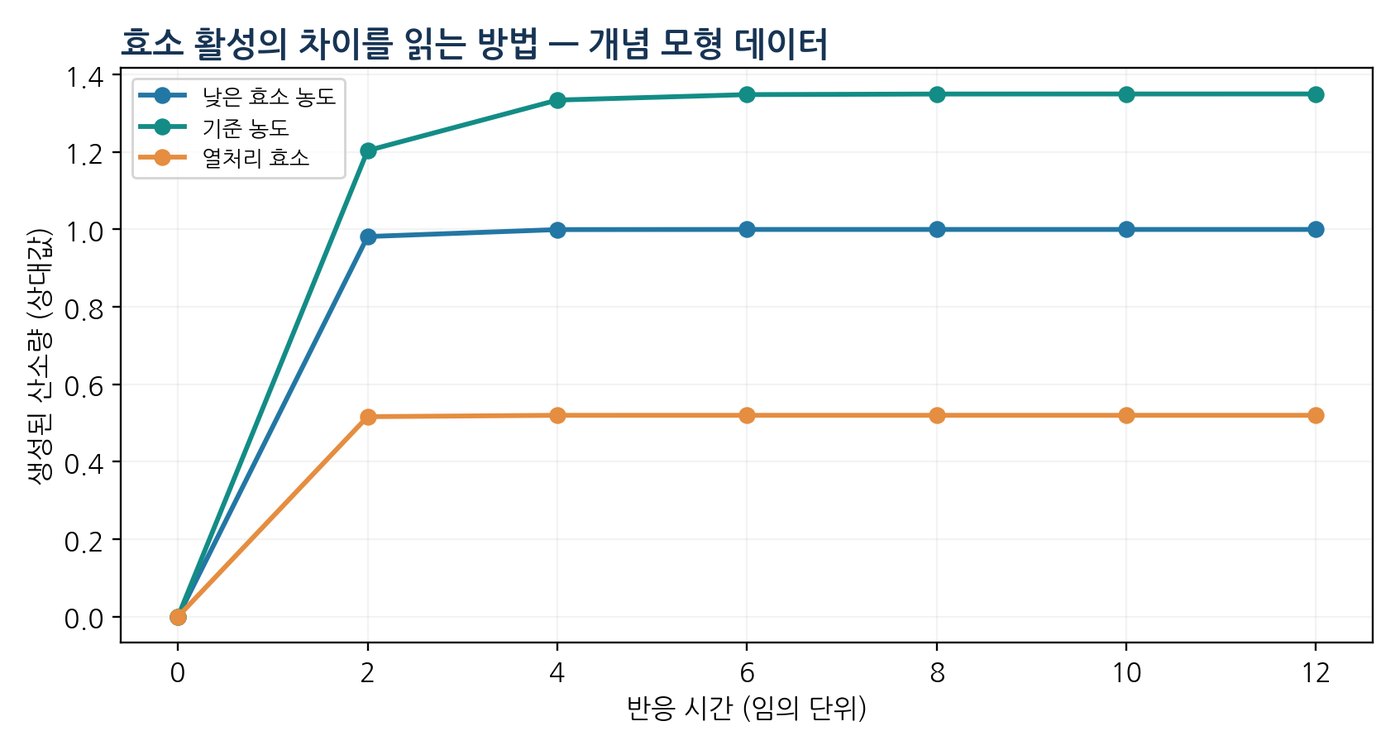
| 조건 | 1회 초기속도 | 2회 초기속도 | 3회 초기속도 | 평균 | 해석 |
|---|---|---|---|---|---|
| A: 기준 | |||||
| B: 효소량 증가 | |||||
| C: 열처리 |
| Q′ | ln Q′ | RT ln Q′ (kJ/mol) | ΔG (kJ/mol) | 정반응 방향 |
|---|---|---|---|---|
| 0.001 | −6.908 | −17.12 | −11.41 | 유리 |
| 0.010 | −4.605 | −11.42 | −5.71 | 유리 |
| 0.100 | −2.303 | −5.71 | 0.00 | 평형에 해당 |
| 1.000 | 0.000 | 0.00 | +5.71 | 불리 |
| 10.000 | +2.303 | +5.71 | +11.42 | 불리 |
2027학년도 고등학교 전문교과 · 생화학 · 박상일(아산고등학교) · 본 인쇄물의 참조 자료는 본문 뒤 부록으로 이어집니다.