01
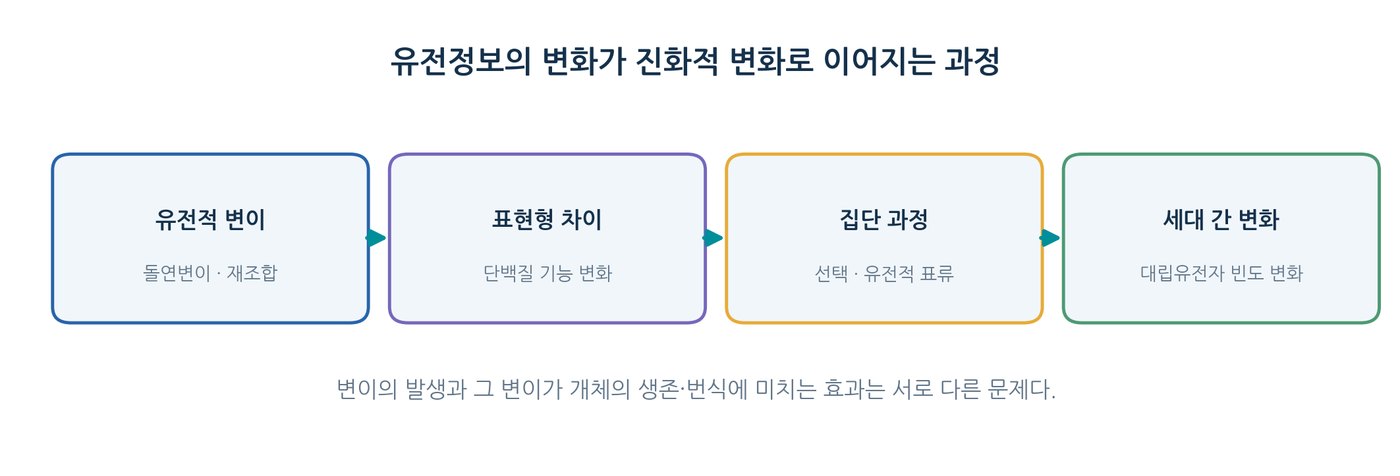
유전자 지령의 변화에 의하여 진화가 발생한다
- 진화 = 세대에 따라 집단의 유전적 구성이 변하는 현상
- 변이 원천 = 치환·삽입·결실·복제수 변이·염색체 구조 변화, 감수분열 재조합, 수평적 유전자 이동
- 변이가 반드시 단백질 변화를 일으키지는 않음(동의치환·조절부위 변화)
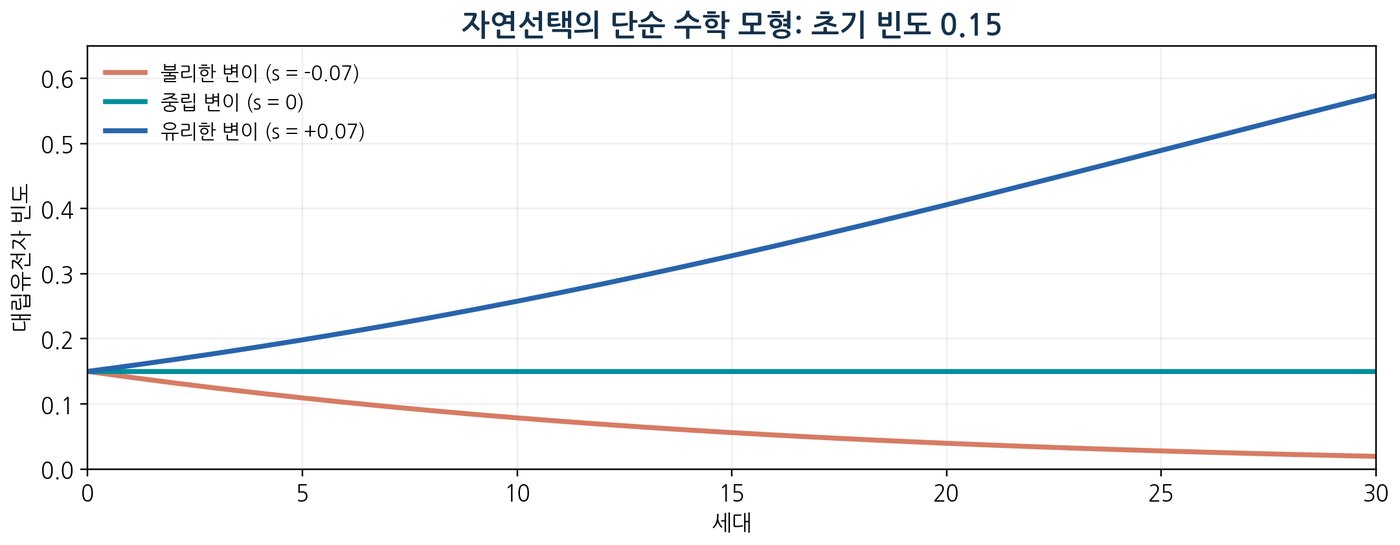
- 자연선택 = 유전 가능한 형질 차이가 번식 성공 차이와 연결될 때 작동
- 유전적 표류 = 적합도와 무관하게 유한 집단에서 우연히 빈도가 변함
- 선택 모형 p′ = p(1+s)/(1+ps), p=0.20·s=0.10 → p′ ≈ 0.216(세대당 약 0.016 증가)
- 돌연변이는 미래에 유리해질 것을 예측해 발생하지 않음
02
생체분자는 처음에 화학적 진화에 의하여 생겼다
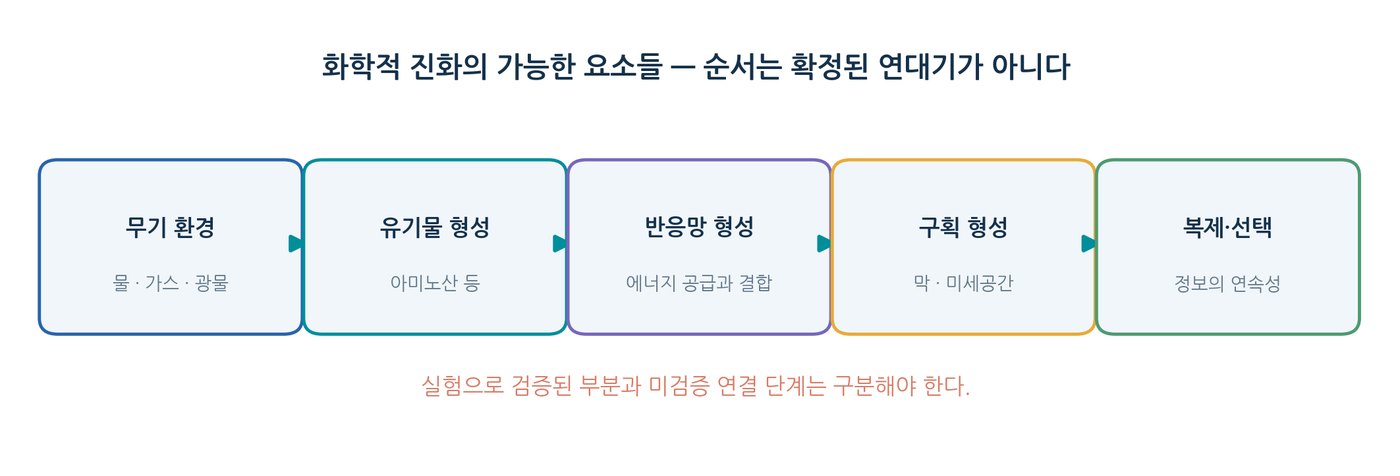
- 화학적 진화 = 생명 없는 조건에서 유기분자·복잡 반응계가 형성되고 일부가 복제·선택을 획득했을 가능성
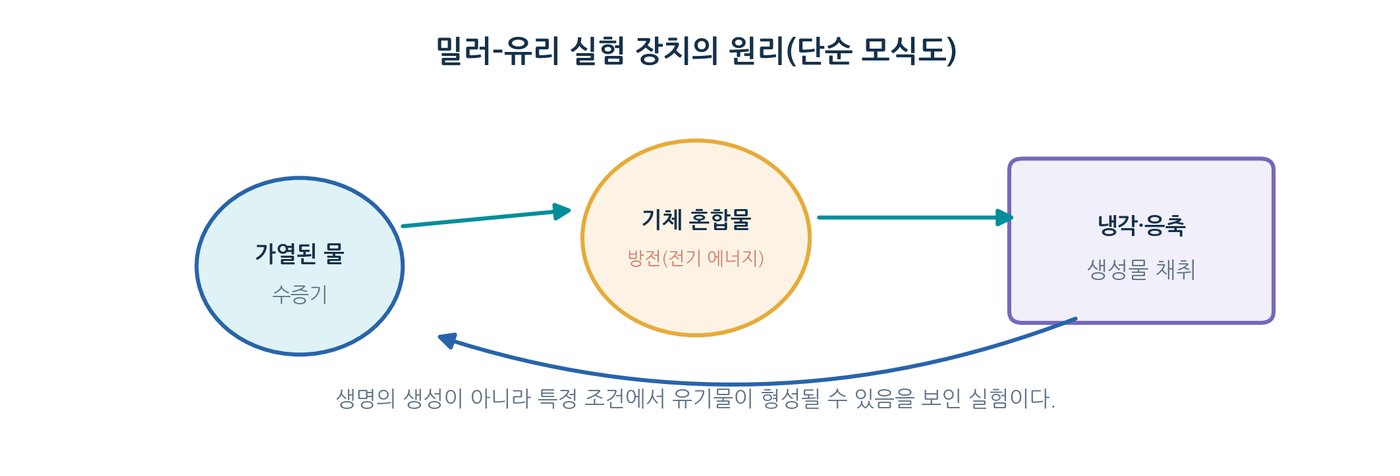
- 밀러-유리(1953) = 물과 단순 기체에 전기 방전 → 아미노산 등 유기물 생성
- 이 실험이 입증한 것 = 무생물 조건에서 유기분자 합성 가능 / 입증하지 못한 것 = 초기 대기 조성과 실제 경로
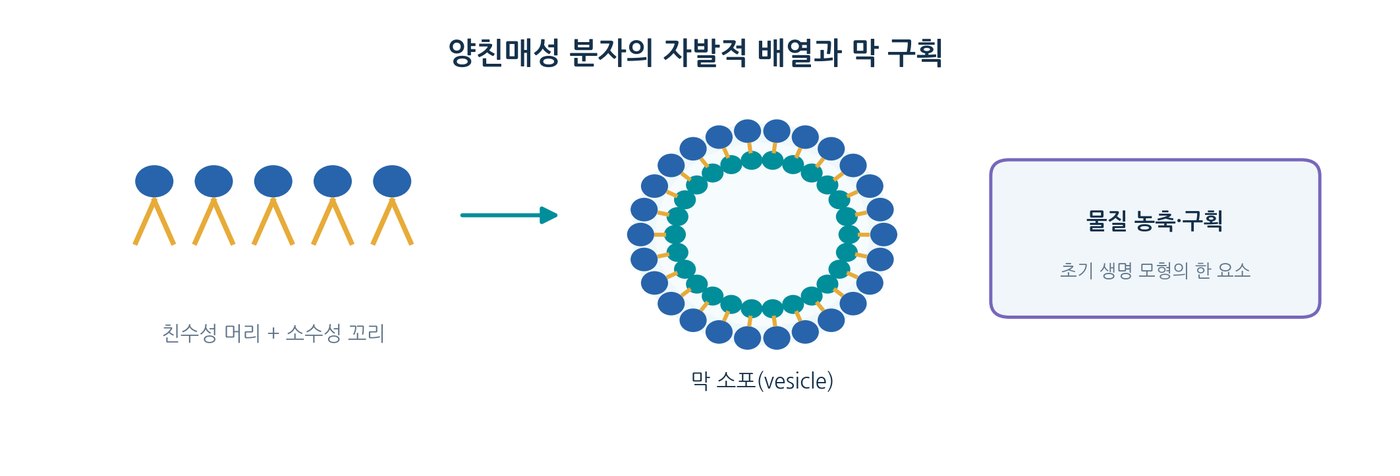
- 양친매성 분자는 미셀·소포를 형성해 구획을 만들고 반응물을 농축
- 막 형성만으로 유전과 대사가 생기지는 않음 → 복제·에너지 공급·성장·분열의 결합이 별개 조건
03
RNA와 그 전구체들이 최초의 유전자 및 촉매일지도 모른다
- 현대 세포의 역할 분담: DNA 저장, 단백질 촉매, RNA 전달·조절
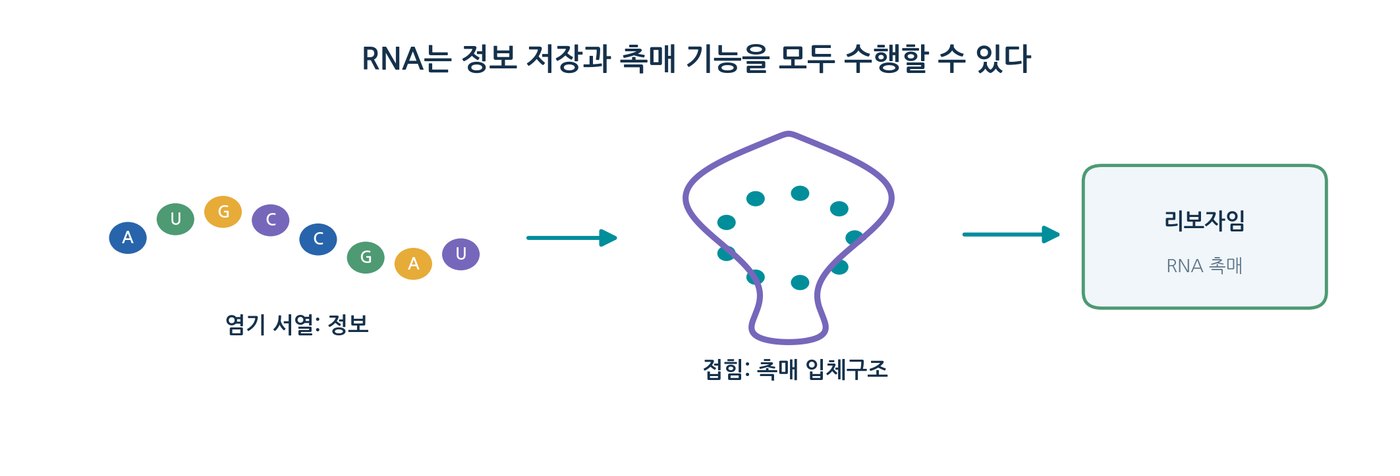
- RNA 세계 가설 = RNA가 정보 저장과 촉매를 동시에 담당했을 것이라는 제안
- 리보자임(체크의 자기 스플라이싱 RNA, 올트먼의 RNase P)이 RNA 촉매 능력을 실증, 1989년 노벨 화학상
- 리보솜의 펩타이드 결합 중심이 rRNA → RNA 촉매의 현존 증거
- 미해결: 활성 뉴클레오타이드 공급, 긴 사슬 안정성, 복제 오류 제어, 가수분해 저항, 막·에너지 대사와의 결합
- RNA 이전 단계로 다른 고분자·짧은 펩타이드·광물 촉매 가능성도 열려 있음
04
생물의 진화는 35억 년 이상 전부터 시작되었다
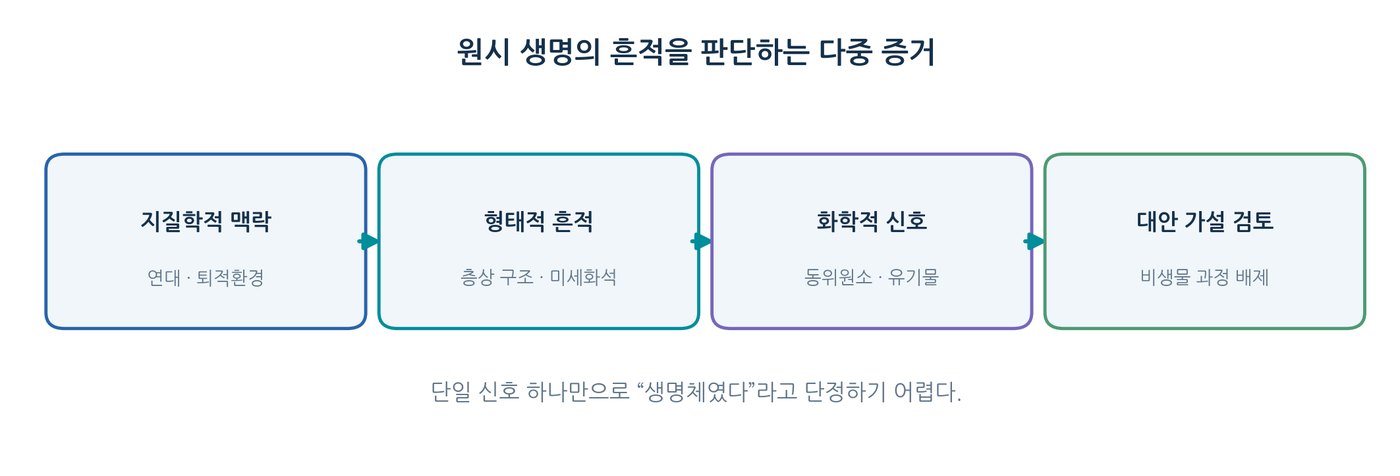
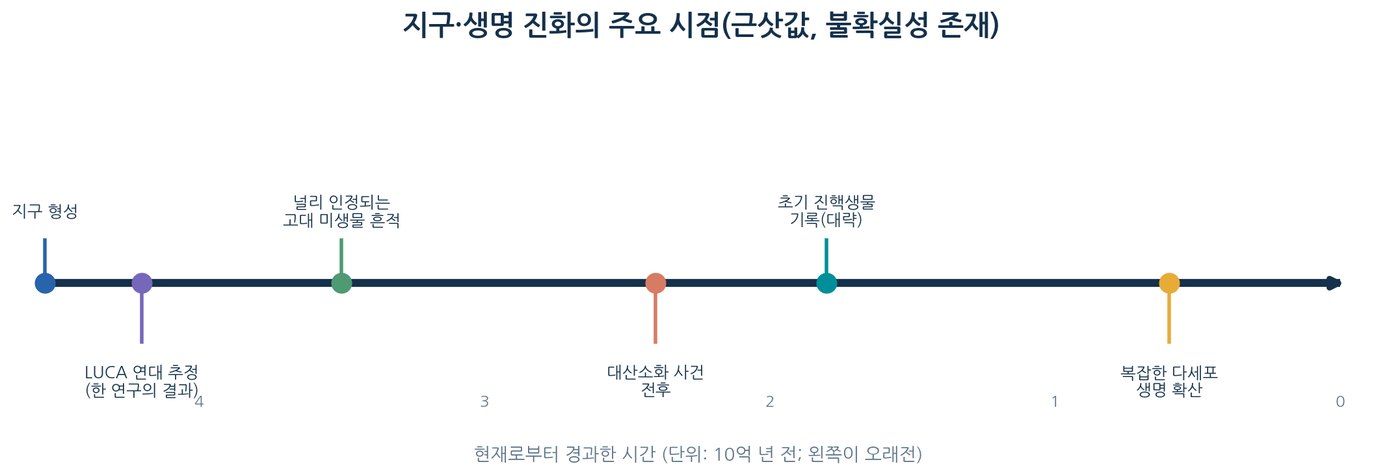
- 지구 형성 ≈ 45.4억 년 전, 약 35억 년 전 스트로마톨라이트·미생물 흔적이 비교적 확실한 초기 생명 증거
- 37억 년 전 보고는 비생물 구조·변형·오염 여부를 두고 논쟁 중
- 해석의 강도는 스트로마톨라이트 층상 구조·미세화석 형태·탄소 동위원소 분별·유기분자 조성·지질학적 환경의 일치에 좌우
- 분자시계 = 서열 차이·진화속도·화석 교정점으로 분기 시점을 통계 추정, 속도 불균일과 수평 이동으로 불확실
- LUCA는 최초 세포가 아니라 모든 현대 생물의 마지막 공통 조상, 2024년 연구는 약 42억 년 전(40.9~43.3억)으로 추정
- 교과 수준 결론 = 최소한 35억 년 전에 생명이 존재
05
최초의 세포는 아마 무기 연료를 사용하였을 것이다
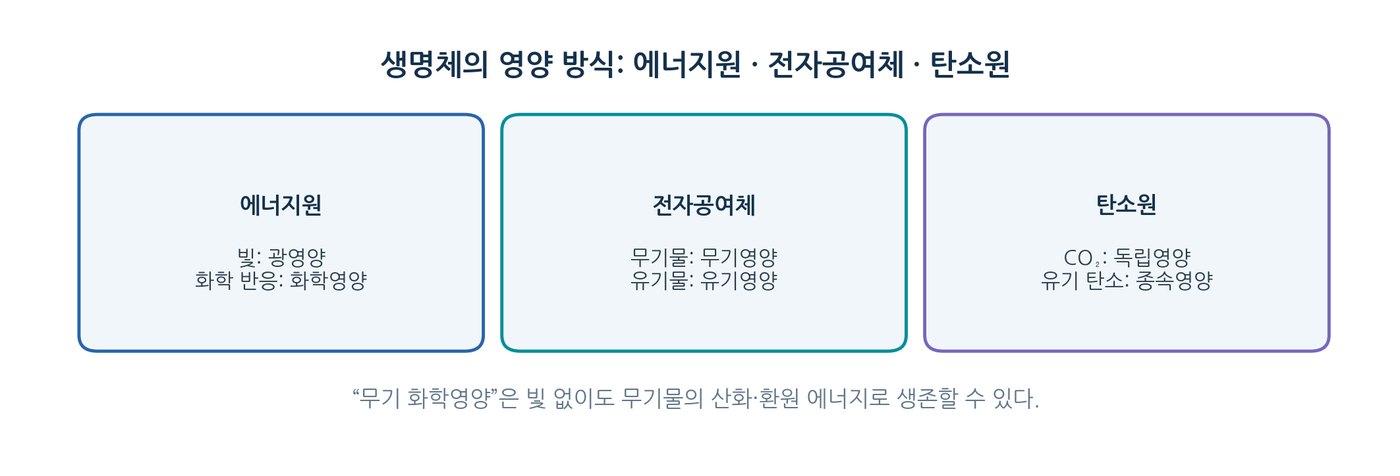
- 광합성은 빛으로 전자를 들뜨게 해 에너지 보존 반응을 구동, 화학영양생물은 산화·환원의 자유에너지 이용
- 무기화학영양생물 = H₂·H₂S·Fe²⁺·NH₃ 등 무기 전자공여체 사용
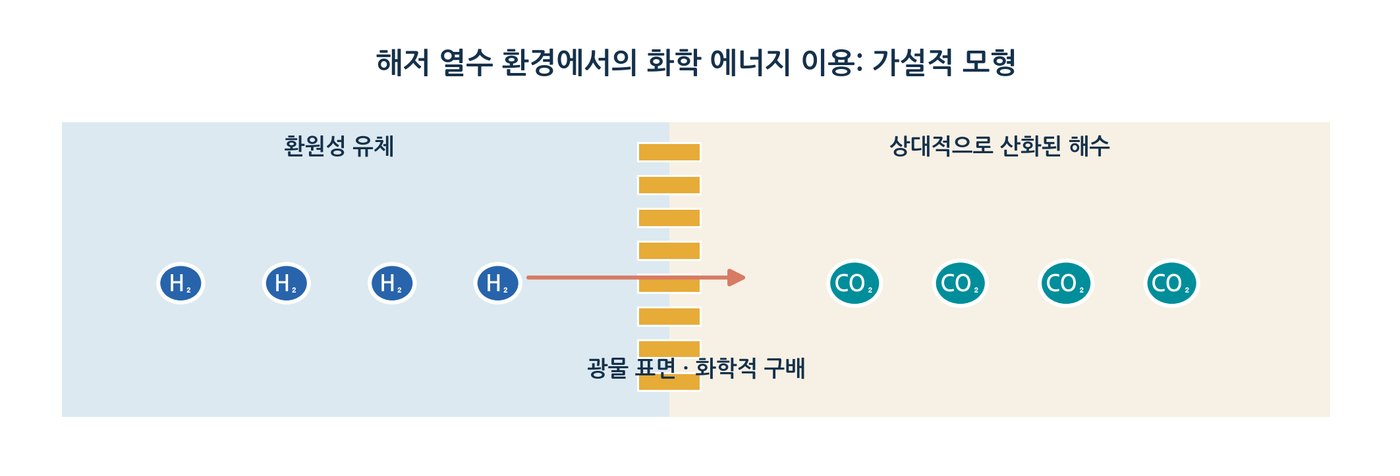
- 메탄생성: 4H₂ + CO₂ → CH₄ + 2H₂O (특정 고세균 계통에서만 확인)
- 해저 열수계는 광물 촉매·환원성 물질·pH·온도 구배를 제공해 생명 기원 후보 환경으로 연구
- 화학삼투(양성자 구동력)는 오늘날 다양한 생물이 공유 → 오랜 기원을 시사
- 최초 세포가 현대의 특정 경로를 보유했다고 확인된 것은 아니며, 무기 연료 가설은 지질·생화학 근거에 기반한 추론
06
진핵세포는 몇 단계를 거쳐 더 단순한 전구체로부터 진화하였다
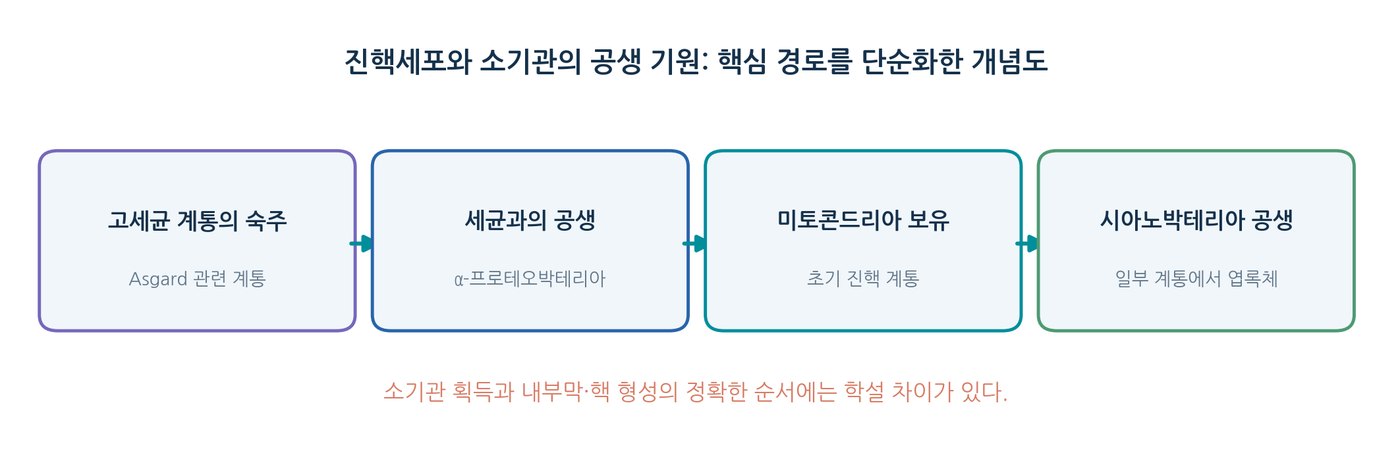
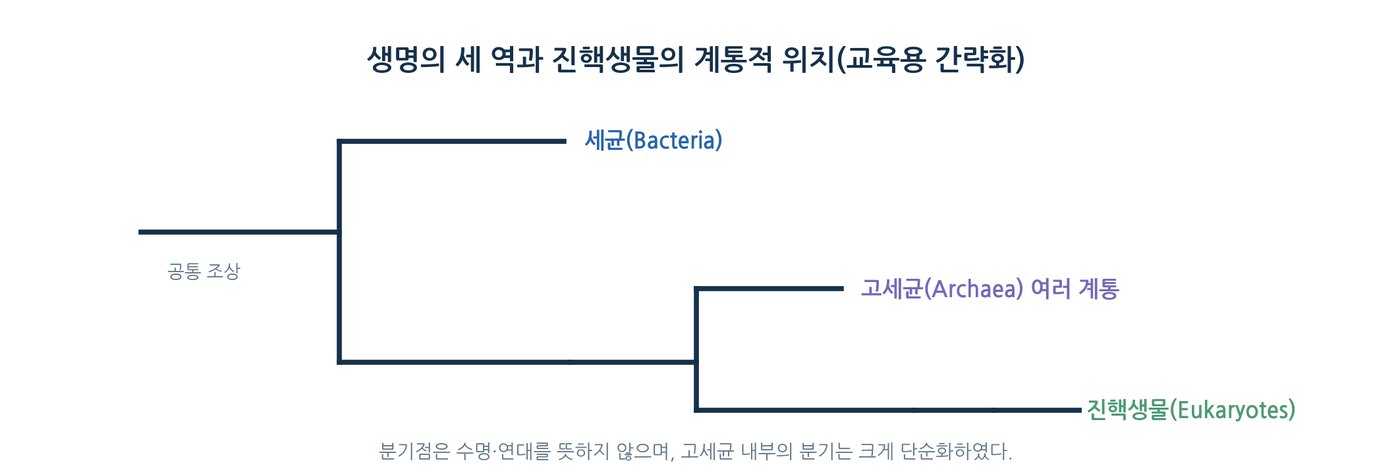
- 진핵생물은 계통적으로 고세균(특히 아스가르드 계통) 내부에 위치
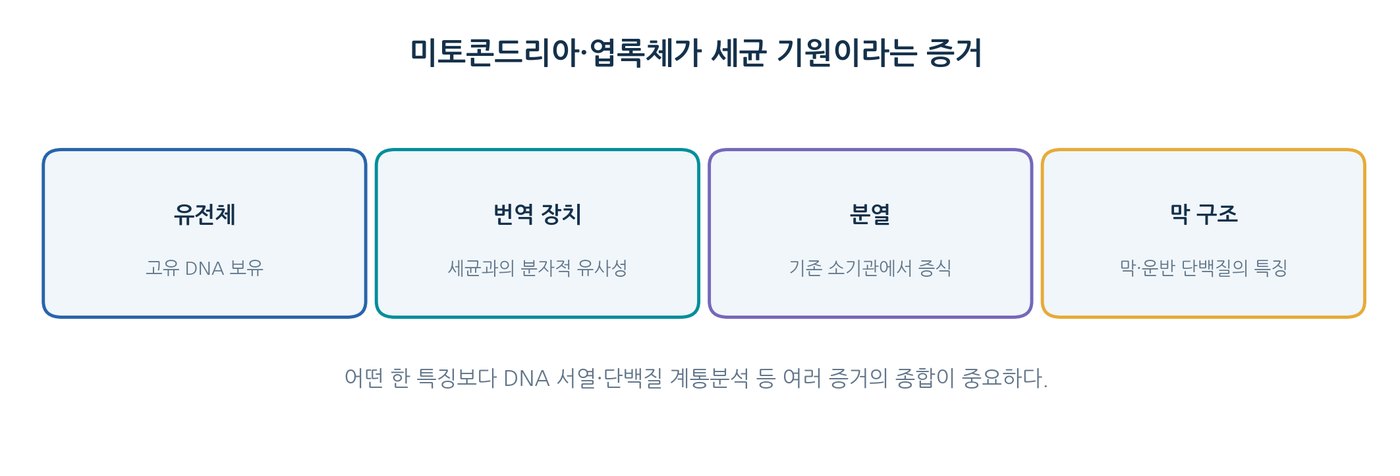
- 미토콘드리아 = 알파프로테오박테리아가 공생체로 통합된 기원
- 증거: 자체 유전체·분열 증식·세균형 리보솜과 유전자·계통 분석 신호
- 대부분의 소기관 단백질은 핵 유전체에서 암호화되어 세포질에서 합성 후 수입 → 유전자 이전의 흔적
- 엽록체 = 시아노박테리아와의 1차 공생, 일부 계통은 2차 공생
- 핵막·세포골격·내막계의 발생 시점과 미토콘드리아 획득 순서는 여전히 경쟁 모형
07
분자 해부학이 진화적 유연관계를 밝혀준다
- 모든 세포 생물이 DNA·RNA·단백질·리보솜과 코돈 해독 기구를 공유 → 공통 조상의 증거
- 상동성은 공통 조상에서 유래했다는 관계이지 서열 일치율(%)과 같은 말이 아님
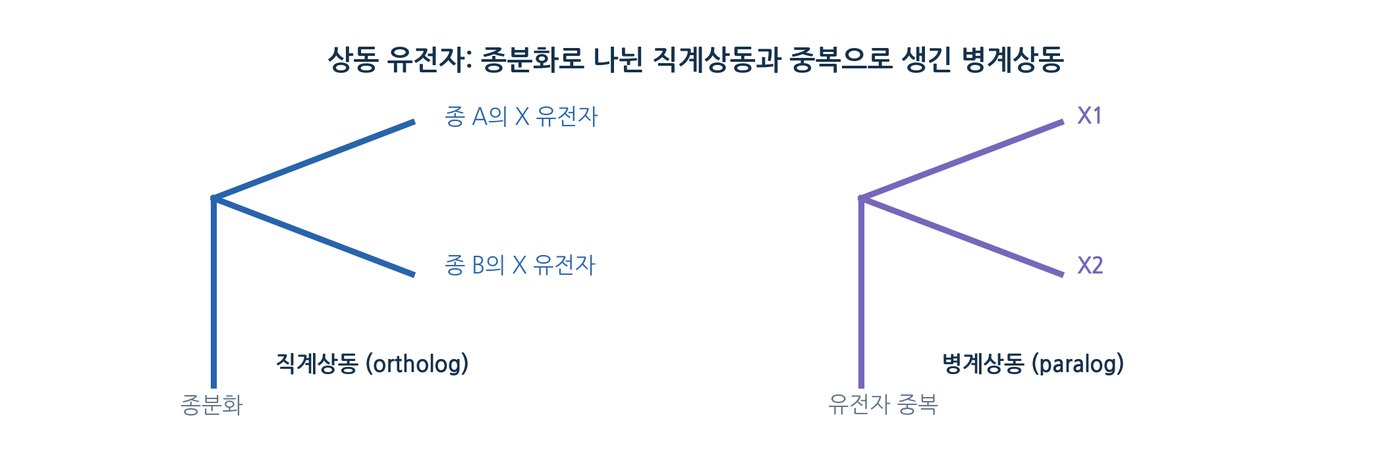
- 직계상동(ortholog) = 종분화로 갈라짐 / 병계상동(paralog) = 유전자 중복으로 갈라짐
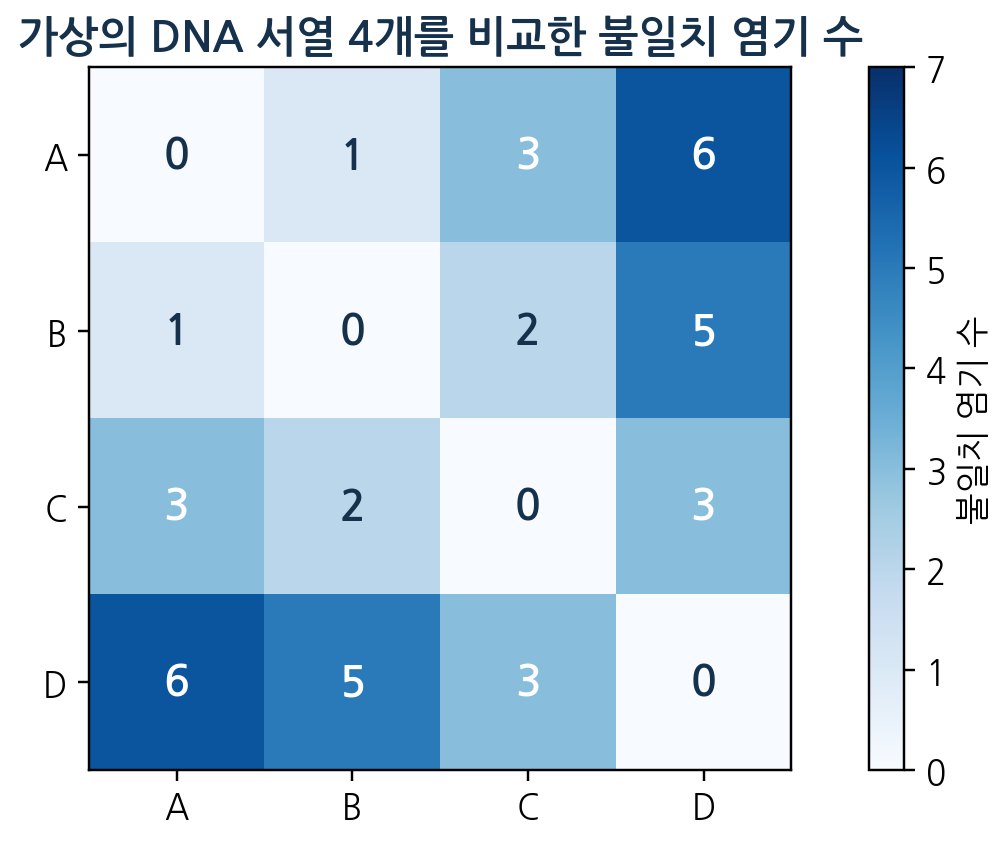
- 서열 정렬은 대응 위치를 맞추는 작업, 단순 불일치 수는 반복 치환·삽입결실·속도 차이를 무시
- 예: 12염기 가상 서열에서 A–B 1개, A–C 3개, A–D 6개 차이 → 이 자료만으로 종 계통을 확정할 수 없음
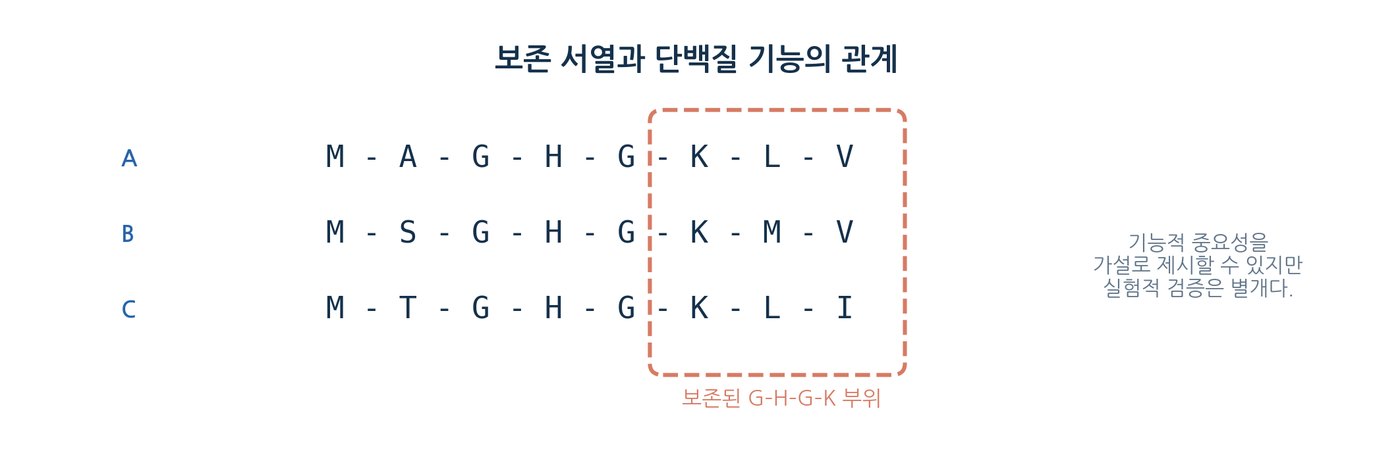
- 보존된 활성 부위·ATP 결합 모티프·접힘 핵심 잔기는 기능 추정의 단서이지만 활성 측정으로 검증 필요
08
기능유전체학은 특정한 세포의 활동에 유전자를 연결할 수 있음을 보여준다
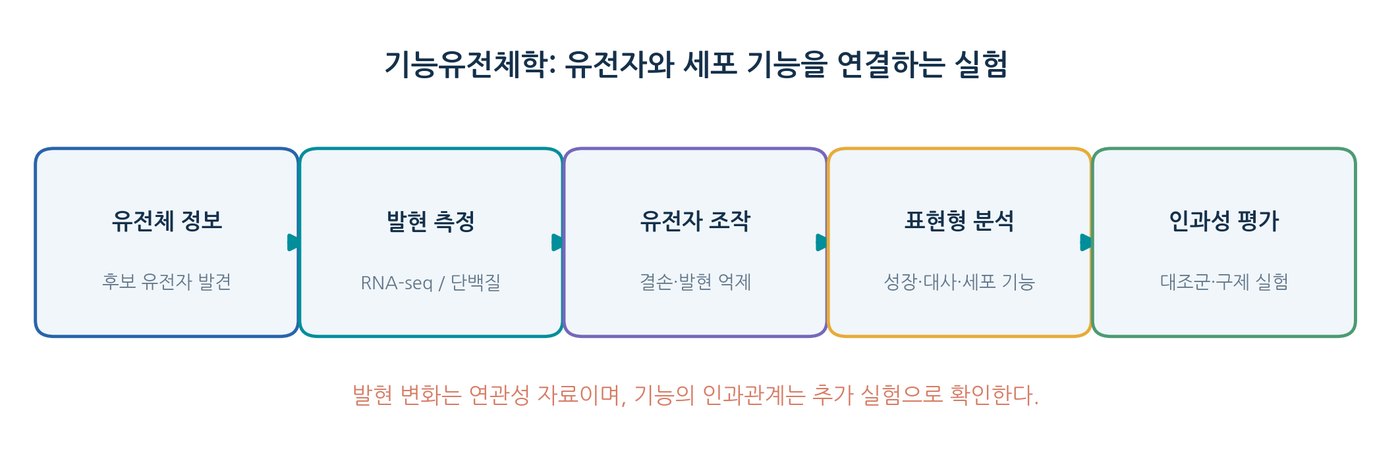
- 유전체학 = DNA 전체 구성 조사, 기능유전체학 = 그 정보가 세포 활동에서 어떻게 쓰이는지 검증
- 도구: RNA-seq(전사량), 단백질체학(단백질 양·변형), 유전자 교란(인과 검증)
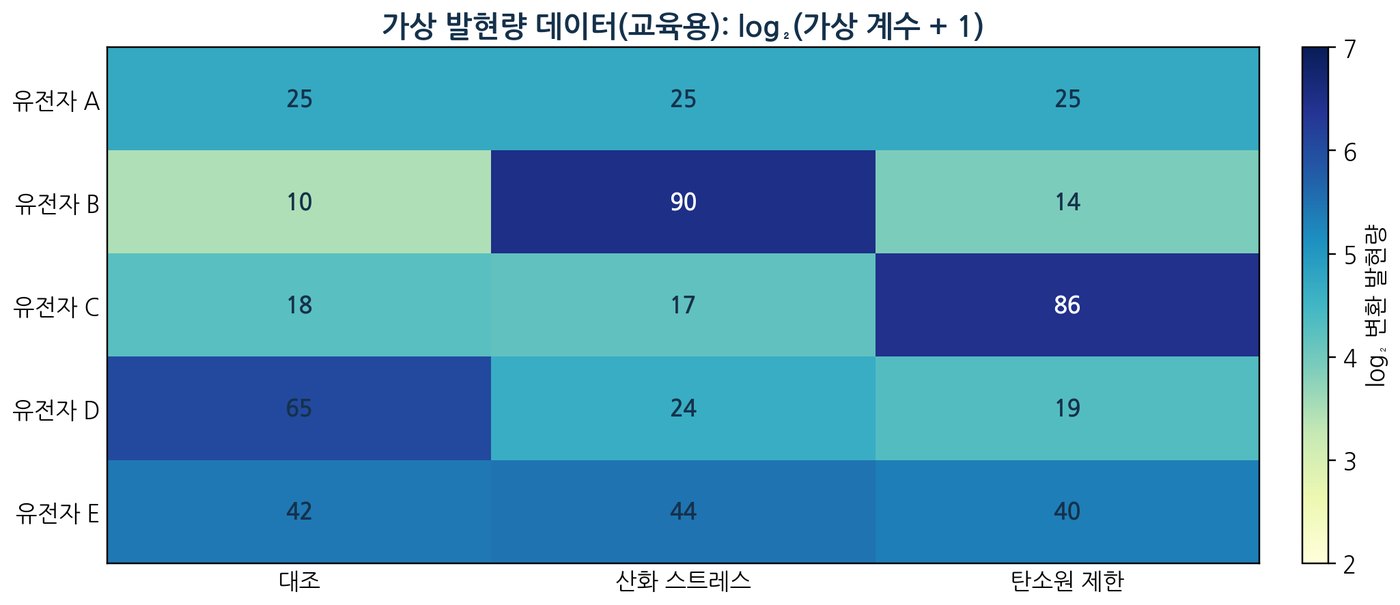
- 발현량 증가가 곧 효소 활성 증가는 아님(번역·분해·변형·위치·기질 농도가 개입)
- 발현 자료는 후보를 제시할 뿐, 원인과 결과는 교란 실험으로 구분
- 검증 절차: 후보 유전자 결손 → 표현형 비교 → 재도입 구제 실험으로 인과 확인
09
유전체 비교는 인류 생물학과 의학에서 그 중요성이 점차 증가하고 있다
- 종 간 유전체 비교로 보존 유전자·계통 특이 중복·소실·비암호화 조절부위를 탐색
- 모델 생물의 직계상동 유전자 기능이 인간 유전자 연구의 초기 가설을 제공
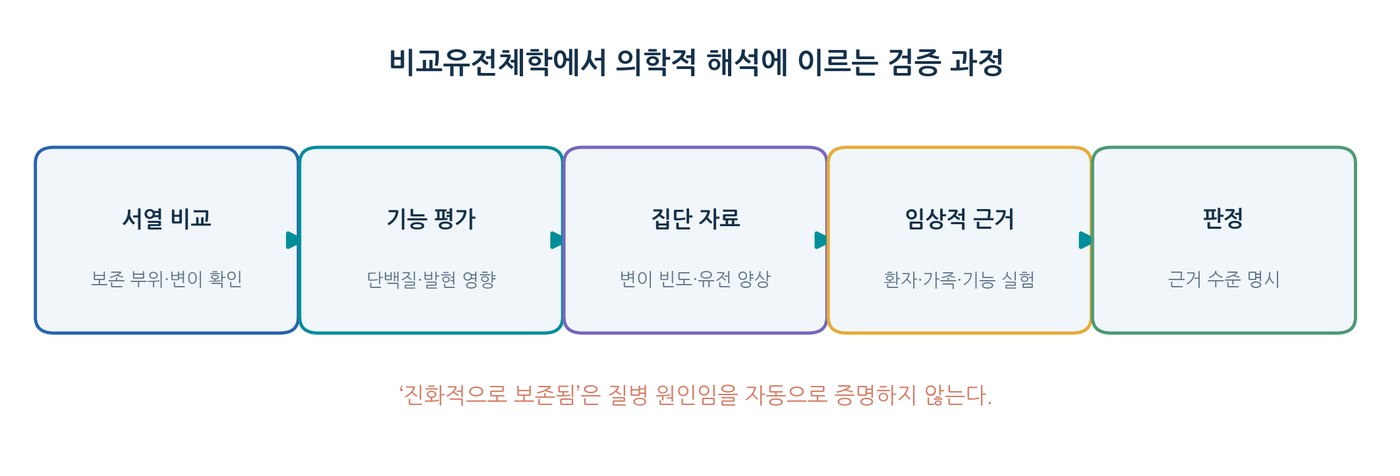
- 개인 유전체 변이는 대부분 병원성이 아님 → 집단 빈도·가계 분리·기능 실험·임상 표현형·재현성으로 판정
- 보존 잔기의 변화는 기능 중요성의 단서일 뿐 단독으로 질병 원인을 확정하지 못함
- 응용: 항생제 내성 추적, 종양 유전체 분석, 희귀질환 변이 해석
- 서열·발현·단백질 기능·환경·임상 정보를 함께 해석해야 함
참조 자료 · References
| 변화 원리 | 분자 수준 현상 | 집단·진화 수준 결과 |
|---|---|---|
| 돌연변이 | 염기의 치환·삽입·결실 | 새로운 대립유전자 형성 |
| 재조합 | 상동 염색체 간 DNA 교환 등 | 대립유전자 조합의 다양화 |
| 수평적 유전자 이동 | 개체·계통 사이 DNA 전달 | 새 유전자와 형질의 도입 |
| 자연선택 | 표현형과 적합도 차이 | 비중립 변이의 빈도 변화 |
| 유전적 표류 | 우연한 표본 추출 효과 | 특히 작은 집단에서 빈도 변화 |
| 실험·관찰 | 직접 지지하는 주장 | 이것만으로 지지하지 않는 주장 |
|---|---|---|
| 유기분자 합성 | 비생물 조건에서 유기분자 형성이 가능 | 최초 생명체가 실험과 같은 경로에서 출현 |
| 막 소포의 자발적 형성 | 특정 분자가 구획을 만들 수 있음 | 세포의 증식과 유전이 완성됨 |
| 리보자임 활성 | 일부 RNA가 화학 반응을 촉진 | RNA 세계가 실제 초기 지구에서 존재했음 |
| 분자 | 유전정보 저장 | 촉매·구조 기능 | 초기 진화에서의 쟁점 |
|---|---|---|---|
| DNA | 현대 세포에서 주요 저장체 | 촉매 역할은 제한적 | 안정적 DNA 저장체의 획득 순서 |
| RNA | 일부 바이러스의 유전체·현대 세포 정보 전달 | 리보자임·rRNA의 촉매 활성 | 자연 조건에서의 합성·복제·안정성 |
| 단백질 | 일반적으로 서열 복제 주형이 아님 | 대부분의 현대 효소 | 유전정보 기반 번역계의 출현 |
| 사건 | 대표적 연대(근삿값) | 자료 해석상의 유의점 |
|---|---|---|
| 지구 형성 | 약 45.4억 년 전 | 방사성 동위원소 연대 측정 기반 |
| LUCA | 한 연구 약 42억 년 전 | 계통·분자시계 모형에 따라 달라짐 |
| 고대 미생물 흔적 | 약 35억 년 전 | 최초 출현 연대를 뜻하지 않음 |
| 대산소화 사건 | 약 24억 년 전 전후 | 산소 생성 광합성의 개시와 동일 시점 아님 |
| 초기 진핵생물 | 대략 18억 년 전 및 이후 | 화석·분자시계에 따라 견해 차이 |
| 주제 | 강하게 뒷받침되는 설명 | 세부 연구 쟁점 |
|---|---|---|
| 진핵 숙주 계통 | 고세균·아스가르드 계통과 진화적 연관 | 정확한 가지 위치와 조상 세포의 특성 |
| 미토콘드리아 | 세균과의 내공생 기원 | 획득 시점 및 세포 복잡화의 선후 |
| 광합성 색소체 | 시아노박테리아 유래 1차 내공생 | 2차·추가 공생의 복잡한 계통 역사 |
| 핵·내막계 | 진핵 진화 동안 새로운 구획 구조 형성 | 각 요소가 생겨난 상세한 단계 |
| 가상 표본 | 정렬 DNA 서열(5′→3′) | A와 다른 위치 수 |
|---|---|---|
| A | ATGCTACGTTAA | 0 |
| B | ATGCTACGTTAG | 1 |
| C | ATGATACATTAG | 3 |
| D | TTGATCCACTAG | 6 |
| 유전자 | 대조 | 산화 스트레스 | 탄소원 제한 |
|---|---|---|---|
| A | 25 | 25 | 25 |
| B | 10 | 90 | 14 |
| C | 18 | 17 | 86 |
| D | 65 | 24 | 19 |
| E | 42 | 44 | 40 |
2027학년도 고등학교 전문교과 · 생화학 · 박상일(아산고등학교) · 본 인쇄물의 참조 자료는 본문 뒤 부록으로 이어집니다.