01
막 지질의 공통 원리
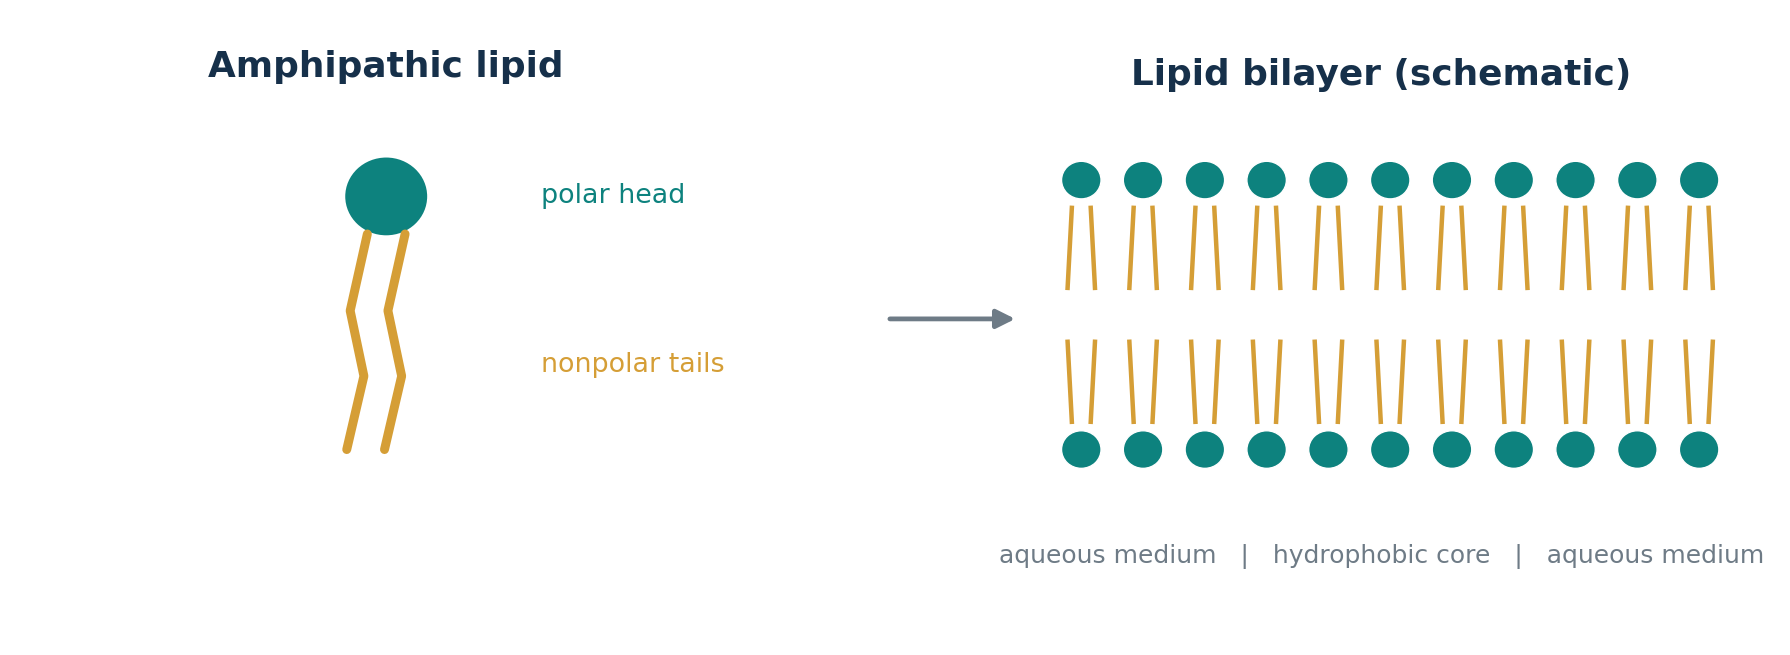
- 막 지질 = 극성 머리와 비극성 탄화수소 부분을 함께 가진 양친매성 분자
- 물속에서 소수성 부분이 모이면 주변 물의 질서화가 줄어 자유에너지가 감소(소수성 효과)
- 두 개의 긴 사슬을 가진 지질은 대체로 이중층을 잘 형성
- 단일 사슬 계면활성제는 미셀을 잘 만들지만 머리 크기와 조건에 따라 자기조립 형태가 달라짐
- 막 중심부는 소수성이어서 이온·대부분의 극성 분자가 자유롭게 통과하기 어려움
- 기체와 일부 작은 비극성 분자의 투과성은 상대적으로 큼
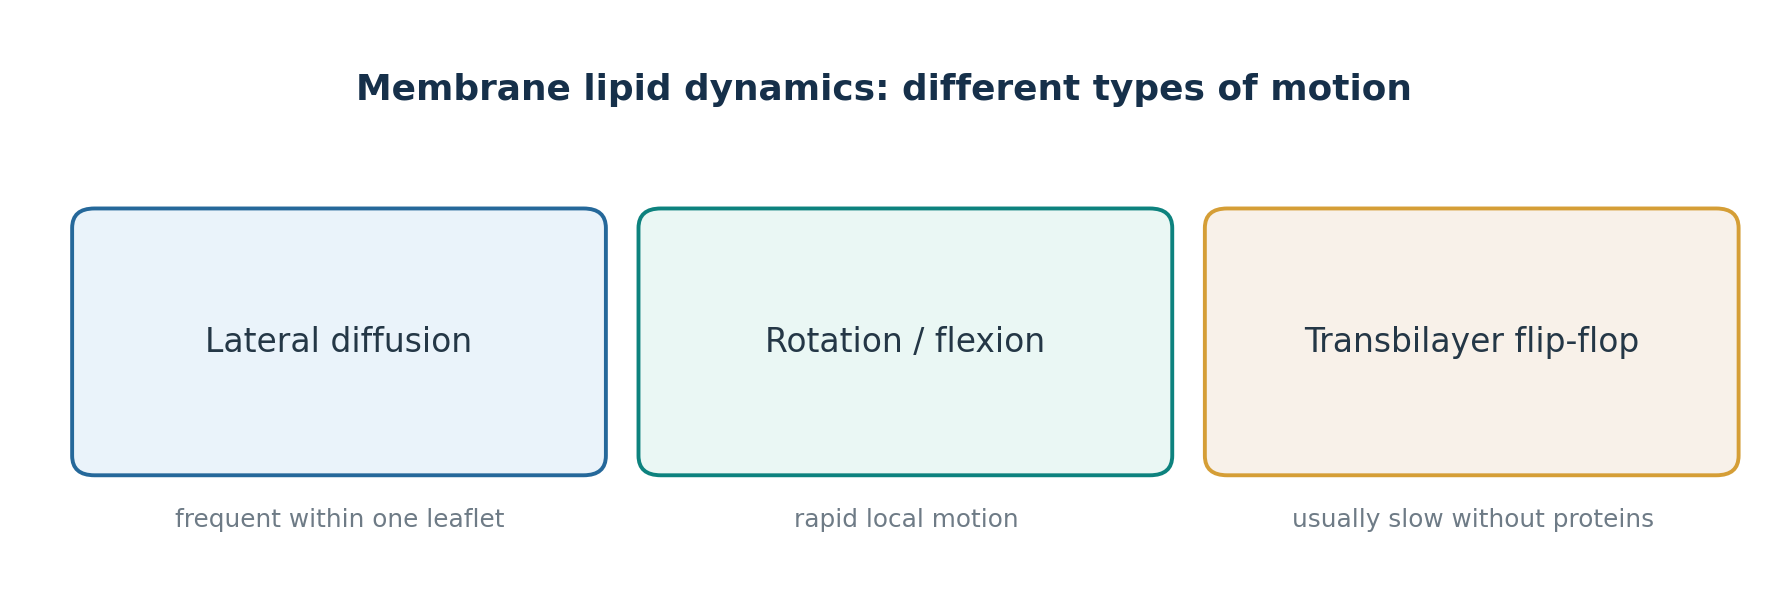
- 지질은 같은 단층 안에서 측면 확산·회전을 하고, 단층 간 이동(flip-flop)은 에너지 장벽이 큼
- flippase·floppase·scramblase가 횡단 이동을 조절
- 사슬이 길수록 배열이 조밀해지고 cis 이중결합이 많으면 상전이 온도가 낮아짐
- 실제 유동성은 온도·콜레스테롤·지질 종류·단백질·이온 조성의 영향을 함께 받음
02
글리세로인지질: 포스파티드산의 유도체
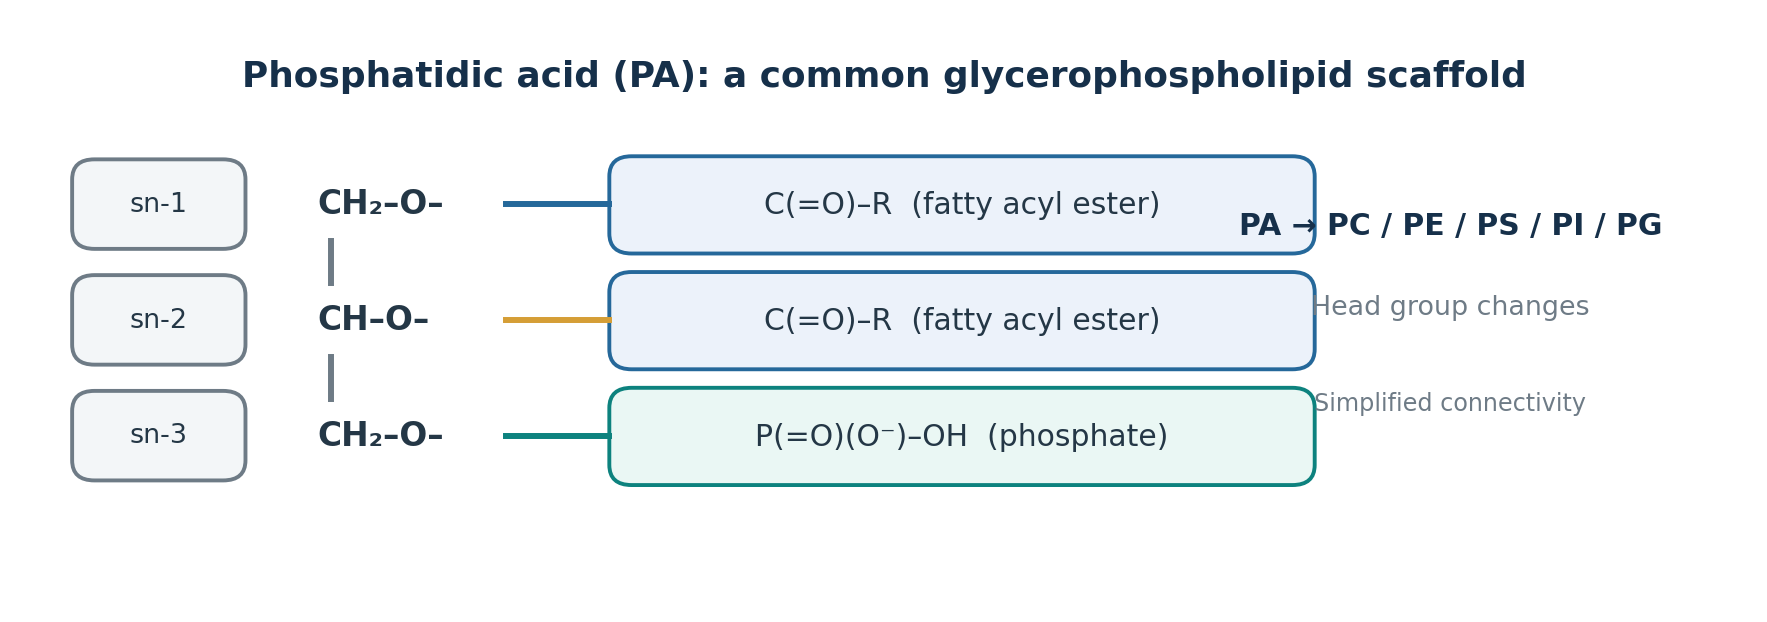
- 기본 골격은 글리세롤, sn-1·sn-2에 지방산이 에스터 결합하고 sn-3에 인산이 결합
- 가장 단순한 골격인 포스파티드산(PA) = 다이아실글리세롤 + 인산기
- 인산기에 알코올성 머리가 붙으면 PC·PE·PS·PI 등이 됨
- PC·PE는 양전하(암모늄)와 음전하(인산)의 합으로 전체 전하가 대체로 0이지만 전하가 없는 것은 아님
- PS·PI의 전하는 pH와 이온 환경에 따라 달라짐
- “포스파티딜-”은 글리세롤–두 아실 사슬–인산의 공통 부분을 가리킴
- 공통 부분이 같아도 머리 작용기와 전하가 다르면 막 표면 전기적 성질과 단백질 결합이 달라짐
- 모든 세포막이 같은 비율의 지질을 갖는 것은 아님
03
에스터 결합과 에터 결합
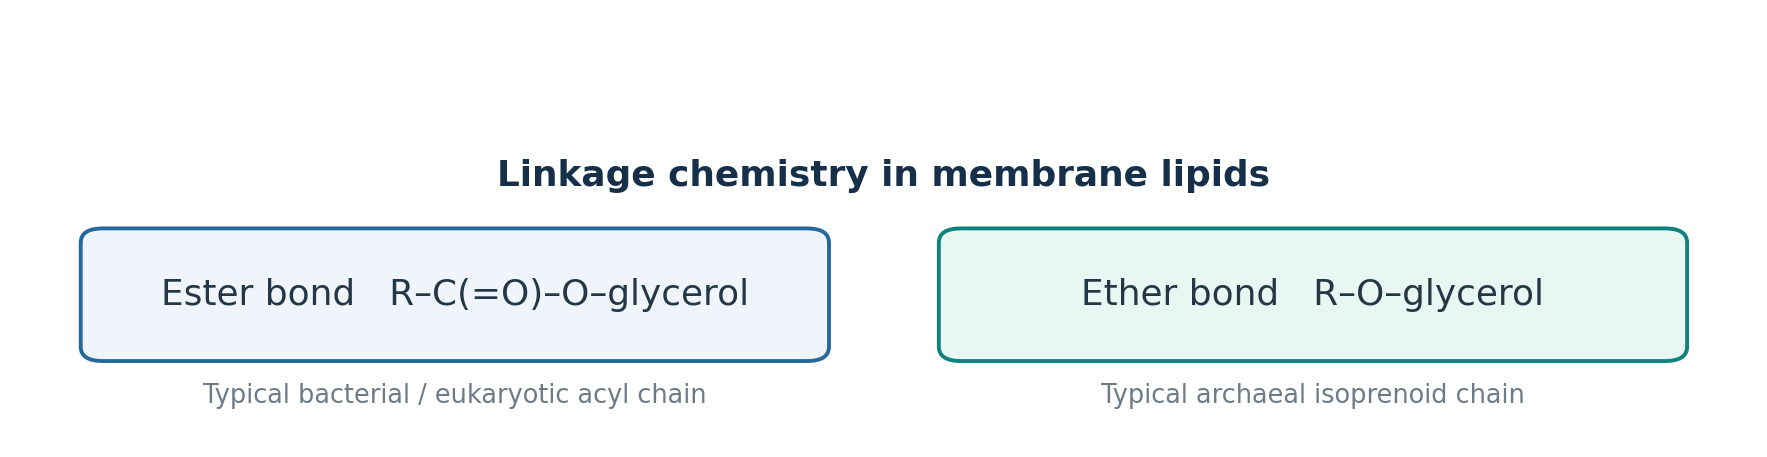
- 일반적 글리세로인지질에서 지방산 카복실기가 글리세롤과 에스터를 이루며 특징적 배열은 –O–C(=O)–
- 일부 막 인지질은 sn-1이 에터 결합(–O–)으로 연결
- 플라스말로겐의 sn-1에는 비닐 에터 결합이 있고, 혈소판활성화인자(PAF)도 대표적 에터 지질
- 두 결합은 가수분해 반응성에 차이가 있음
- “에터 결합이면 모든 환경에서 무조건 안정”이라는 일반화는 피해야 하고, 비닐 에터는 산화에 민감할 수 있음
- 고세균의 대표 지질은 이소프레노이드 사슬이 에터 결합으로 연결된 점에서 구별
- 대부분의 동·식물 글리세로인지질에는 에스터 결합이 있고 에터 지질은 예외적 유형
- IR 스펙트럼에서 카보닐 흡수대의 유무가 단서가 될 수 있으나 다른 카보닐기의 가능성을 함께 고려
04
엽록체의 갈락토지질과 황지질
- 엽록체 틸라코이드 막은 동물 세포막과 지질 조성이 뚜렷하게 다름
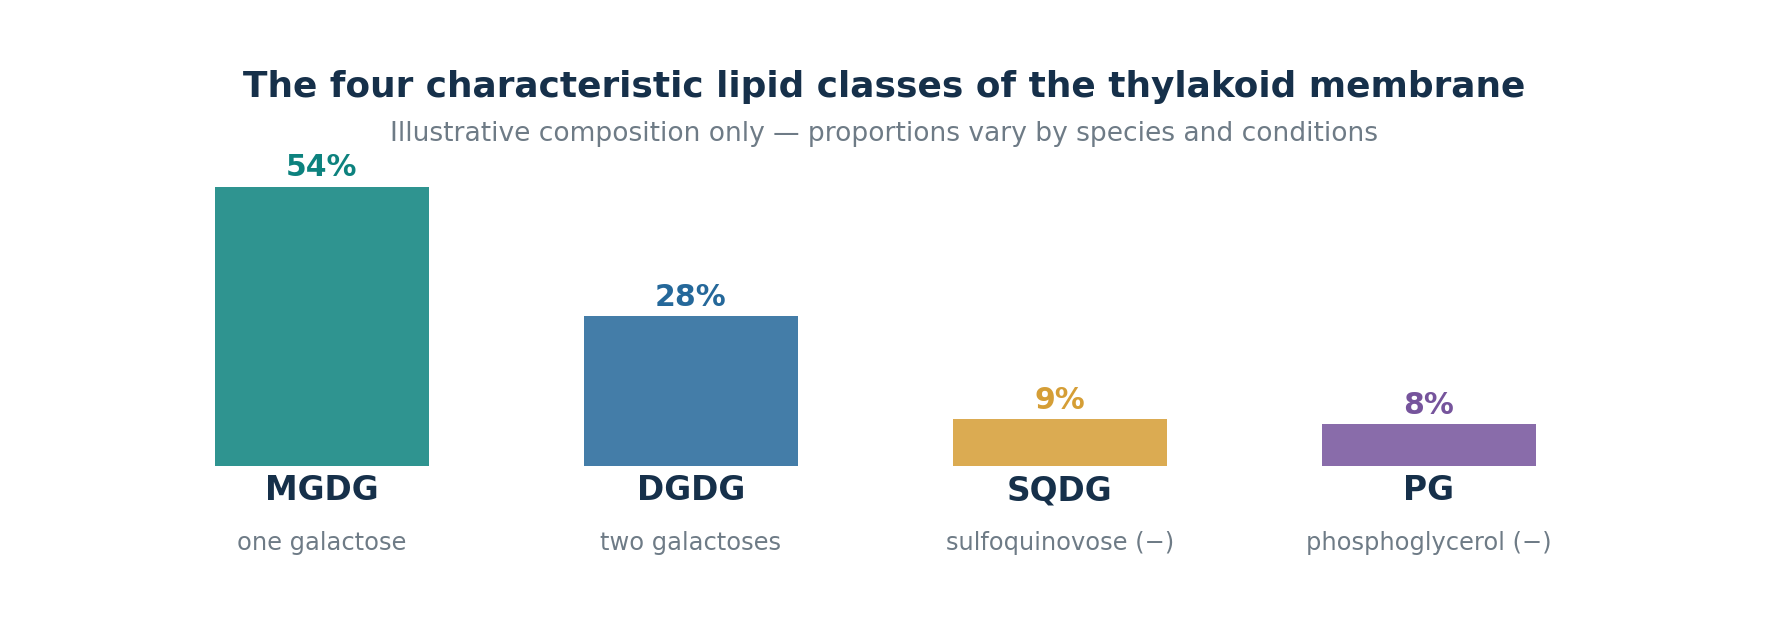
- 대표 성분: MGDG(갈락토스 1개), DGDG(갈락토스 2개), SQDG(설포퀴노보스 머리), PG(음전하 인지질)
- MGDG·DGDG는 인산기를 포함하지 않는 갈락토지질
- MGDG는 음의 곡률을 선호하고 DGDG는 상대적으로 이중층 형성에 유리
- SQDG는 음전하 황지질이고 PG도 음전하 인지질
- 인 제한 환경에서 일부 식물이 비인산계 지질로 인 사용량을 조절
- 그러나 PG의 기능을 모든 경우 완전히 대체할 수는 없음
- “모든 생체막의 주성분은 인지질”이라는 문장은 틸라코이드에서 명백한 반례를 가짐
05
고세균 막 지질의 독특한 설계
- 고세균 지질은 glycerol-1-phosphate 계열 골격에 가지 친 이소프레노이드 사슬이 에터 결합으로 연결
- 세균·진핵생물의 sn-glycerol-3-phosphate 기반 지질과 입체화학적으로도 구별
- 이 차이는 진화적 계통 차이를 이해하는 단서
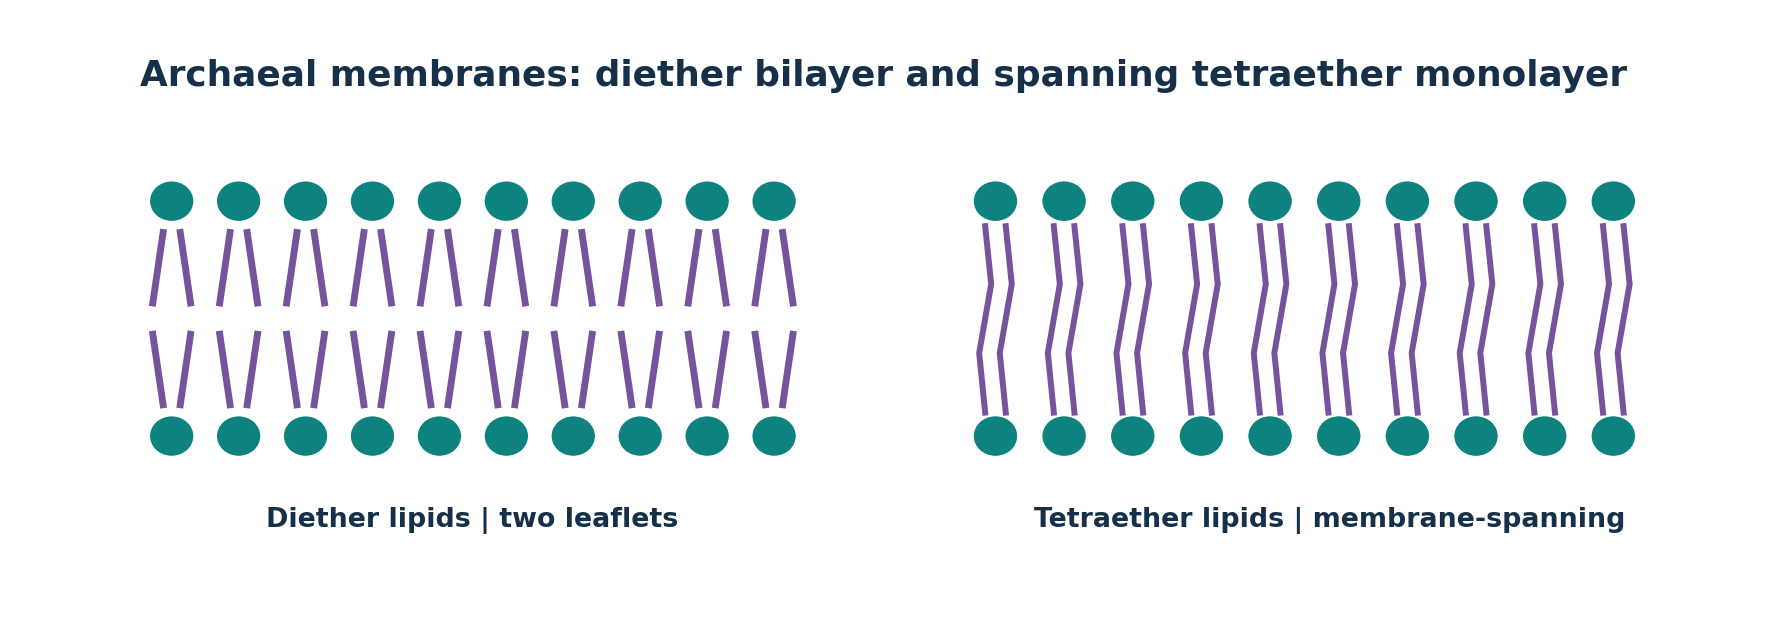
- 다이에터 지질은 두 단층이 만나는 이중층을 이룰 수 있음
- 테트라에터 지질은 긴 사슬이 막 전체를 가로질러 단일층형 막을 만듦
- 호열성·호산성 고세균에서 막 안정성과 낮은 투과성에 기여
- 모든 고세균이 테트라에터 단일층만 갖는 것은 아님
- 막의 열 안정성은 분자 구조만으로 판단할 수 없고 막 단백질·세포 내부 환경도 함께 작용
06
스핑고지질은 스핑고신의 유도체이다
- 글리세롤 대신 긴 사슬 아미노알코올인 스핑고신을 기본 골격으로 사용
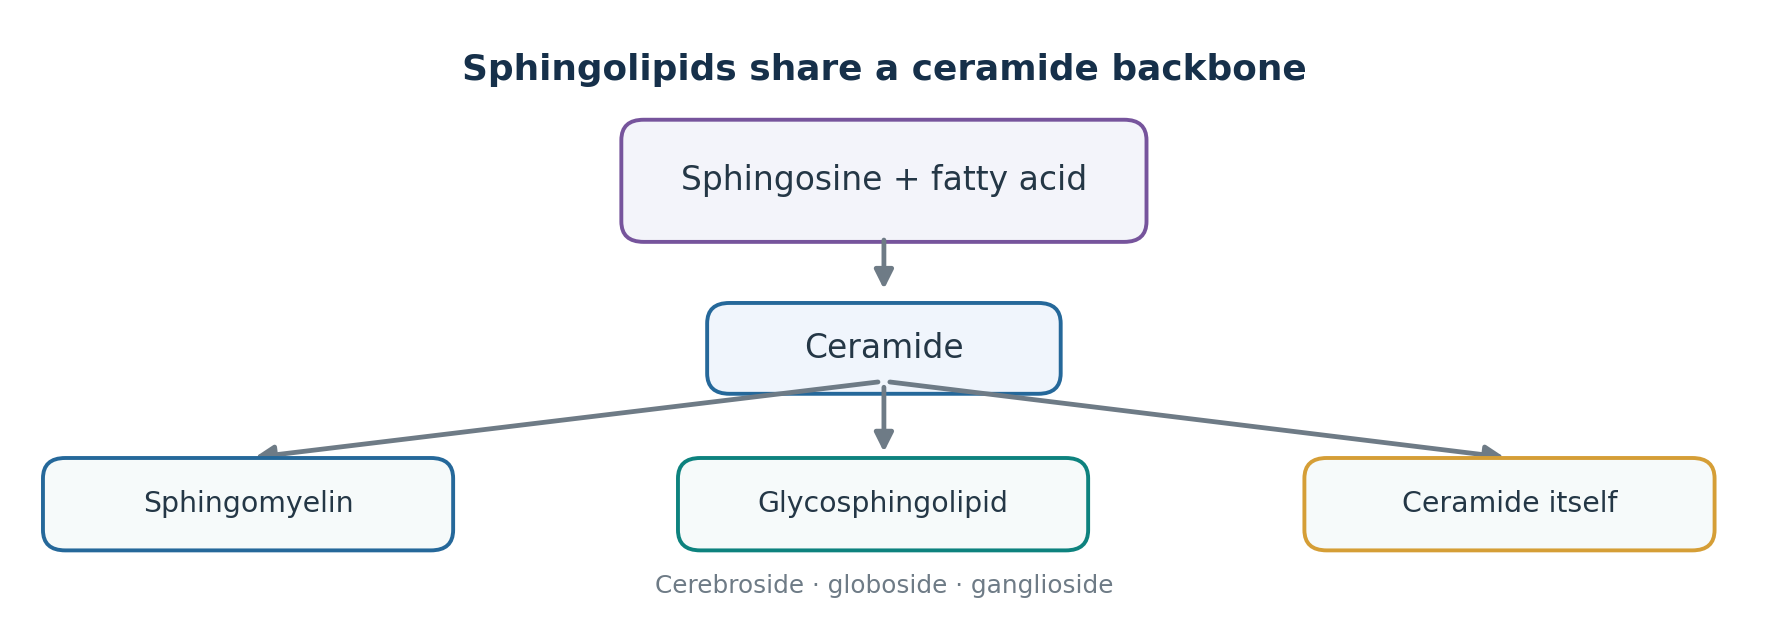
- 스핑고신의 아미노기에 지방산이 아마이드 결합하면 세라마이드
- 세라마이드에 어떤 극성 머리가 붙는지에 따라 여러 스핑고지질이 형성
- 스핑고미엘린 = 세라마이드 + 인산콜린(드물게 인산에탄올아민)
- 포스파티딜콜린과 머리가 비슷하지만 골격은 글리세롤이 아니라 스핑고신
- 당스핑고지질 = 세라마이드 + 당, 세레브로사이드·글로보사이드·강글리오사이드로 구분
- “스핑고미엘린도 인지질인가?”에는 그렇다, “글리세로인지질인가?”에는 아니다
- 두 질문의 구분 기준이 각각 머리 부분과 골격이라는 점이 핵심
07
당스핑고지질은 세포 표면 인식의 주소표다
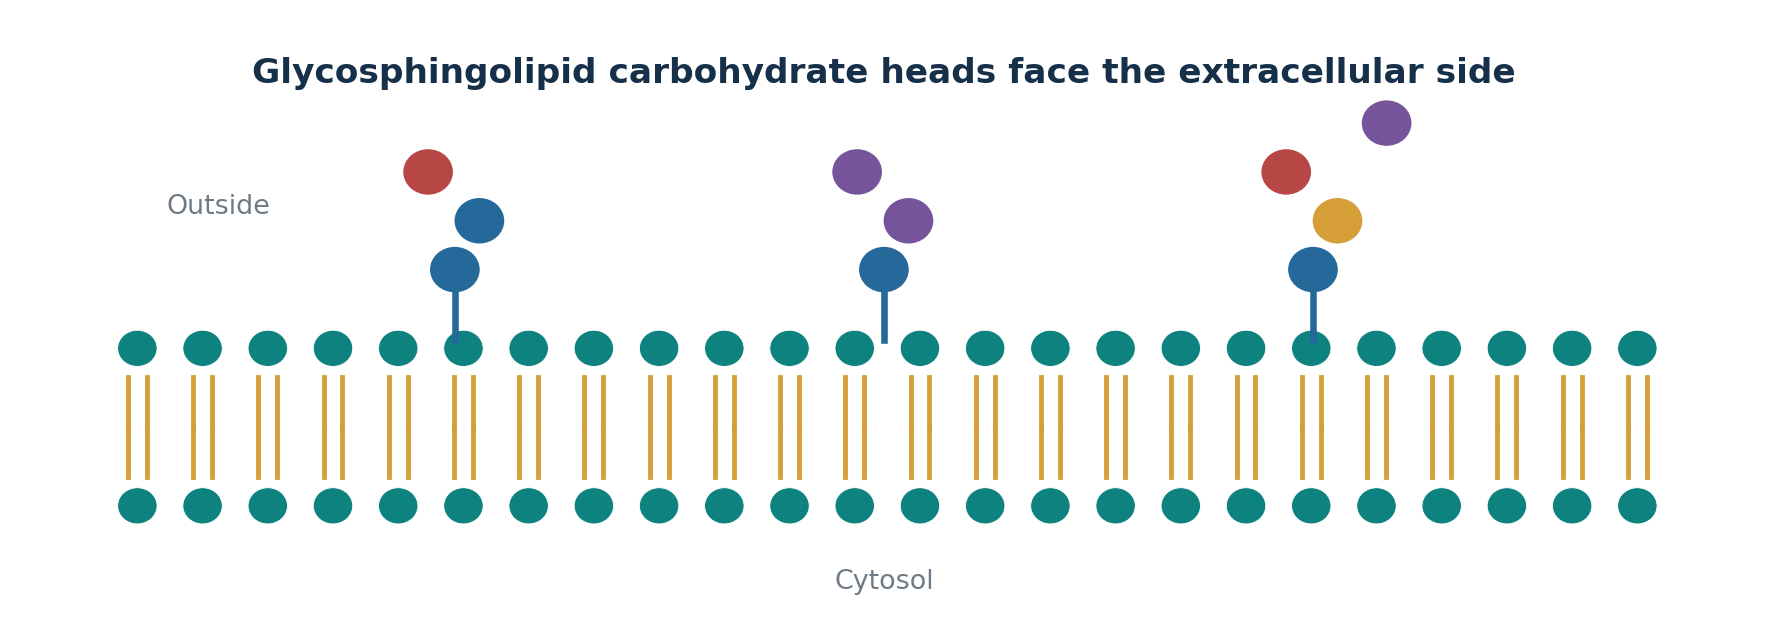
- 많은 당스핑고지질의 올리고당 머리가 세포막 바깥쪽에 노출
- 당쇄 배열과 당 종류가 세포 상호작용·분화·병원체와 독소의 결합에 정보로 작용
- 일부 강글리오사이드는 특정 독소·단백질의 결합 표적
- 세포 표면 인식은 당지질만이 아니라 당단백질·수용체·단백질 복합체가 함께 담당
- ABO 혈액형 항원은 세포 표면 당쇄 말단 구조 차이와 관련되고 당지질·당단백질 모두에서 발견
- “ABO 항원은 오직 당스핑고지질로만 구성된다”는 설명은 잘못
- 당피질은 여러 유형의 당포합체가 함께 이룬 구조
- GM1은 콜레라 독소 B 소단위체의 결합 표적 중 하나이며, 인식은 당 하나보다 당쇄 입체배열과 노출 정도에 의존
08
인지질과 스핑고지질의 분해·재활용
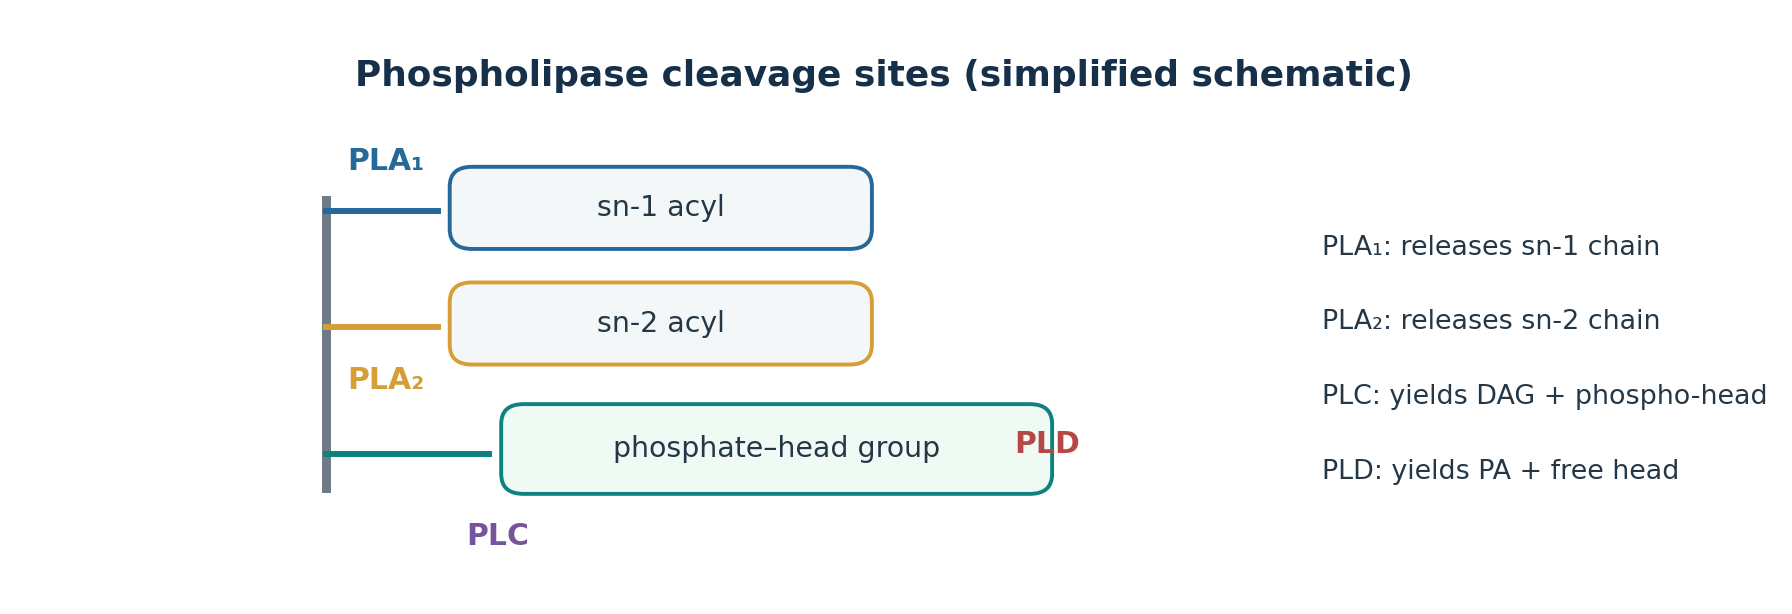
- 포스포리페이스는 인지질의 서로 다른 결합을 절단하는 효소군
- PLA₁은 sn-1, PLA₂는 sn-2 아실 사슬을 절단해 유리 지방산과 라이소인지질을 생성
- PLC는 글리세롤과 인산 사이를, PLD는 인산과 머리 부분 사이를 가수분해
- PLA₂가 아라키돈산을 포함한 sn-2 사슬을 자르면 아라키돈산이 방출되어 신호 분자 전구체가 됨
- 모든 PLA₂ 기질의 sn-2 지방산이 아라키돈산인 것은 아님
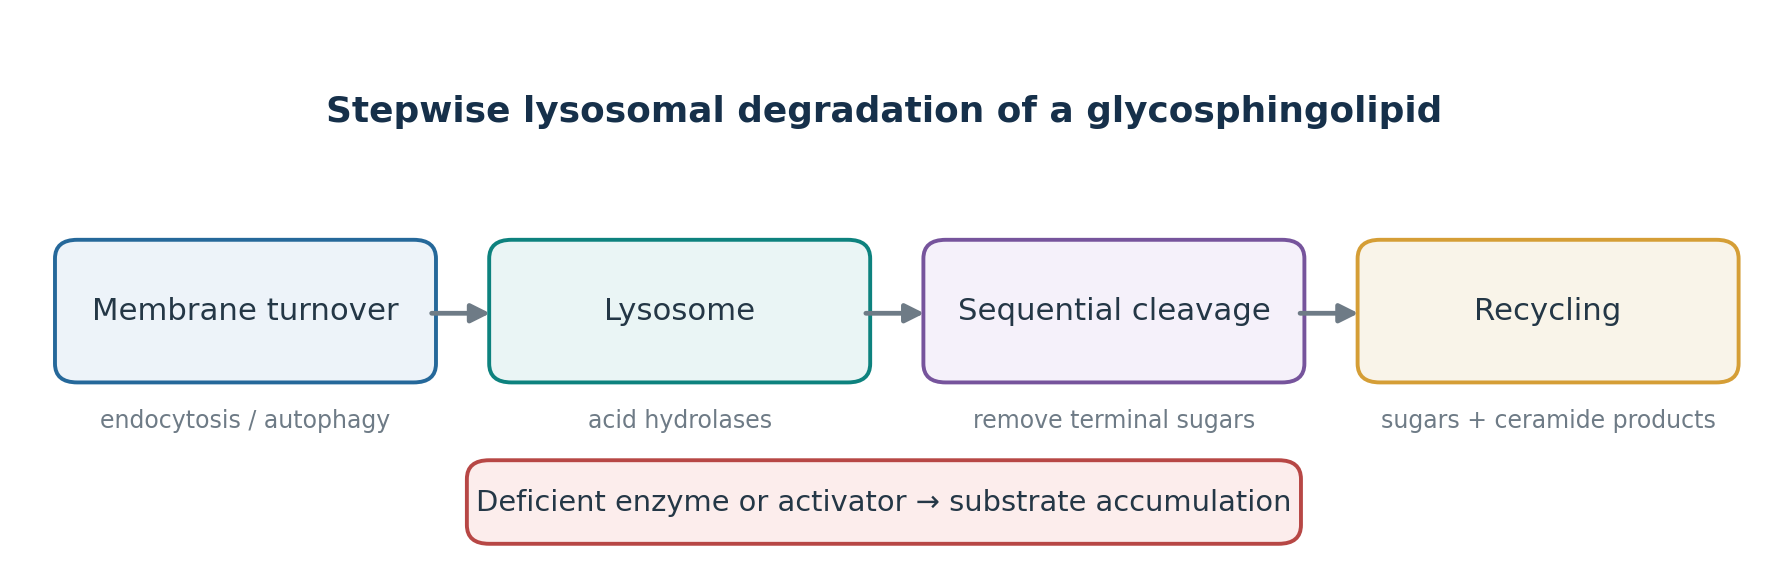
- 막 성분은 섭취·자가포식·막 회전을 거쳐 리소좀에 도달
- 리소좀은 산성 환경에서 가수분해 효소와 보조 단백질로 막 성분을 단계적으로 분해
- 복잡한 당스핑고지질은 당쇄 말단부터 당 잔기를 순차 제거
- 효소나 보조 단백질 기능이 떨어지면 특정 기질이 축적되며, 축적 물질은 결핍 효소와 막힌 단계로 결정
- “유전자 → 효소·수송 기능 → 축적 기질 → 세포 손상”의 인과 사슬로 이해하는 것이 바람직
09
스테롤: 네 개의 융합된 고리
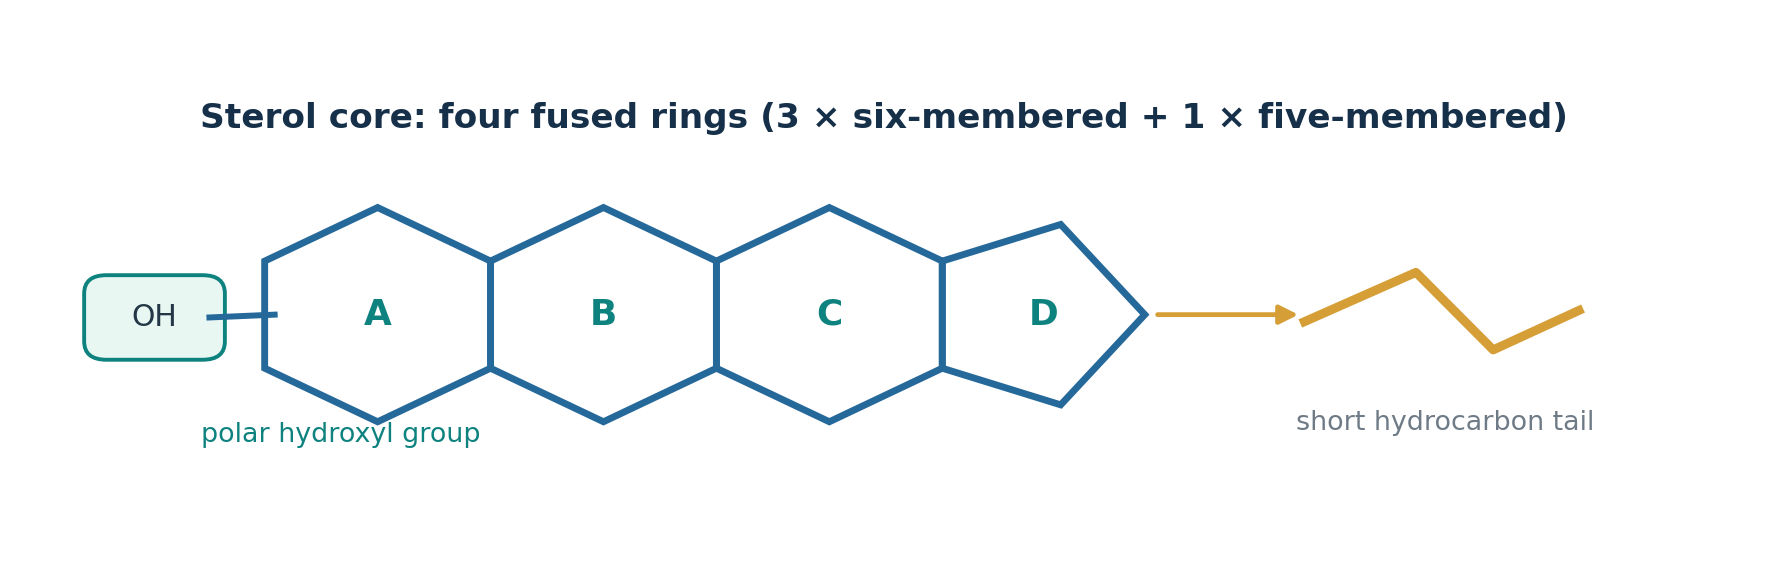
- 스테롤 = 세 개의 6원자 고리와 하나의 5원자 고리가 융합된 공통 골격
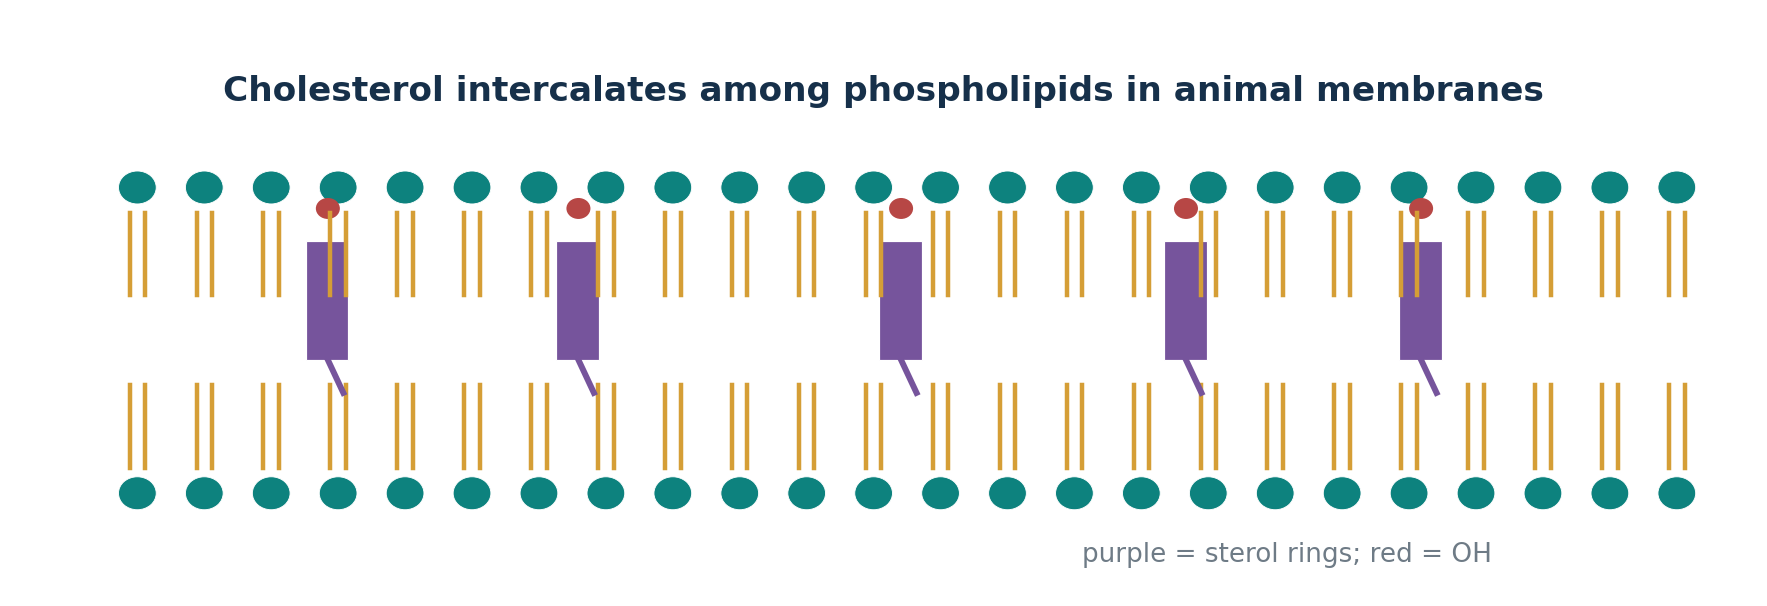
- 콜레스테롤은 동물 세포막의 대표 스테롤로 작은 극성 –OH와 단단한 고리, 탄화수소 꼬리를 함께 가짐
- –OH는 인지질 머리 근처에, 나머지는 막 내부에 위치
- 콜레스테롤은 높은 온도에서 과도한 유동을 줄이고 낮은 온도에서 사슬의 규칙적 배열을 방해
- 따라서 막 유동성 변화를 완충하는 역할을 하지만 “언제나 유동성을 증가시킨다”는 단정은 옳지 않음
- 동물은 콜레스테롤, 균류는 에르고스테롤, 식물은 시토스테롤·캄페스테롤 등 피토스테롤
- 대부분의 세균 막에는 스테롤이 없지만 예외가 있음
- 막의 기계적 성질은 스테롤과 함께 지질 사슬·단백질 조성의 영향을 받음
10
하나의 막에 여러 지질이 필요한 이유
- 생체막은 단일 물질로 된 균질한 판이 아니라 여러 지질의 머리 전하·포화도·굴곡·스테롤·단백질이 함께 만든 구조
- 두 단층의 지질 조성은 일반적으로 다를 수 있고 이 비대칭성은 신호 전달과 기능에 중요
- 포스파티딜세린(PS)은 정상 동물 세포에서 세포질 쪽 단층에 더 많음
- 세포자멸사 과정에서 PS가 세포 바깥으로 노출되는 변화가 관찰됨
- 특정 조건에서 콜레스테롤·스핑고지질이 풍부한 국소 영역이 일시적으로 형성(지질 뗏목)
- 지질 뗏목은 유용한 개념이지만 모든 막에 고정된 크기의 안정한 섬이 항상 존재한다고 보면 지나친 단순화
- 통합 논리: 골격 구별 → 머리 전하·당쇄·결합 확인 → 자기조립·유동성·인식·분해 예측 → 자료로 검증
- 예: 총 지질 2,000개 중 인지질 1,600개면 80 mol%, PS 240개면 12 mol%
- PC·PE 0, PS·PI −1로 단순화하면 지질 1개당 평균 형식전하 = (240+200)/2,000 = −0.22 e
참조 자료 · References