01
카이모트립신의 아실화와 탈아실화
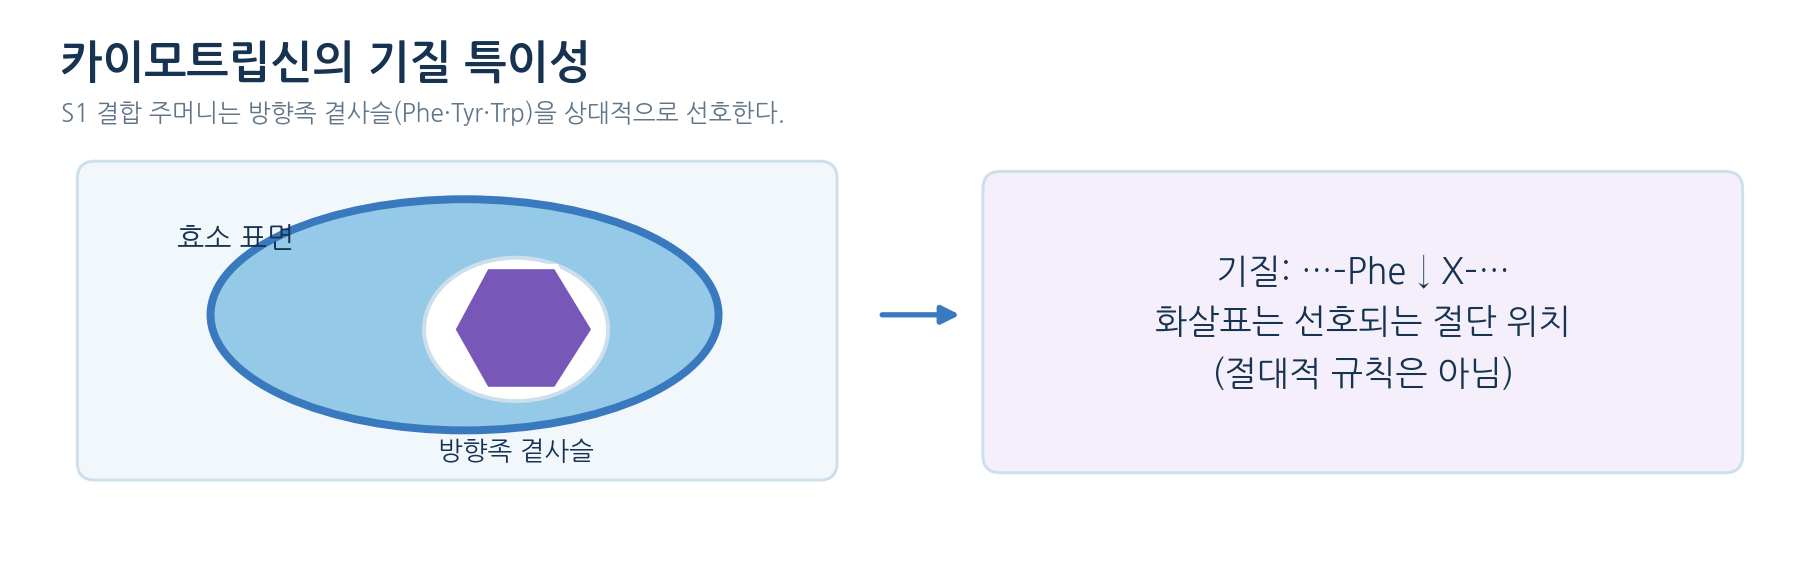
- 세린 단백질분해효소, Phe·Tyr·Trp의 카복실기 쪽 펩타이드 결합 선호, 소수성 S1 주머니가 선택성에 기여
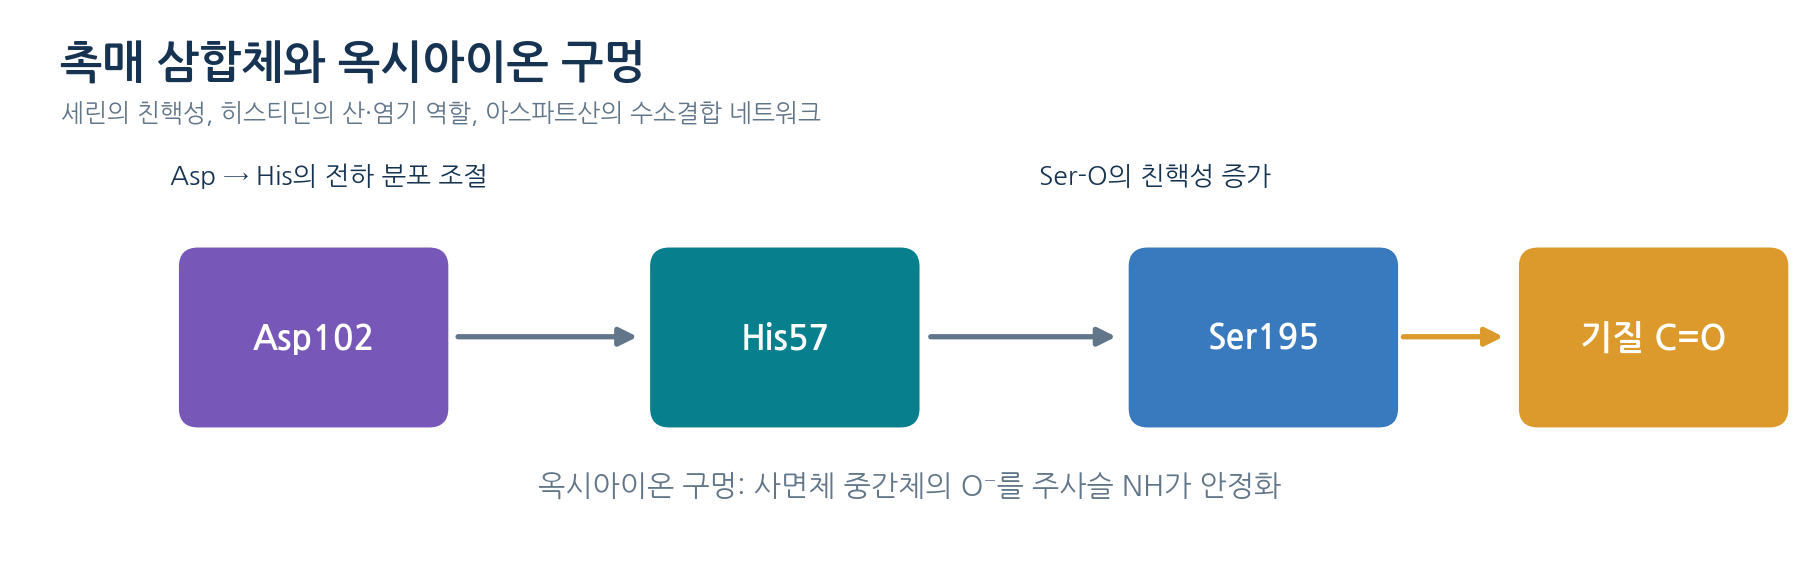
- 촉매 삼합체 Ser195–His57–Asp102: His57 일반 산·염기, Asp102 전하·배향 조절, Ser195 친핵성 공격
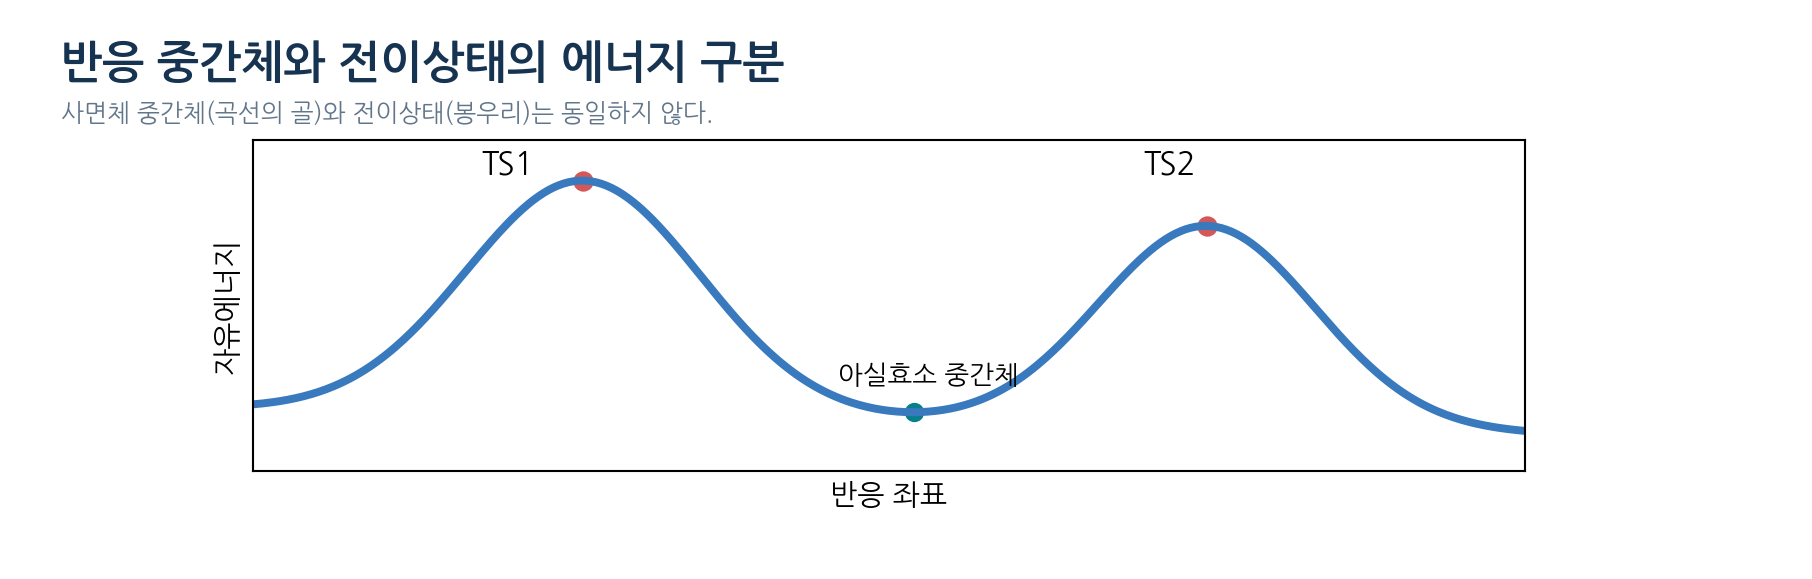
- 사면체 중간체의 음전하는 주사슬 NH의 산소 음이온 구멍이 안정화
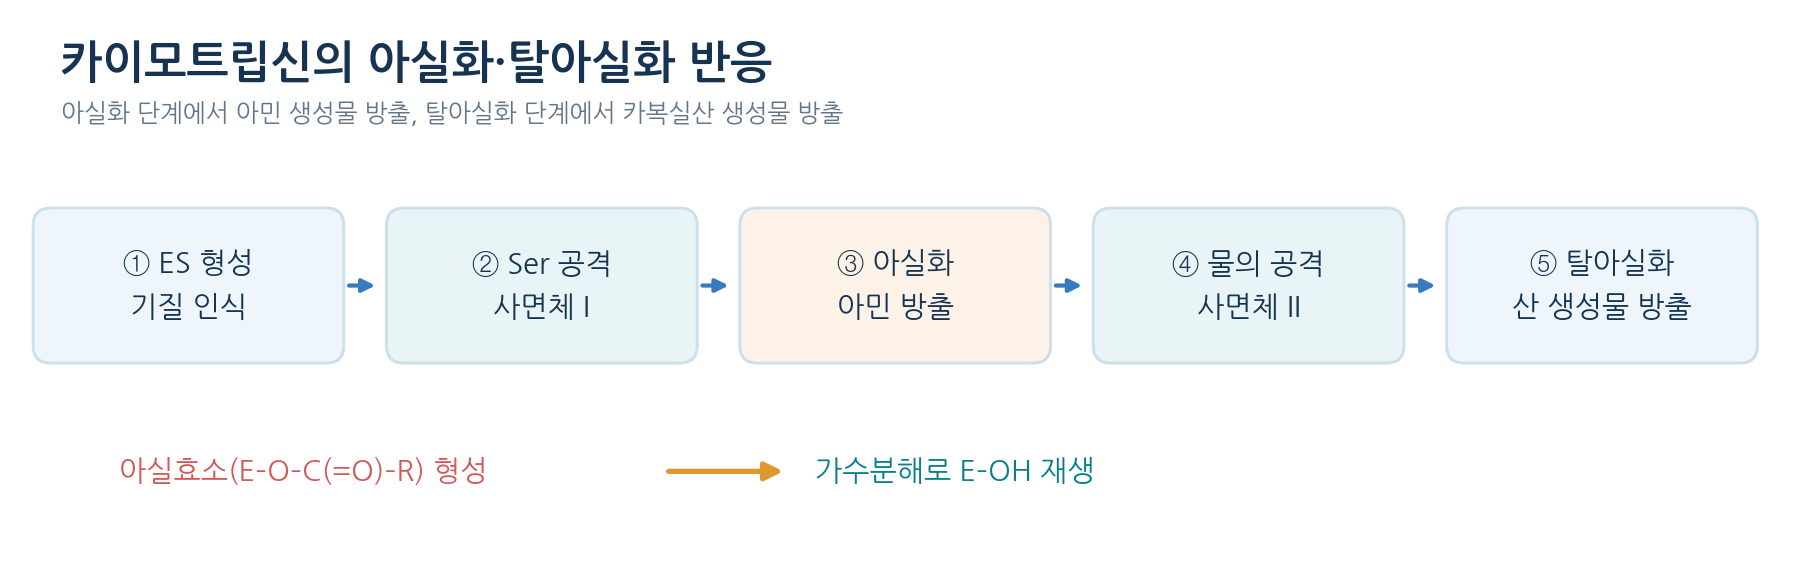
- 아실화: 첫 사면체 중간체 → 펩타이드 절단·아민 말단 이탈 → 아실효소 형성
- 탈아실화: 물이 친핵체로 아실효소 공격 → 두 번째 사면체 → 카복실산 방출·효소 재생
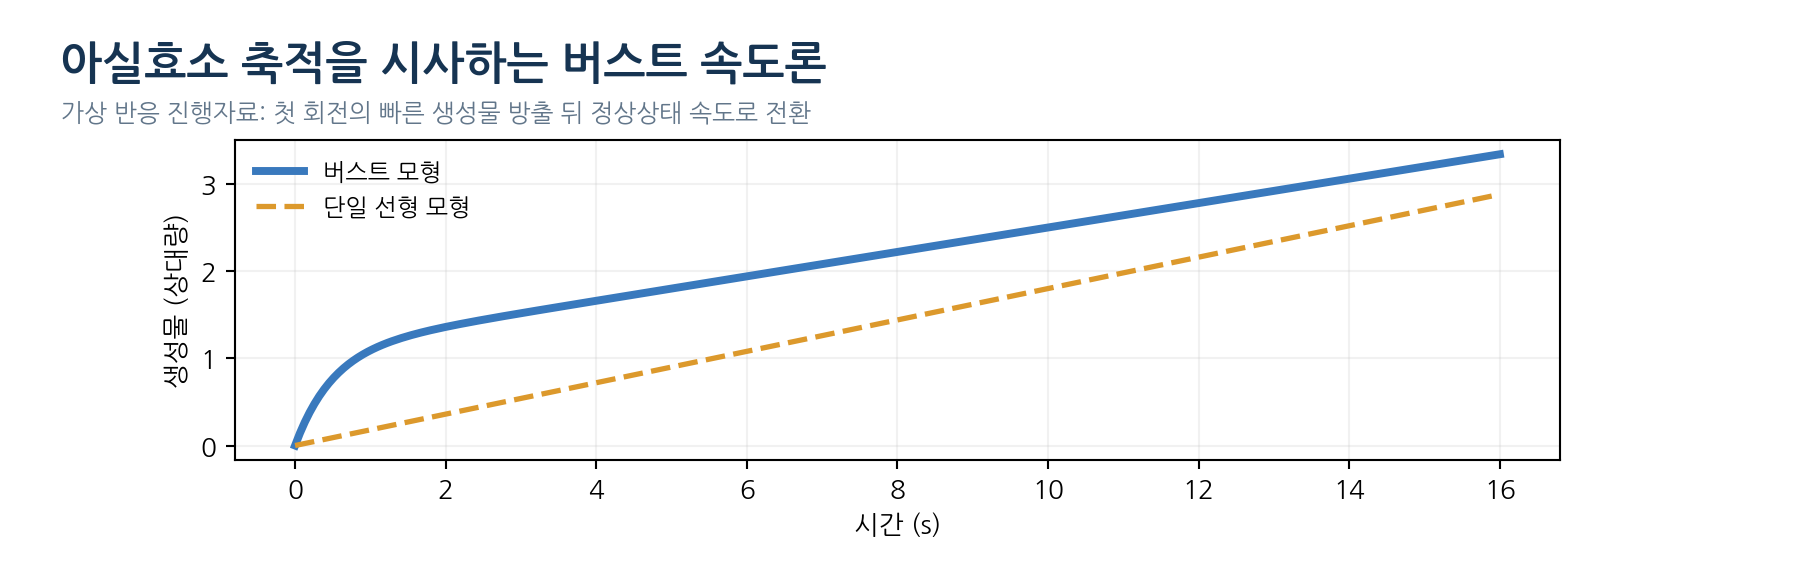
- 에스터 기질에서 버스트 후 느린 정상상태가 관찰되면 탈아실화가 제한 단계일 수 있으나 단정 불가
02
HIV 단백질분해효소와 기전 기반 치료제
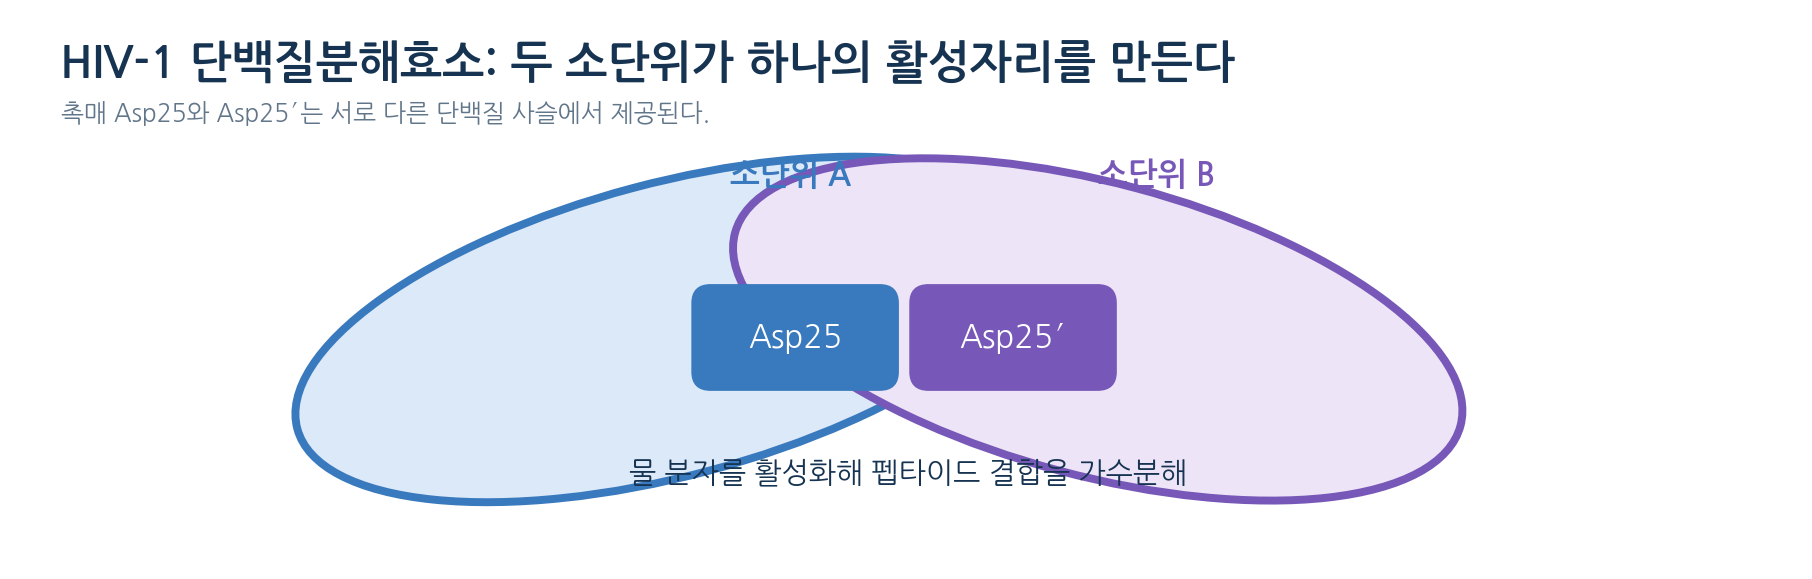
- 아스파트산 단백질분해효소로 Gag·Gag–Pol 폴리단백질을 절단해 바이러스 성숙을 돕는다
- 대칭 이합체, 각 소단위의 Asp25·Asp25′가 촉매 구조 형성, 물을 친핵체로 사용해 세린 아실효소 기전과 다름
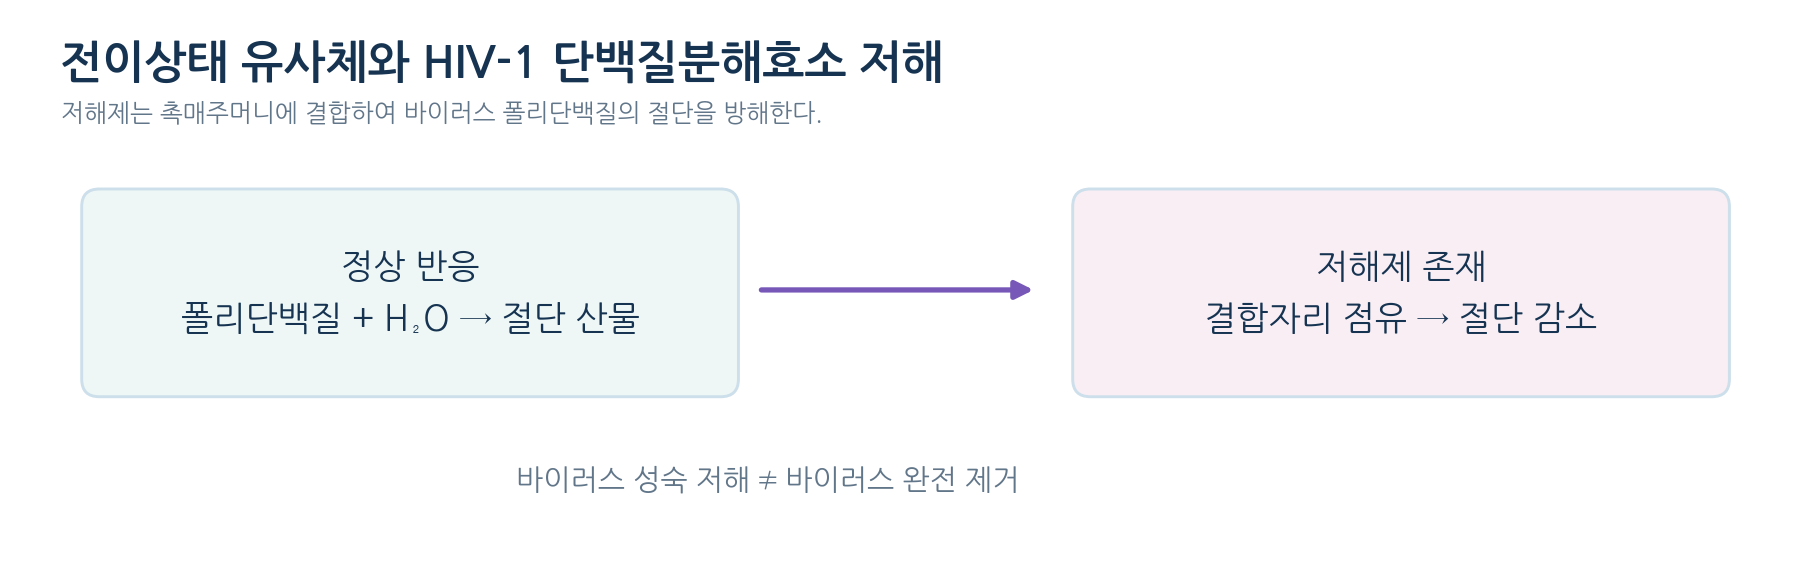
- 저해제는 절단 과정의 고에너지 상태를 닮은 비절단성 구조로 활성자리에 강하게 결합
- 폴리단백질 절단이 막혀 새 입자의 감염성이 감소하며 병용요법이 중요하고 HIV를 완전히 제거하지는 못함
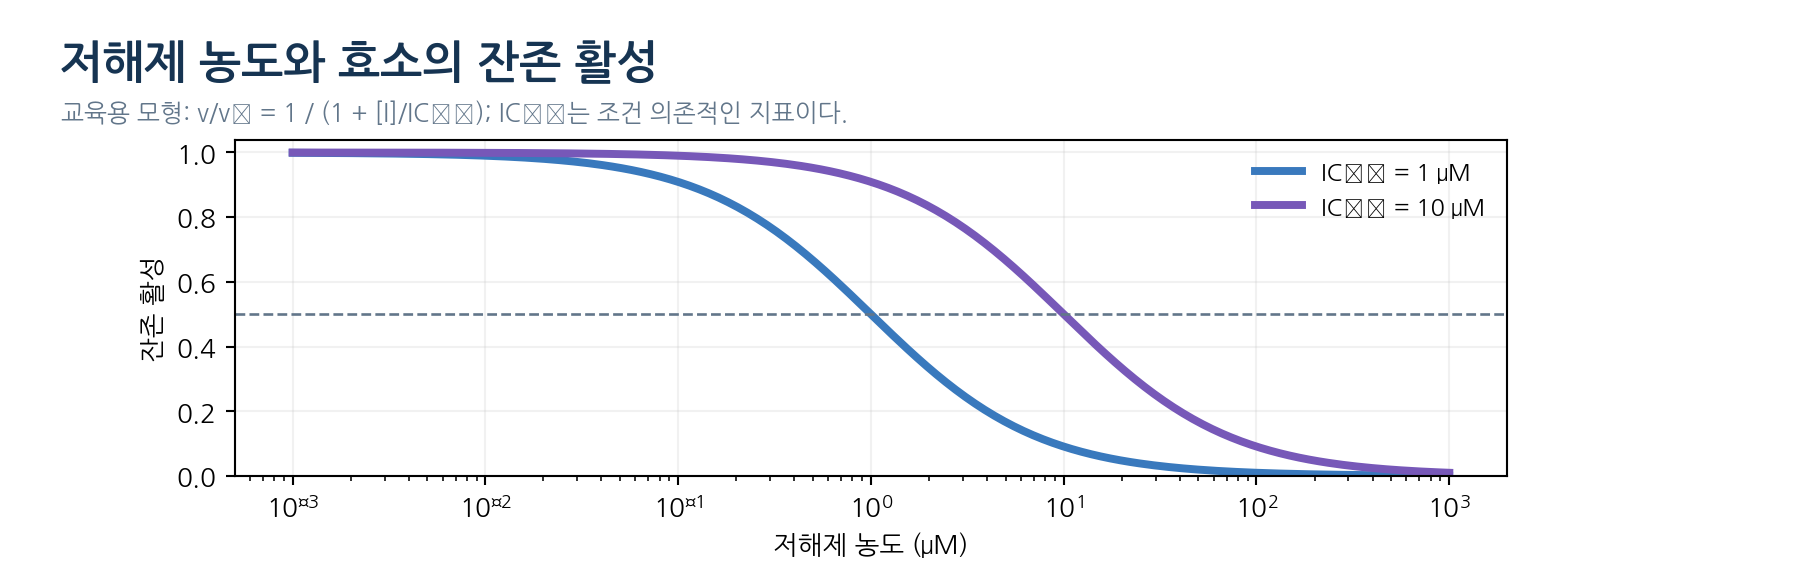
- IC₅₀(특정 조건의 50% 억제 농도)와 Kᵢ(모형 기반 평형 상수)는 자동으로 같지 않음
- 예: IC₅₀ 2.0 μM, [I] 6.0 μM이면 v/v₀ = 1/(1+3) = 0.25로 잔존 활성 25%
03
헥소키나아제의 기질 결합과 유도 적합
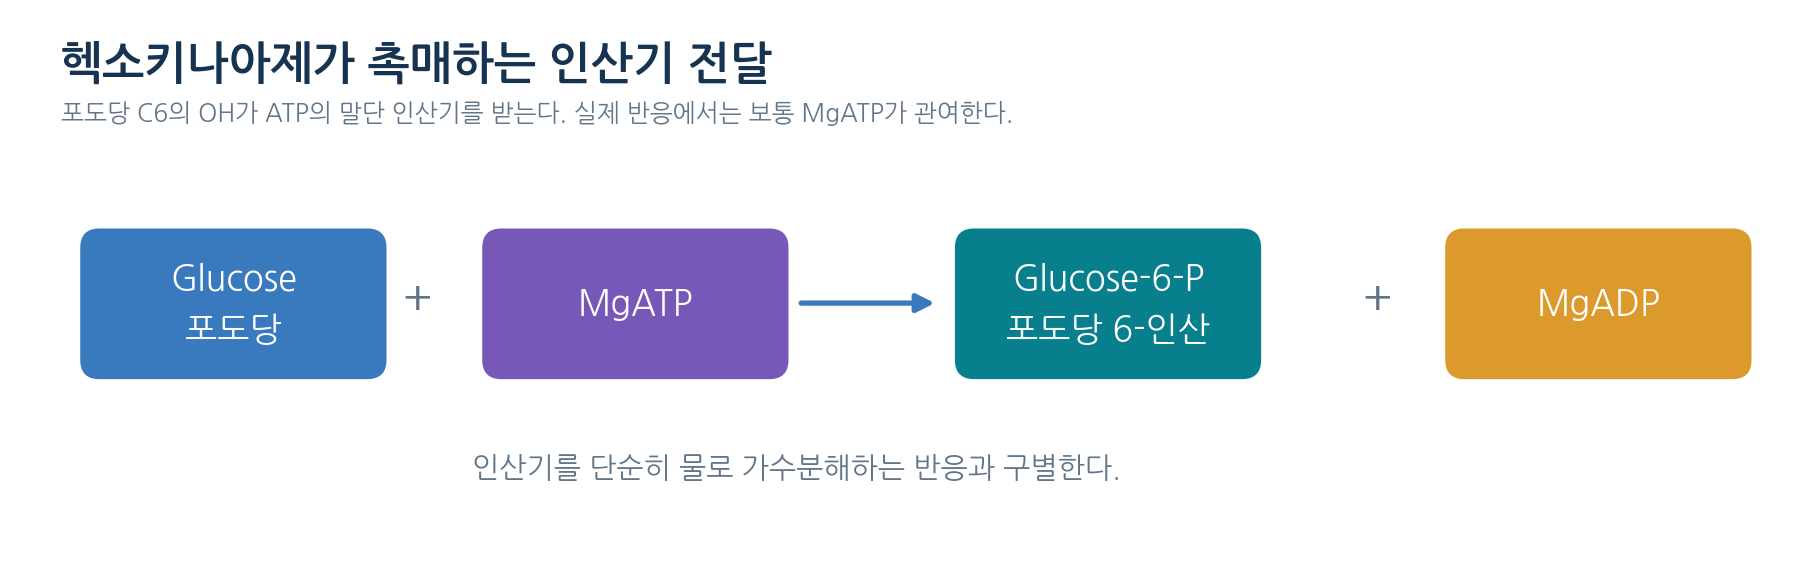
- 포도당 6번 탄소 인산화, 실제 인산기 공여체는 주로 MgATP 복합체
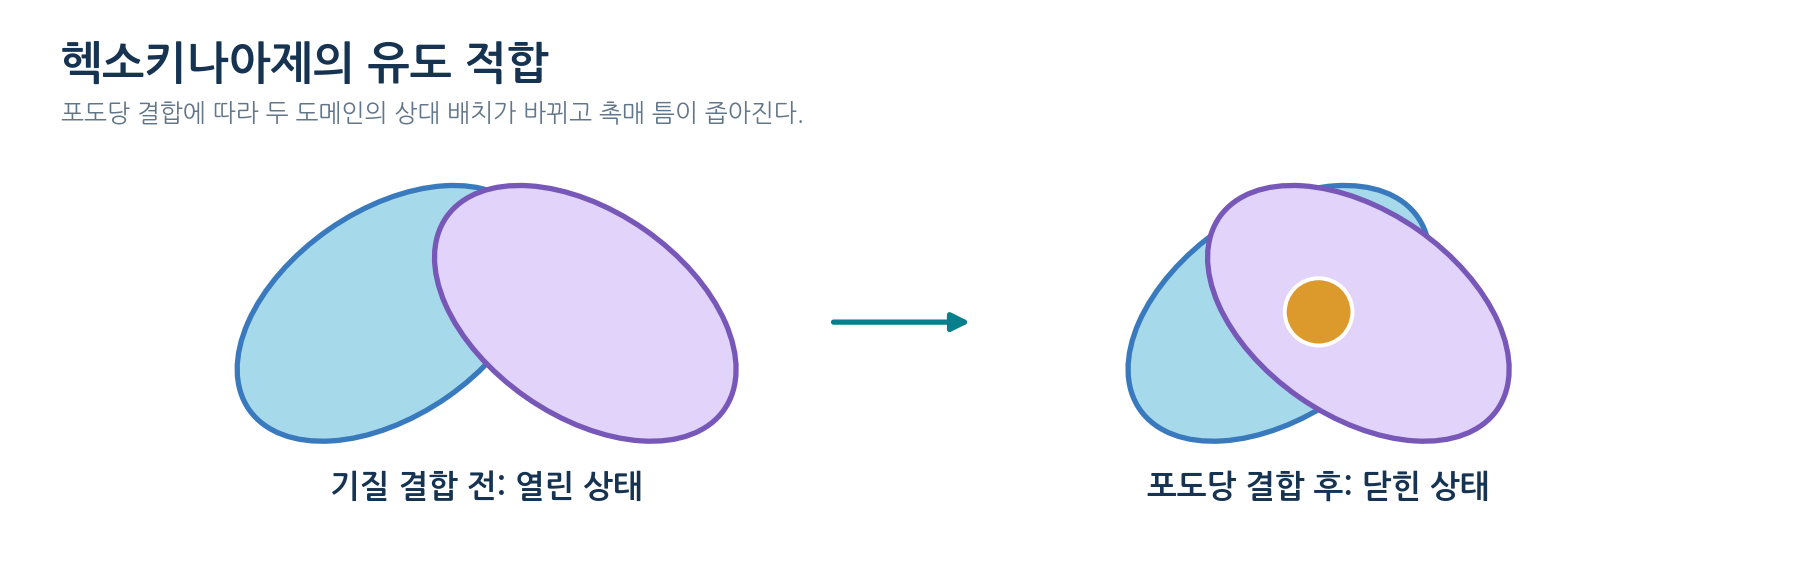
- 포도당 결합 시 두 도메인 사이 틈이 좁아지고 기질이 정렬되며 물 접근이 제한되어 ATP의 비생산적 가수분해를 억제
- 효모 헥소키나아제에서 포도당 결합과 관련된 약 12° 도메인 회전이 보고됨
- 유도 적합은 유연한 구조 변화의 역할을 강조하지만 선택성은 친화도·활성자리 성질·에너지 지형도 함께 관여
- 구조가 변한다는 관찰만으로 특정 단계의 촉매 효과 크기를 계산할 수는 없음
04
엔올레이스의 금속 이온 촉매
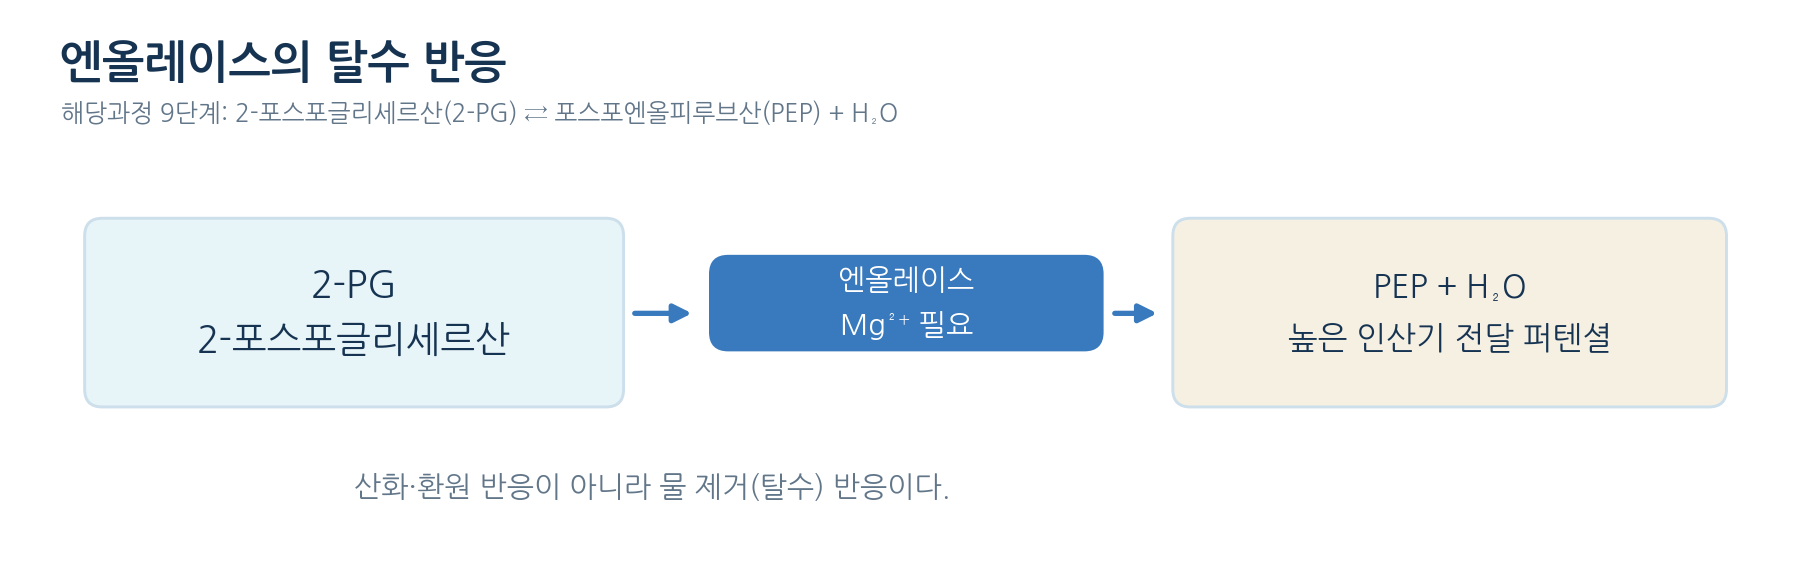
- 2-포스포글리세르산에서 물을 제거해 포스포엔올피루브산을 만드는 가역적 탈수효소(EC 4.2.1.11)
- 다음 단계의 피루브산 키나아제가 PEP의 인산기로 ATP를 만들지만, 이 단계의 본질은 ATP 생성이 아니라 탈수
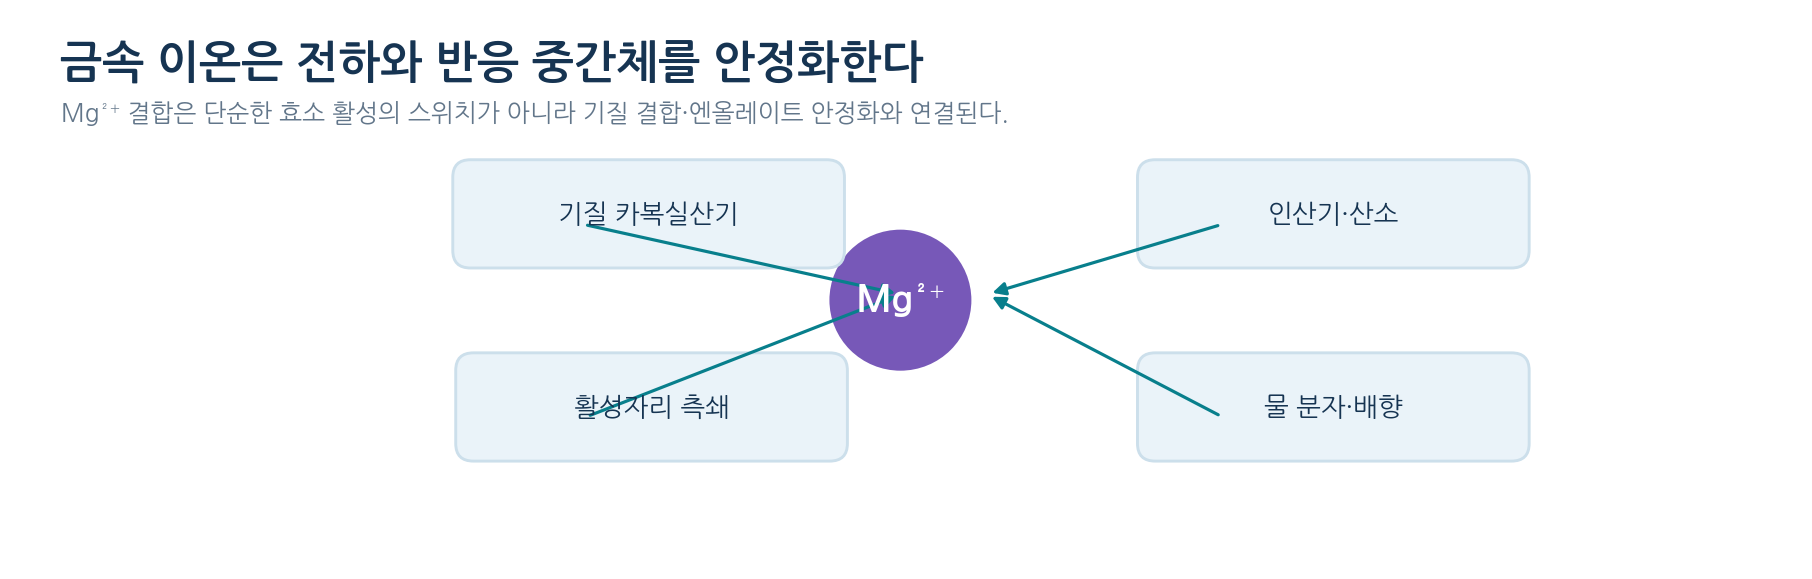
- Mg²⁺가 기질 산소와 배위하고 음전하 중간체를 안정화하며 활성자리 잔기가 양성자 이동을 돕는다
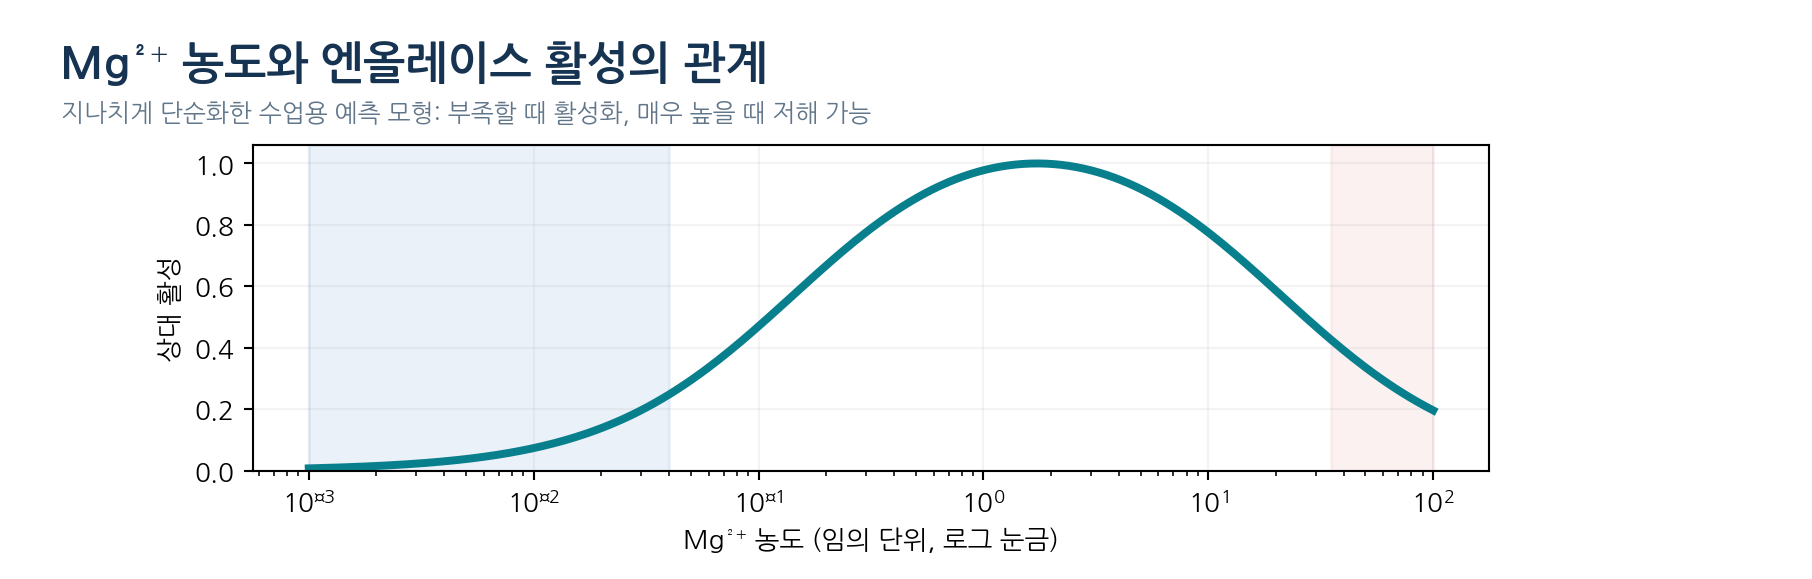
- Mg²⁺가 너무 낮으면 활성이 제한되고, 지나치게 높으면 추가 결합·생성물 방출 방해로 활성이 감소할 수 있음
- 실제 자료에서는 금속 종류, 자유 Mg²⁺ 농도, pH, 기질 농도를 함께 기록해야 함
05
라이소자임의 글리코시드 결합 절단
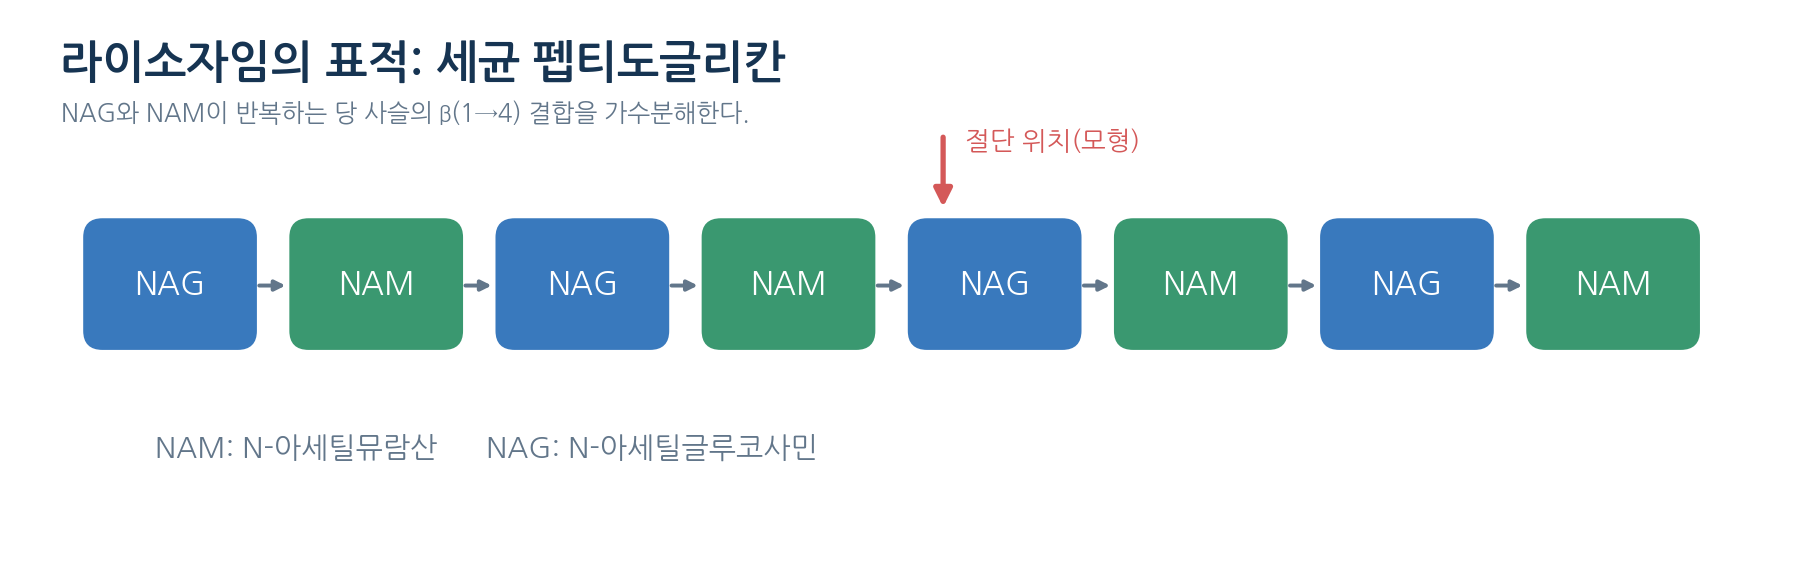
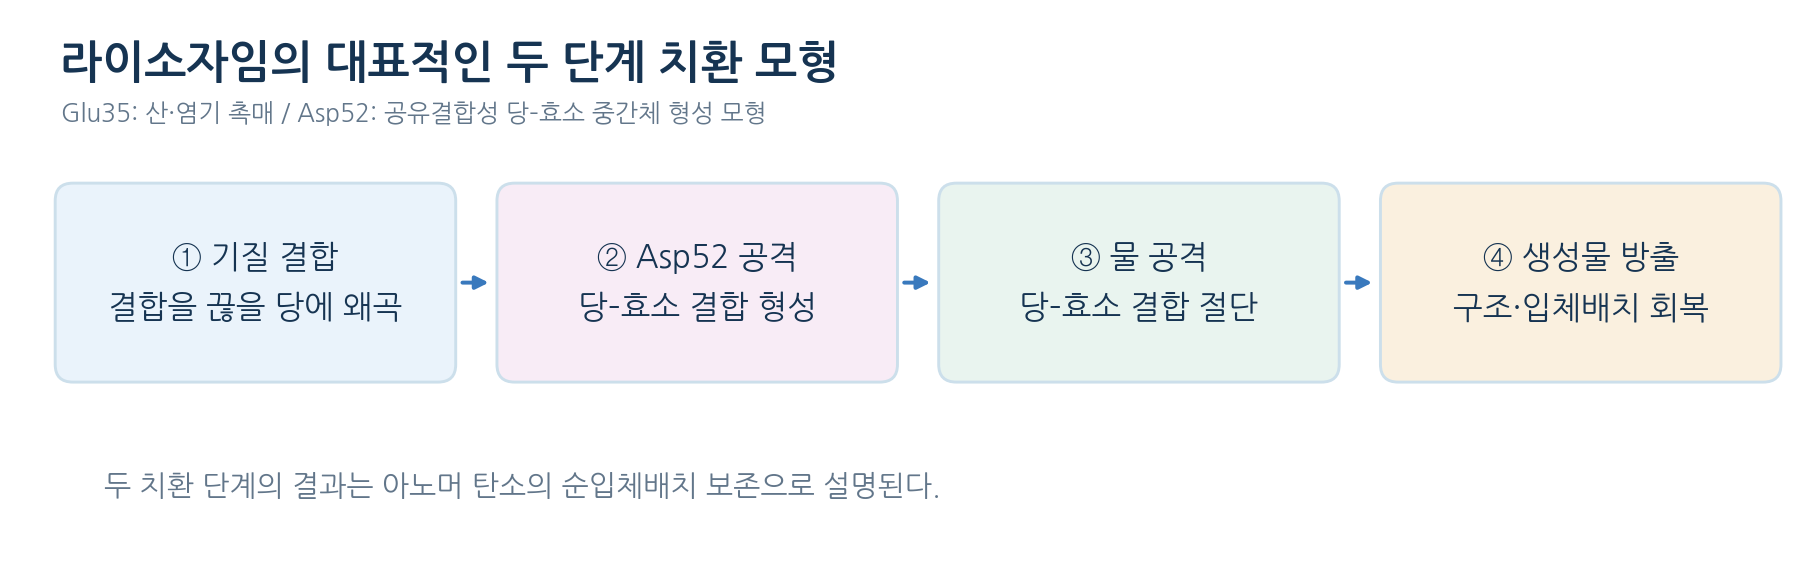
- 눈물·침·달걀흰자에 존재, 펩티도글리칸의 NAM–NAG β(1→4) 글리코시드 결합 가수분해
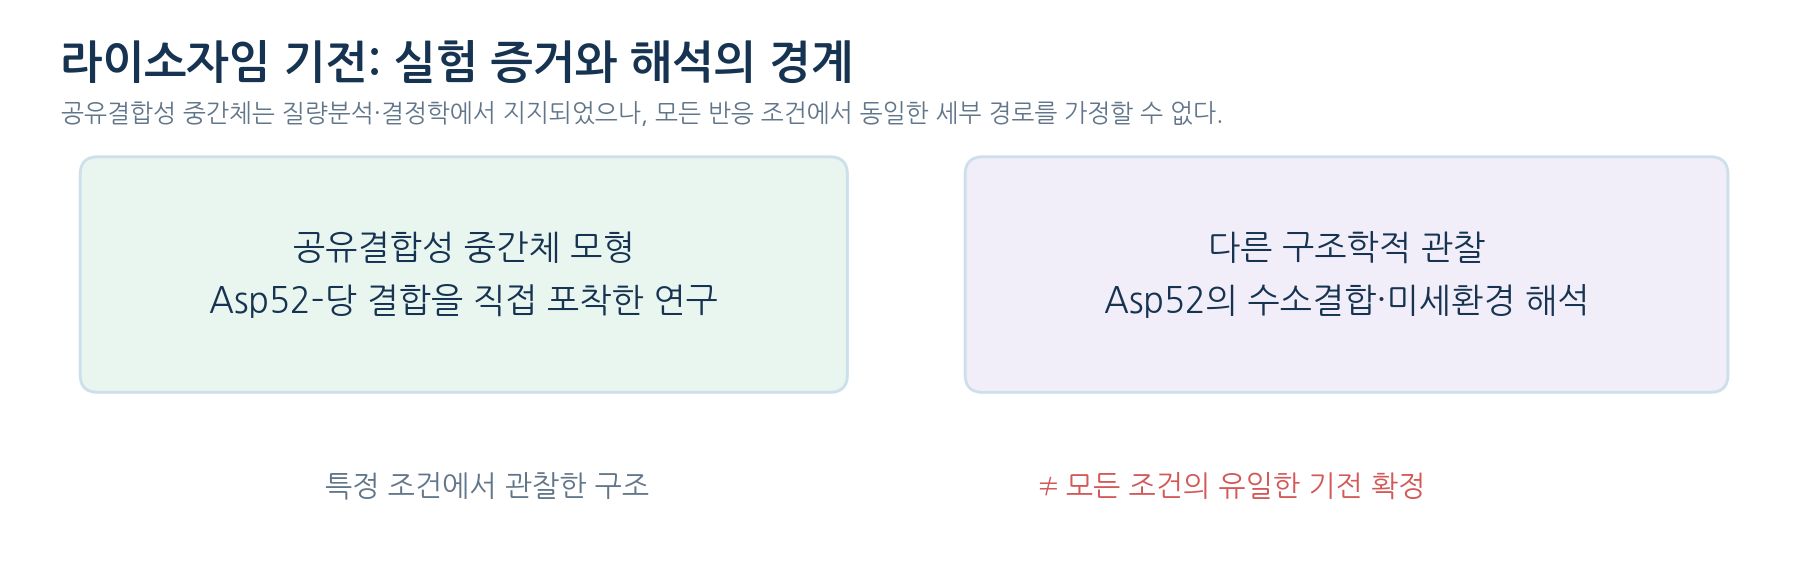
- 닭 난백 라이소자임의 Glu35는 산·염기 역할, Asp52는 음전하 안정화 또는 공유결합 중간체 형성에 관여
- 대표 기전 모형은 두 번의 연속 친핵성 치환으로, 첫 단계에서 당–효소 중간체가 생기고 물이 이를 끊는다
- 이 경로는 아닐 탄소의 순입체배치 보존을 설명하지만, 실제 전이상태가 항상 이상적 SN2라는 확정은 아님
- 공유결합 중간체 보고와 수소결합 네트워크 근거의 반론이 공존하므로 교과서 화살표와 실험 증거를 구별해야 함
06
효소 기전 이해와 항생제 개발
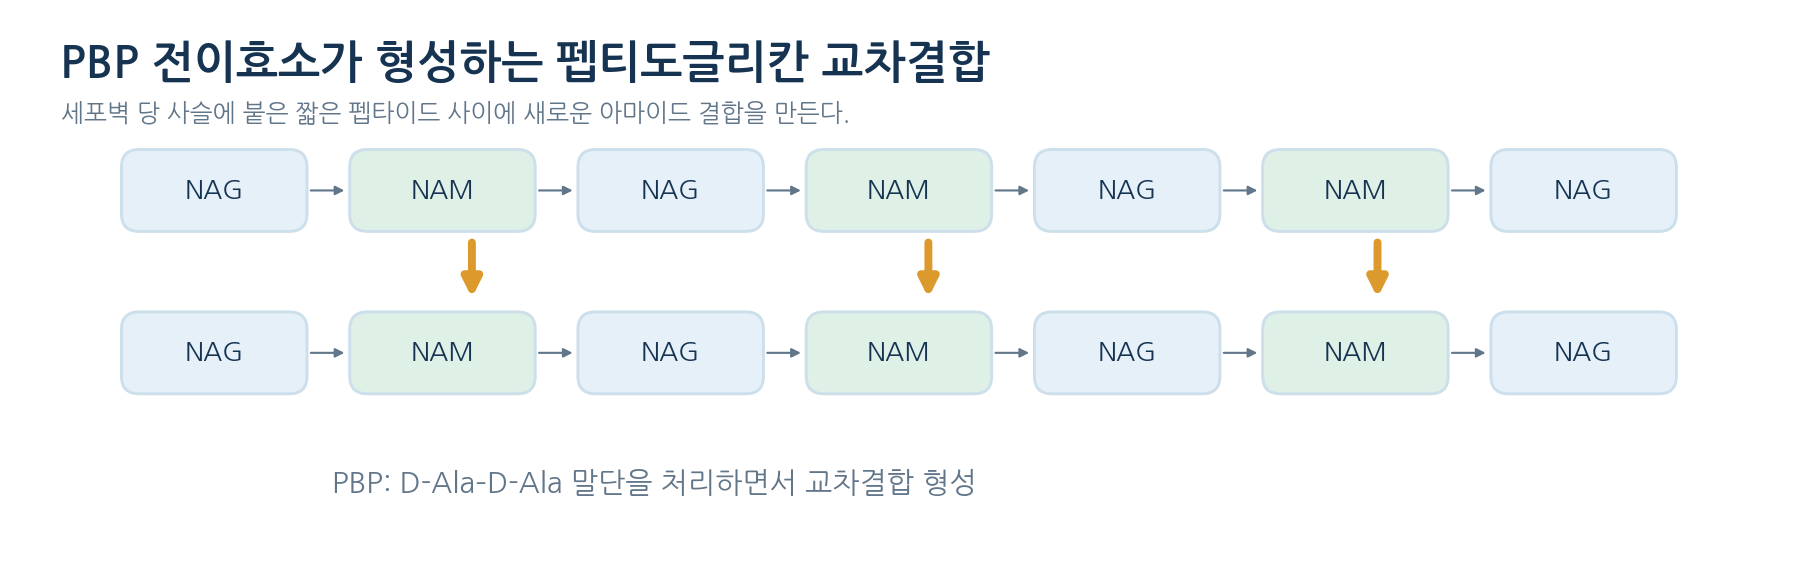
- 페니실린 결합 단백질은 펩티도글리칸 교차결합 효소군, 세린 전이효소가 D-Ala–D-Ala 말단을 처리
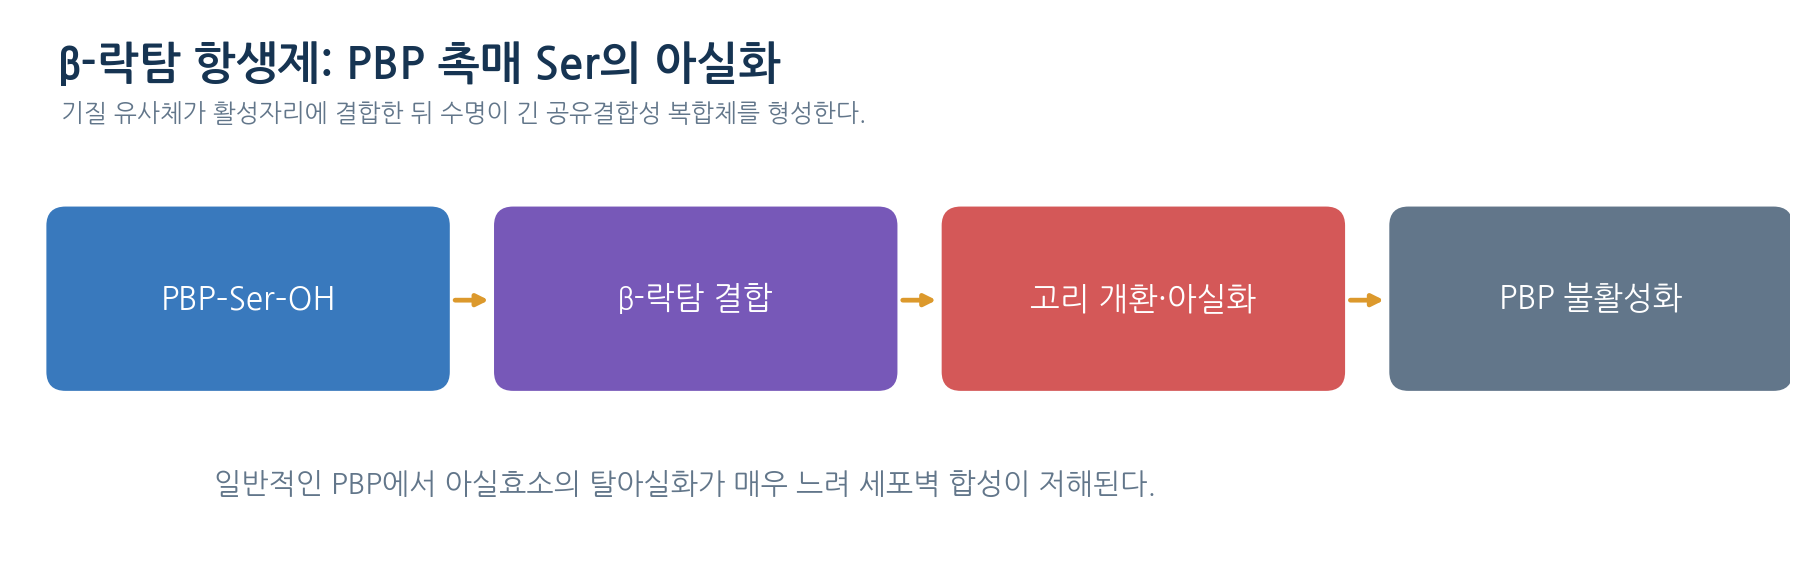
- β-락탐은 PBP 활성자리 Ser와 반응해 오래 유지되는 아실효소를 만들어 정상 반응 주기를 방해
- 내성 기전: β-락타마아제 분해, 표적 PBP 변형, 막 투과성 변화, 약물 배출
- 강한 결합만으로 좋은 약이 되지는 않으며 세포 내 도달성·선택성·독성·대사 안정성·내성 가능성을 함께 평가
07
여섯 효소의 촉매 기전 종합
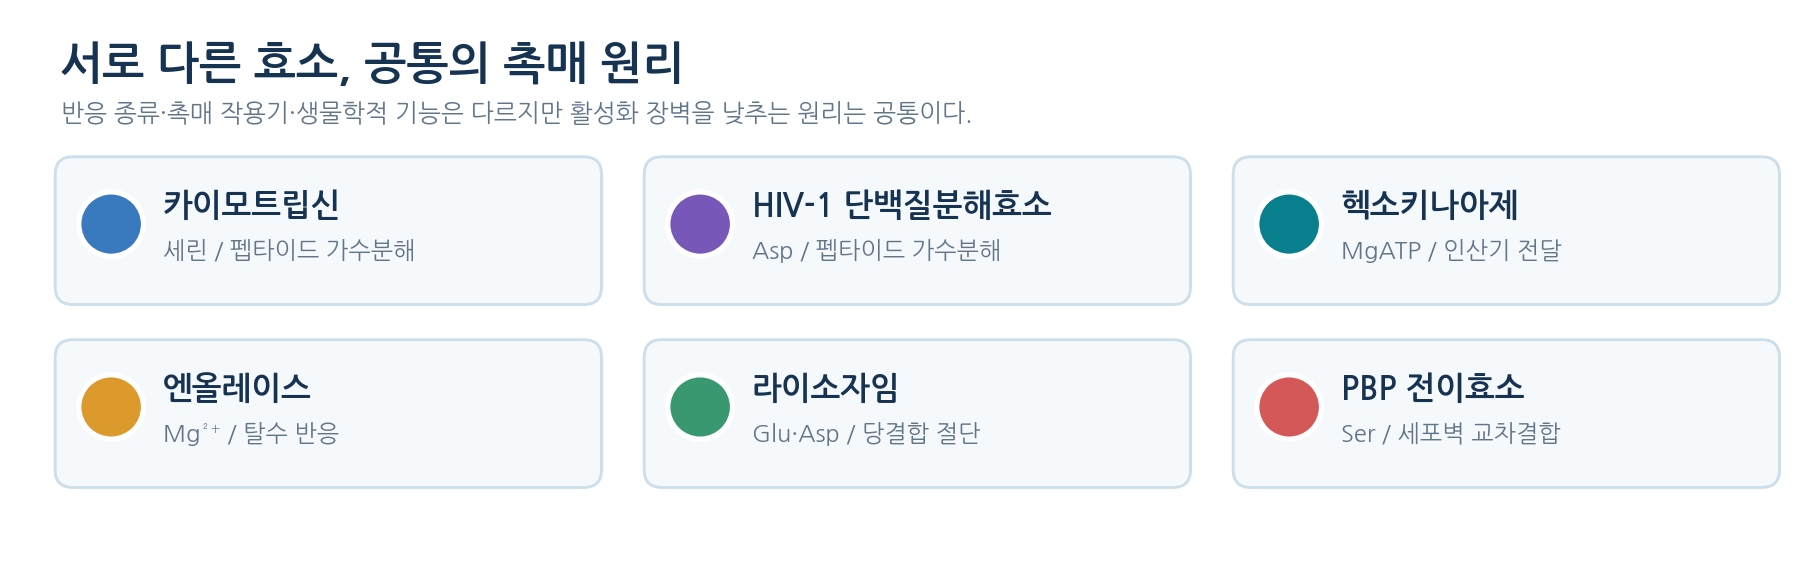
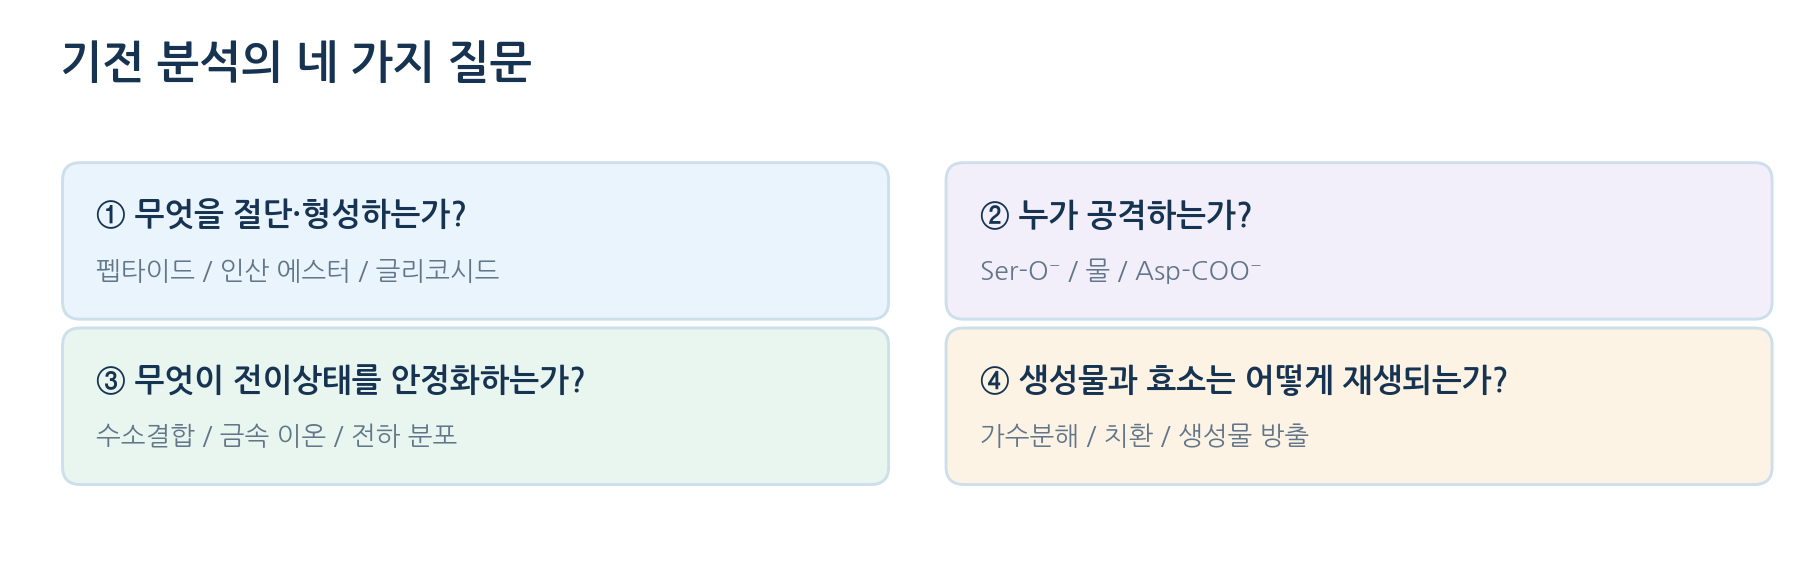
- 공통점: 활성자리가 기질을 정렬하고 전이상태를 선택적으로 안정화하며 순환 후 재생된다
- 친핵체의 정체가 다르다 — 세린 하이드록실(카이모트립신·PBP), 촉매 물(HIV 프로테아제), 금속 보조 물(엔올레이스)
- 아실효소 단계의 유무가 기전 구분의 핵심이며, 있다고 해서 모두 같은 기전은 아님
- 공유결합 중간체와 전이상태는 다르며, 버스트·구조·저해제 복합체 등 독립 증거를 함께 해석해야 함
참조 자료 · References
| 비교 항목 | 카이모트립신 | HIV-1 프로테아제 | PBP 전이효소 |
|---|---|---|---|
| 주요 친핵체 | Ser195 | 촉매 물 | 활성자리 Ser |
| 반응 대상 | 펩타이드 결합 | 바이러스 폴리단백질 | 세포벽 펩타이드 |
| 공유결합성 아실효소 | 일반적 핵심 단계 | 일반적 기전 아님 | 정상 반응에서 형성 |
| 관련 저해 | 전이상태 유사체 등 | 프로테아제 저해제 | β-락탐 항생제 |
| 효소 | 핵심 화학 변화 | 핵심 증거 | 혼동하기 쉬운 점 |
|---|---|---|---|
| 카이모트립신 | Ser 아실화 → 물에 의한 탈아실화 | 중간체·버스트·활성자리 구조 | 전이상태 ≠ 중간체 |
| HIV-1 프로테아제 | Asp 보조 물 공격·가수분해 | 이합체 구조·저해제 복합체 | 세린 아실효소가 아님 |
| 헥소키나아제 | ATP의 인산기 전달 | 기질 결합 전후 구조 변화 | ATP 단순 가수분해가 아님 |
| 엔올레이스 | 2-PG 탈수 → PEP | Mg²⁺ 배위 구조·속도론 | 반응 자체는 ATP 합성이 아님 |
| 라이소자임 | 글리코시드 결합 가수분해 | Asp52·Glu35·중간체 연구 | 기전의 세부 모형은 연구 중 |
| PBP | 세포벽 교차결합 형성 | Ser 아실효소·β-락탐 복합체 | 항생제는 정상 기질이 아님 |