01
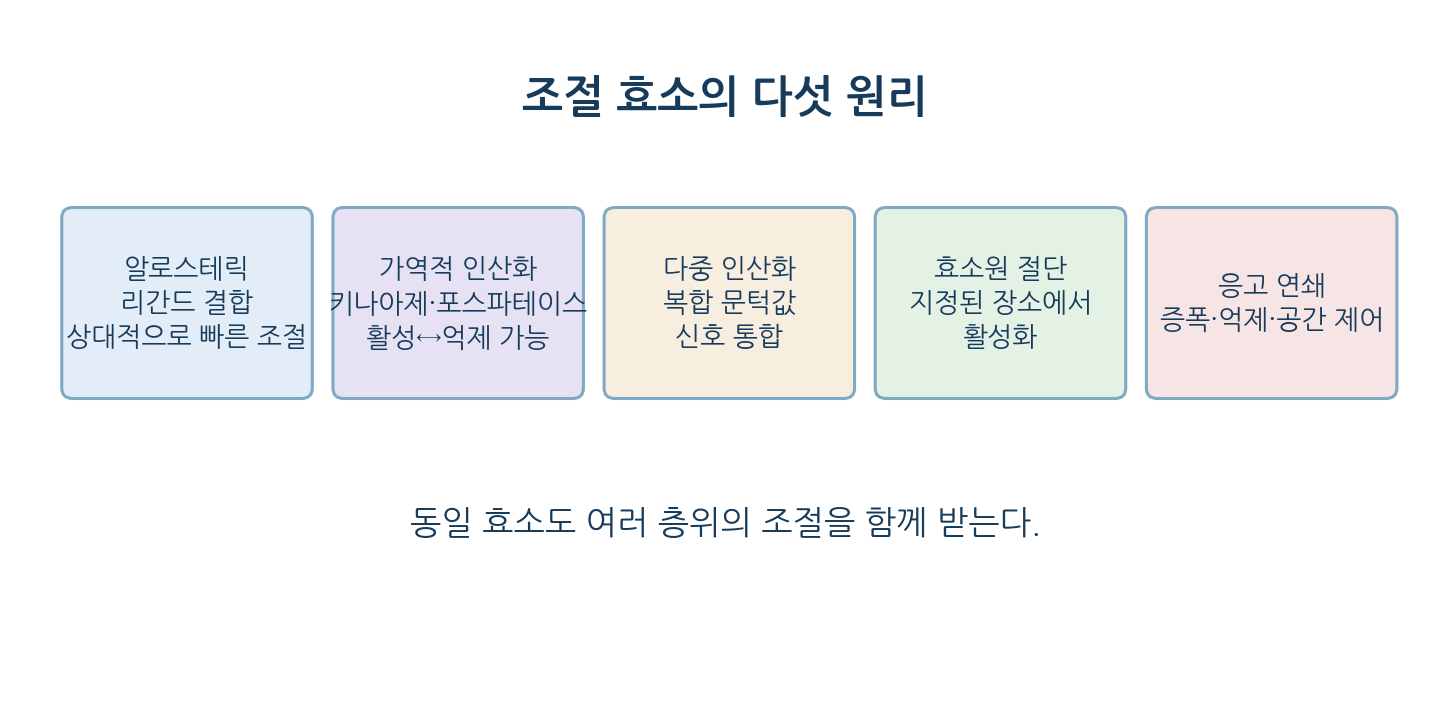
알로스테릭 효소는 조절자의 결합에 반응하여 입체형태를 바꾼다
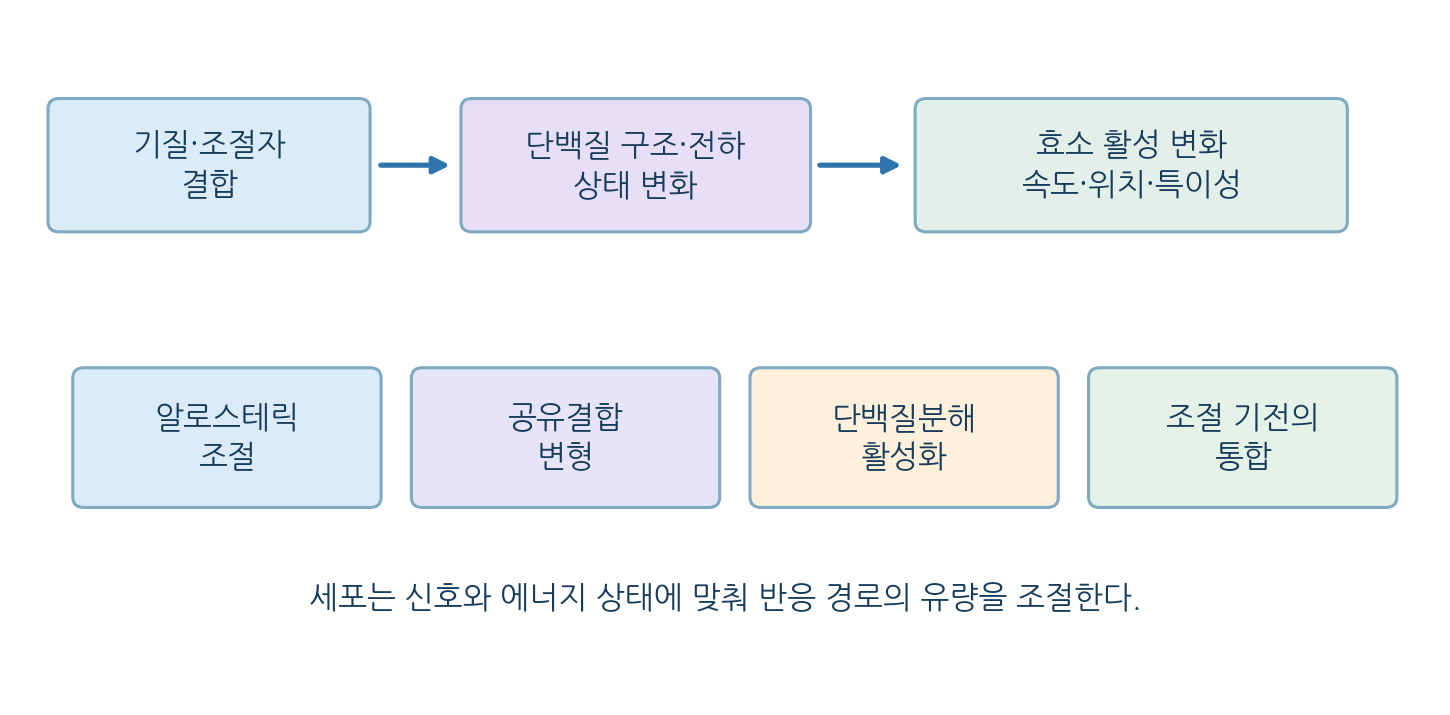
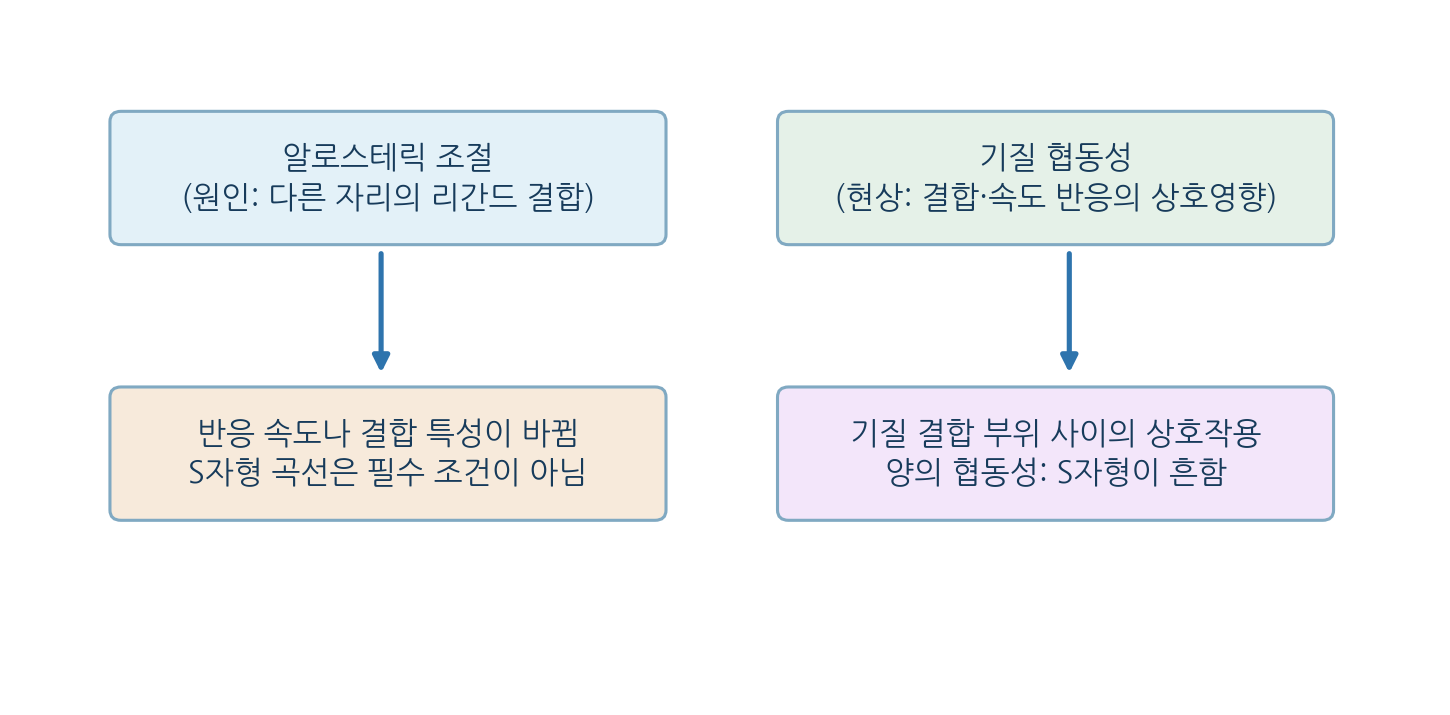
- 알로스테릭 조절 = 조절 물질이 한 위치에 결합해 다른 위치의 구조·기능이 변하는 현상
- 조절자 결합 자리는 활성자리와 구별되는 경우가 많고, 활성을 높이면 활성자·낮추면 억제자
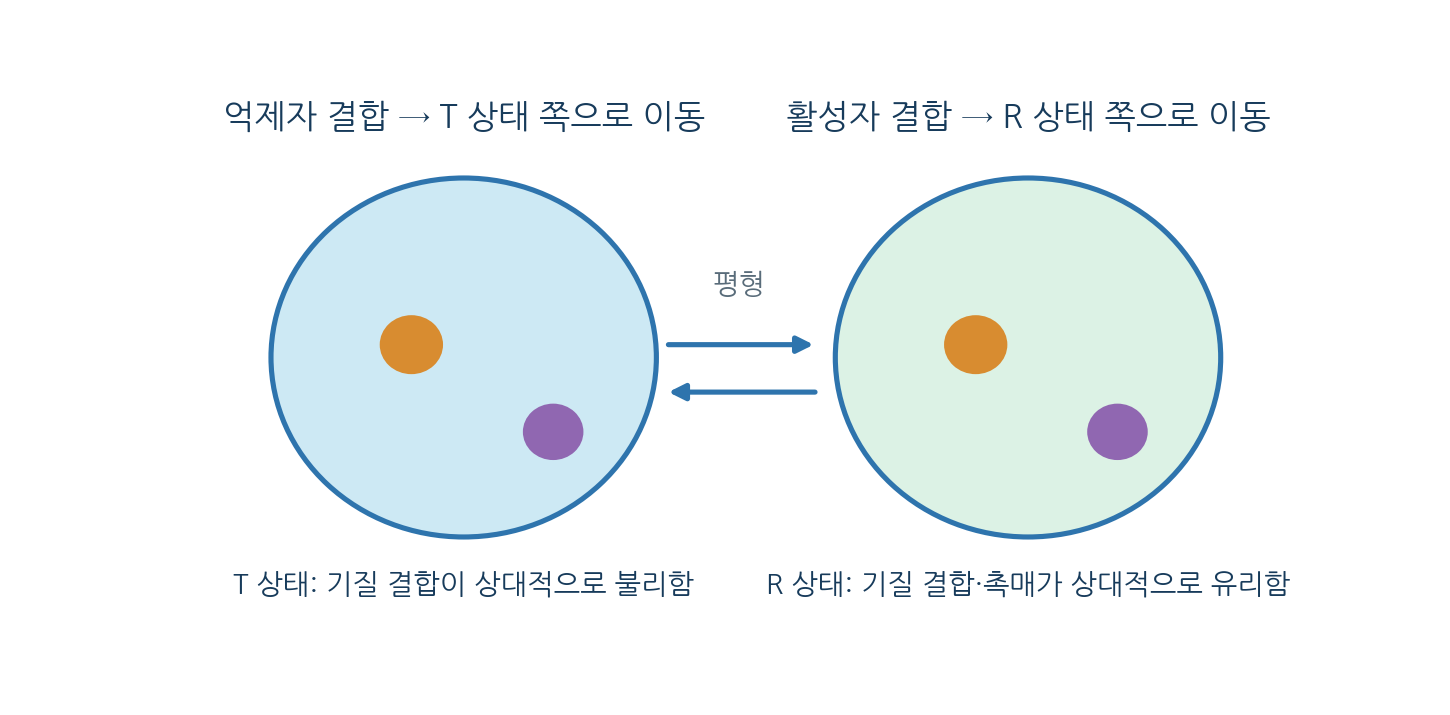
- T(긴장)·R(이완) 상태 모형은 단순화이며 실제 효소는 더 다양한 상태를 가질 수 있음
- 조절자는 특정 상태의 상대적 안정도를 바꿔 효소 집단의 분포를 이동시킴
- 협동성은 한 자리의 결합이 다른 자리의 친화도·반응성을 바꾸는 성질이지만 모든 알로스테릭 효소가 협동성을 보이지는 않음
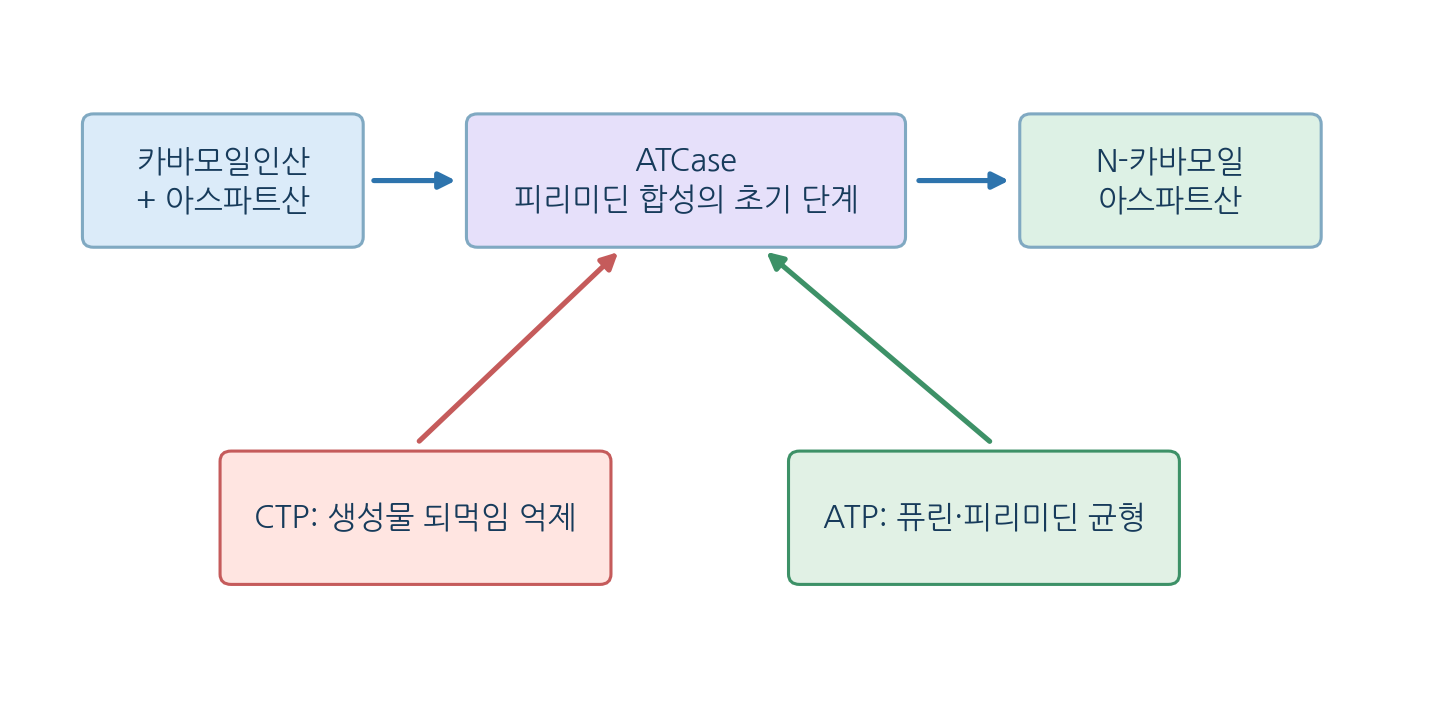
- 예: ATCase는 CTP의 음성 되먹임과 ATP의 균형 신호를 받는다
02
조절 효소의 속도론은 미하엘리스–멘텐 양상과 다를 수 있다
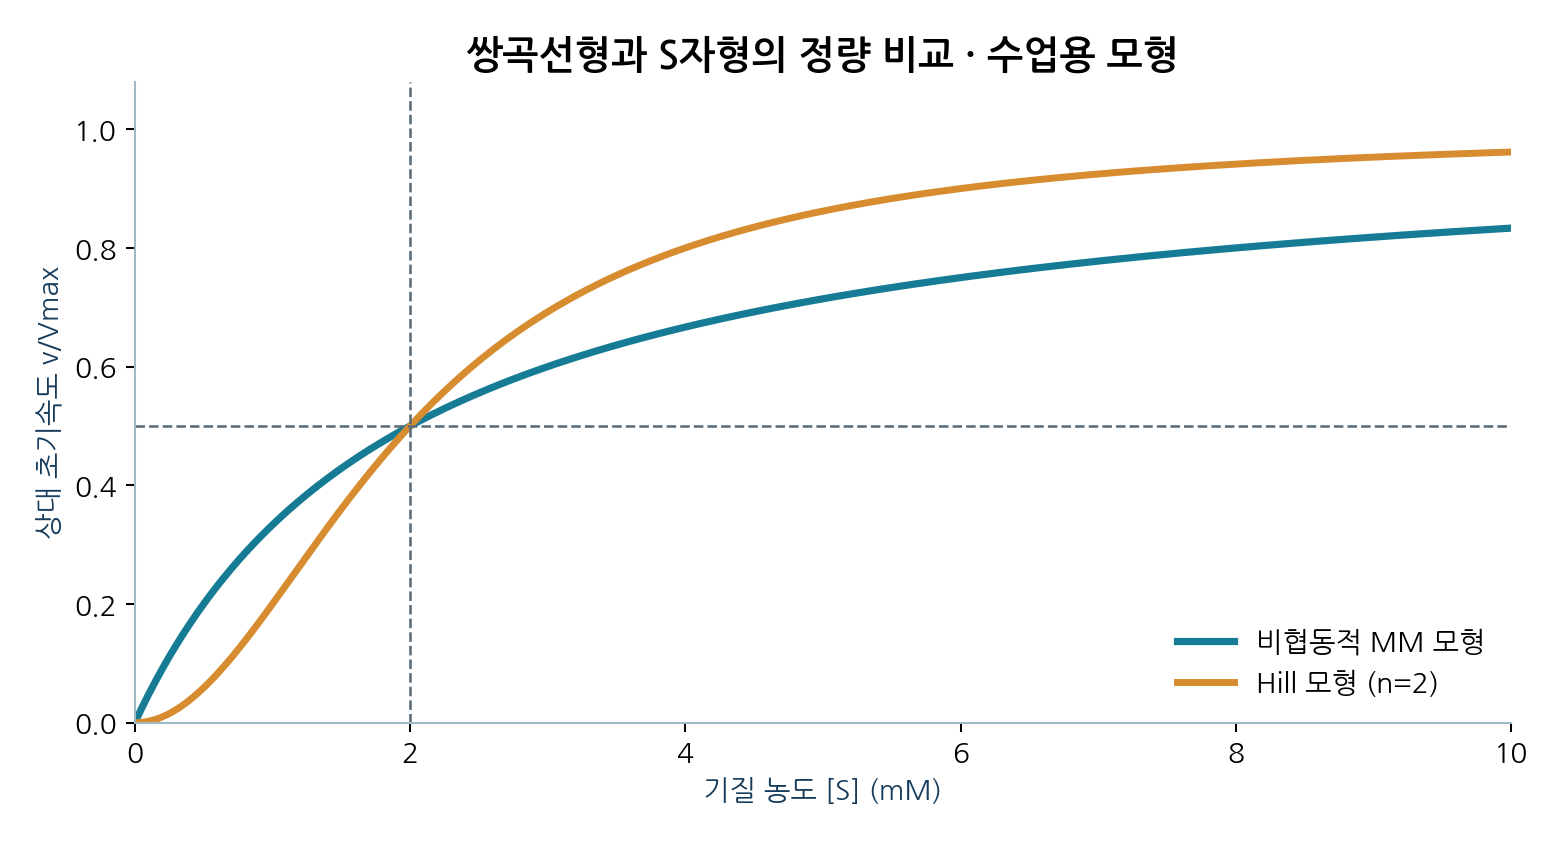
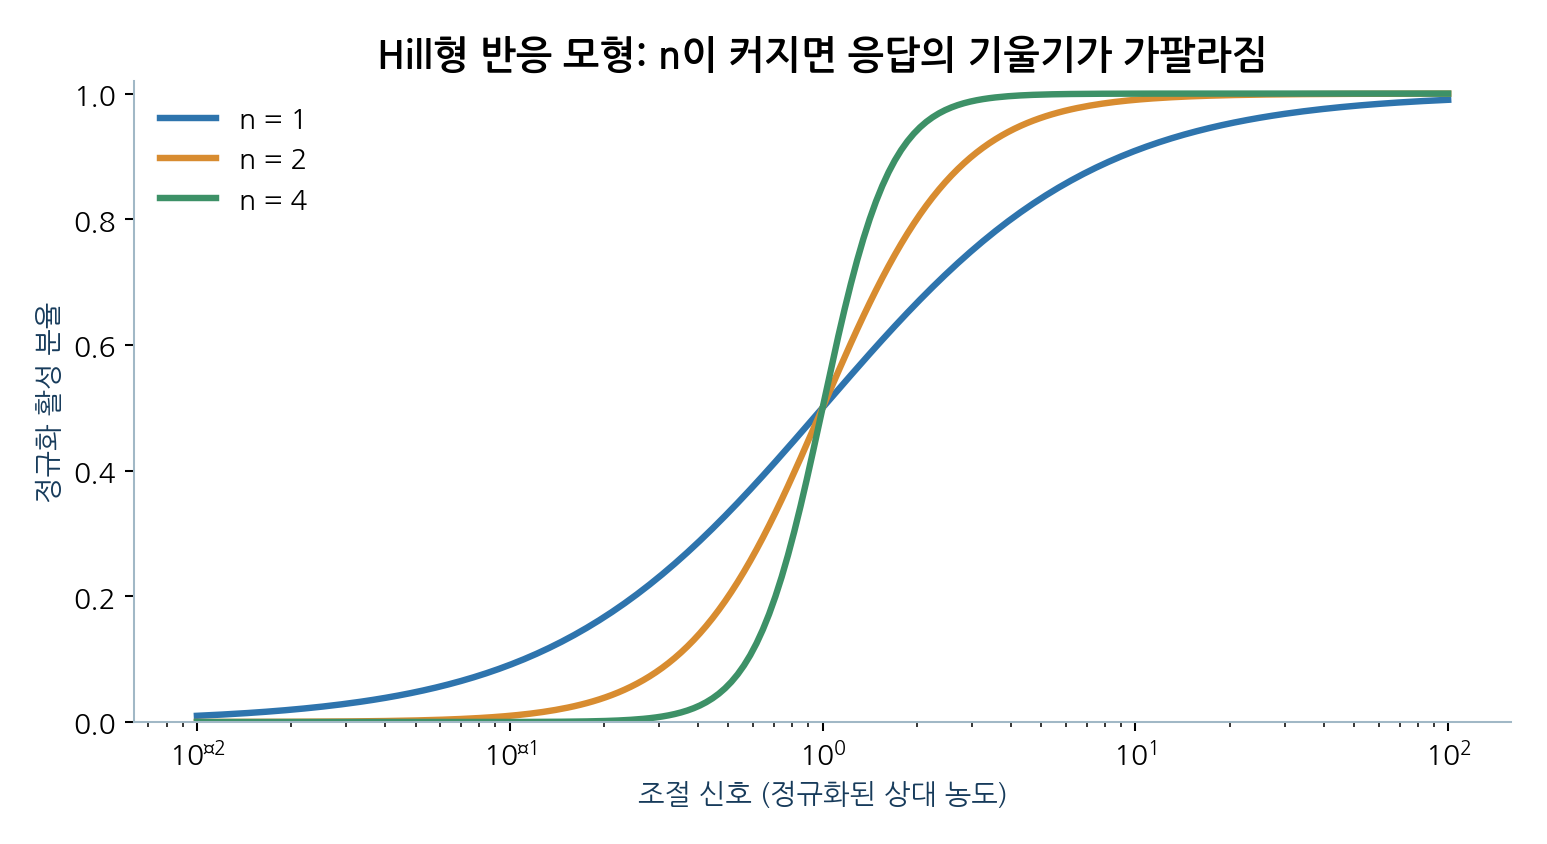
- 양의 협동성 근사에 Hill형 식 v/Vmax = [S]^nH/(K0.5^nH + [S]^nH) 사용
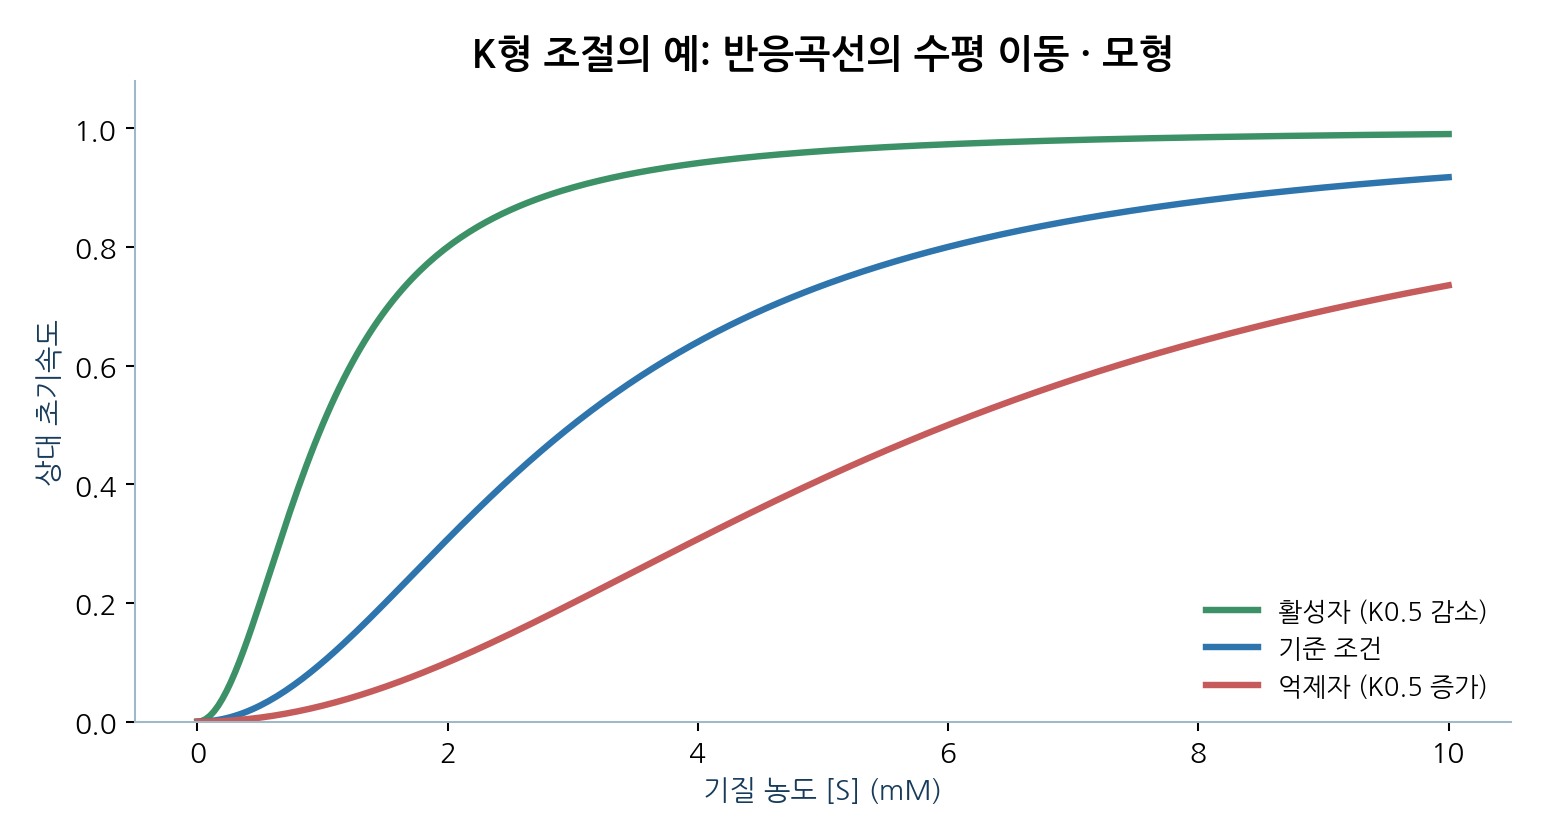
- K0.5 = Vmax의 절반이 되는 기질 농도, nH는 곡선의 가파름 지표로 실제 결합자리 수와 같지 않음
- nH = 1이면 쌍곡선, nH > 1이면 S자형, nH < 1은 부의 협동성 외 여러 비균일성으로도 설명
- K형 조절은 겉보기 K0.5를, V형 조절은 최대 속도를 바꾸며 두 특성이 함께 변할 수 있음
- 예: K0.5 2.0 mM, nH 2, Vmax 100이면 [S] 4.0 mM에서 v = 80, 90% 도달 농도는 6.0 mM
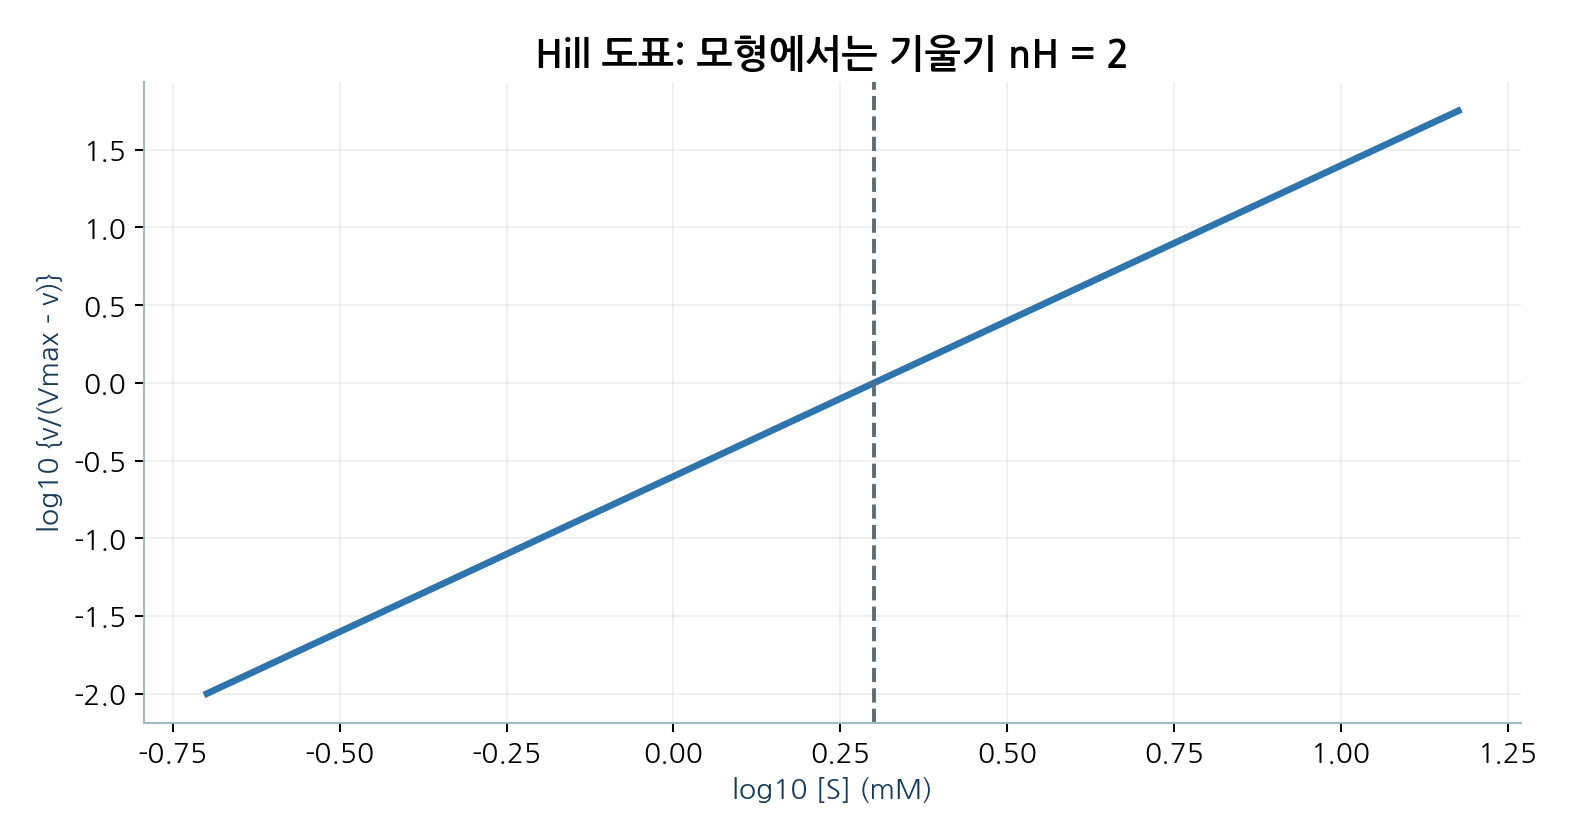
- Hill 도표는 log{v/(Vmax−v)} 대 log[S]로 그리며 실제 기울기는 모든 구간에서 일정하지 않음
03
몇 가지 효소는 가역적 공유결합 변형에 의해 조절된다
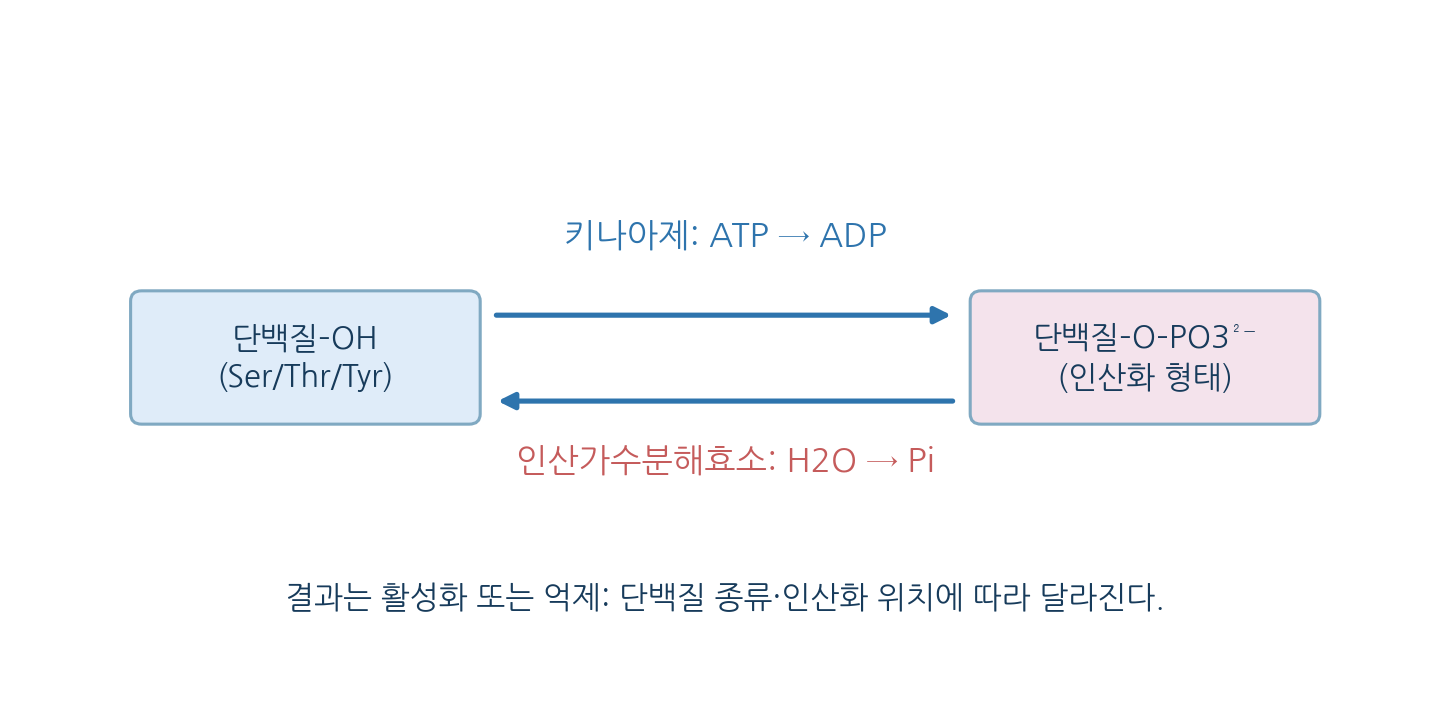
- 단백질 키나아제가 ATP의 인산기를 Ser·Thr·Tyr 하이드록시기에 전달, 포스파테이스가 가수분해로 제거
- 인산화는 음전하를 더해 수소결합·염다리·금속 결합·단백질 상호작용에 영향을 준다
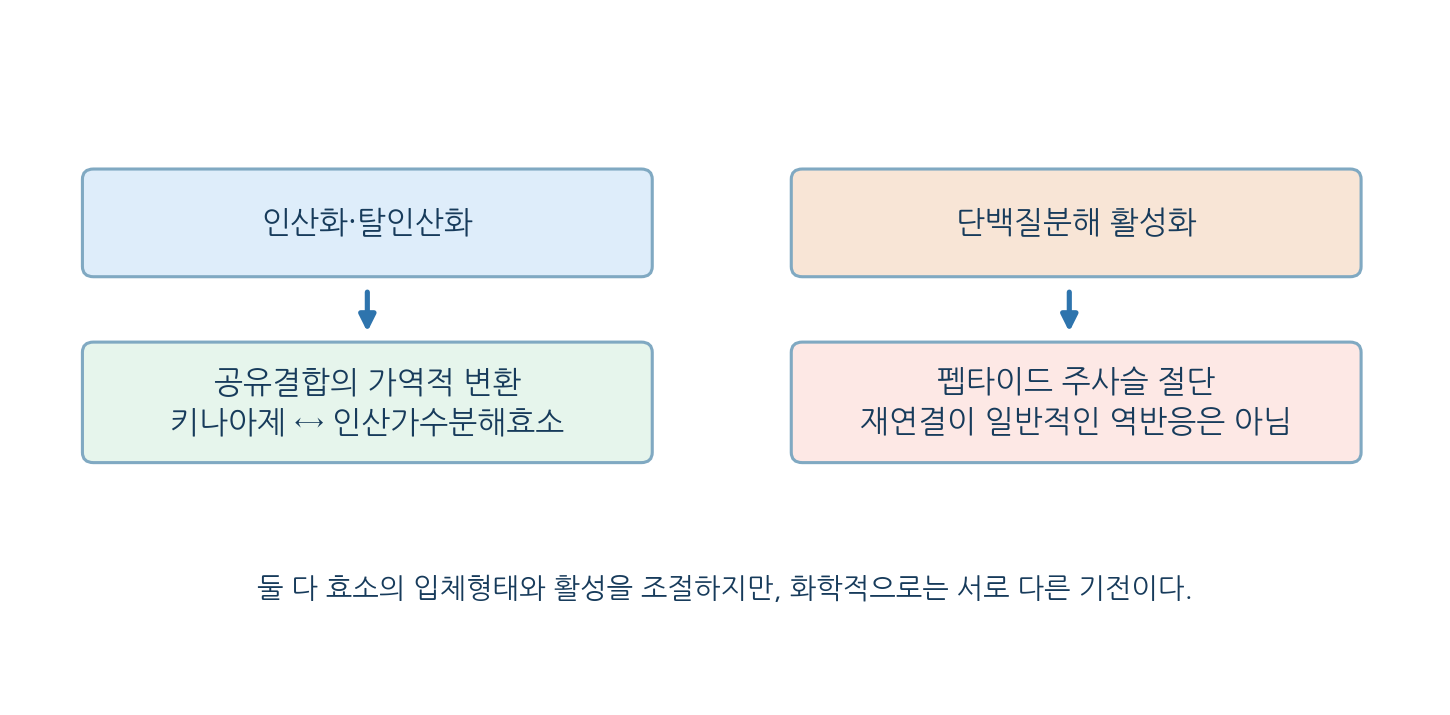
- 효소에 따라 활성화 또는 억제가 일어나므로 “인산화 = 활성화”는 일반 법칙이 아님
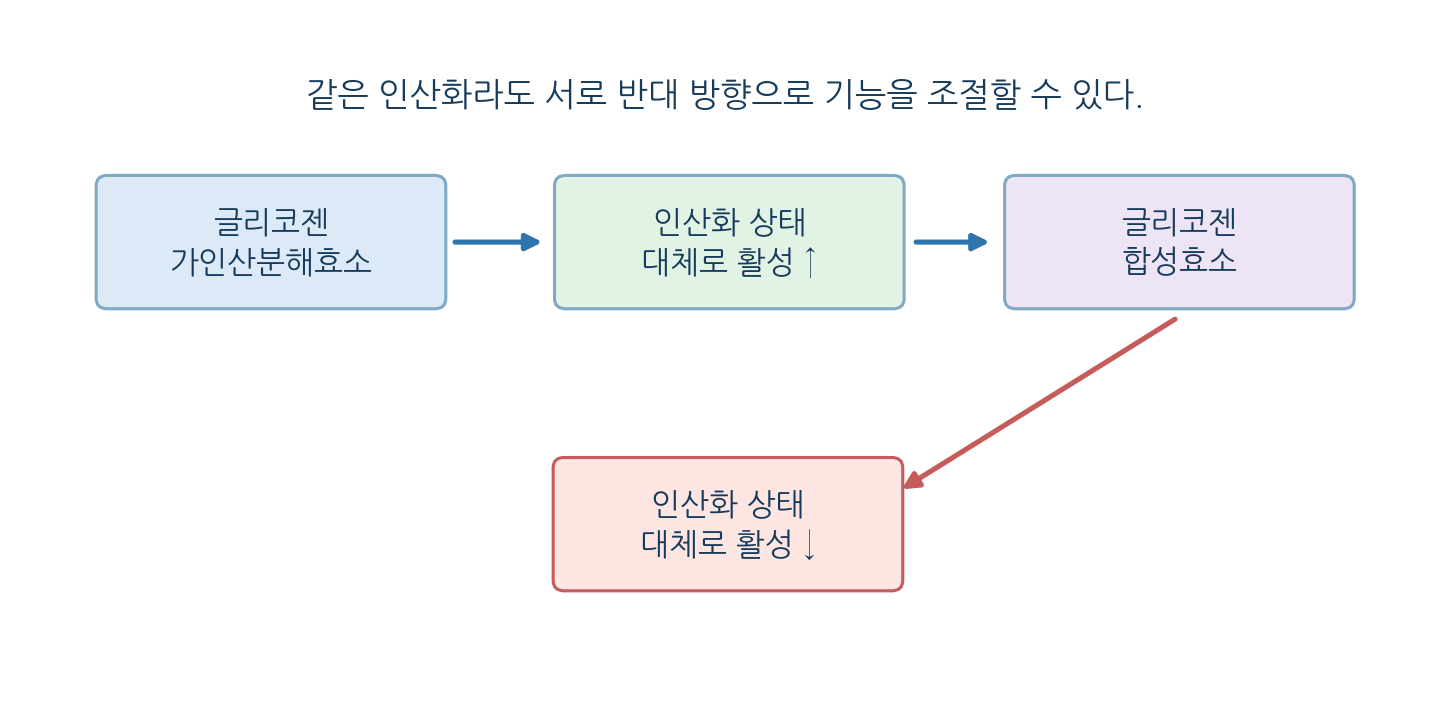
- 글리코젠 가인산분해효소는 인산화로 활성화, 글리코젠 합성효소는 인산화로 불활성화되어 동시 진행을 막는다
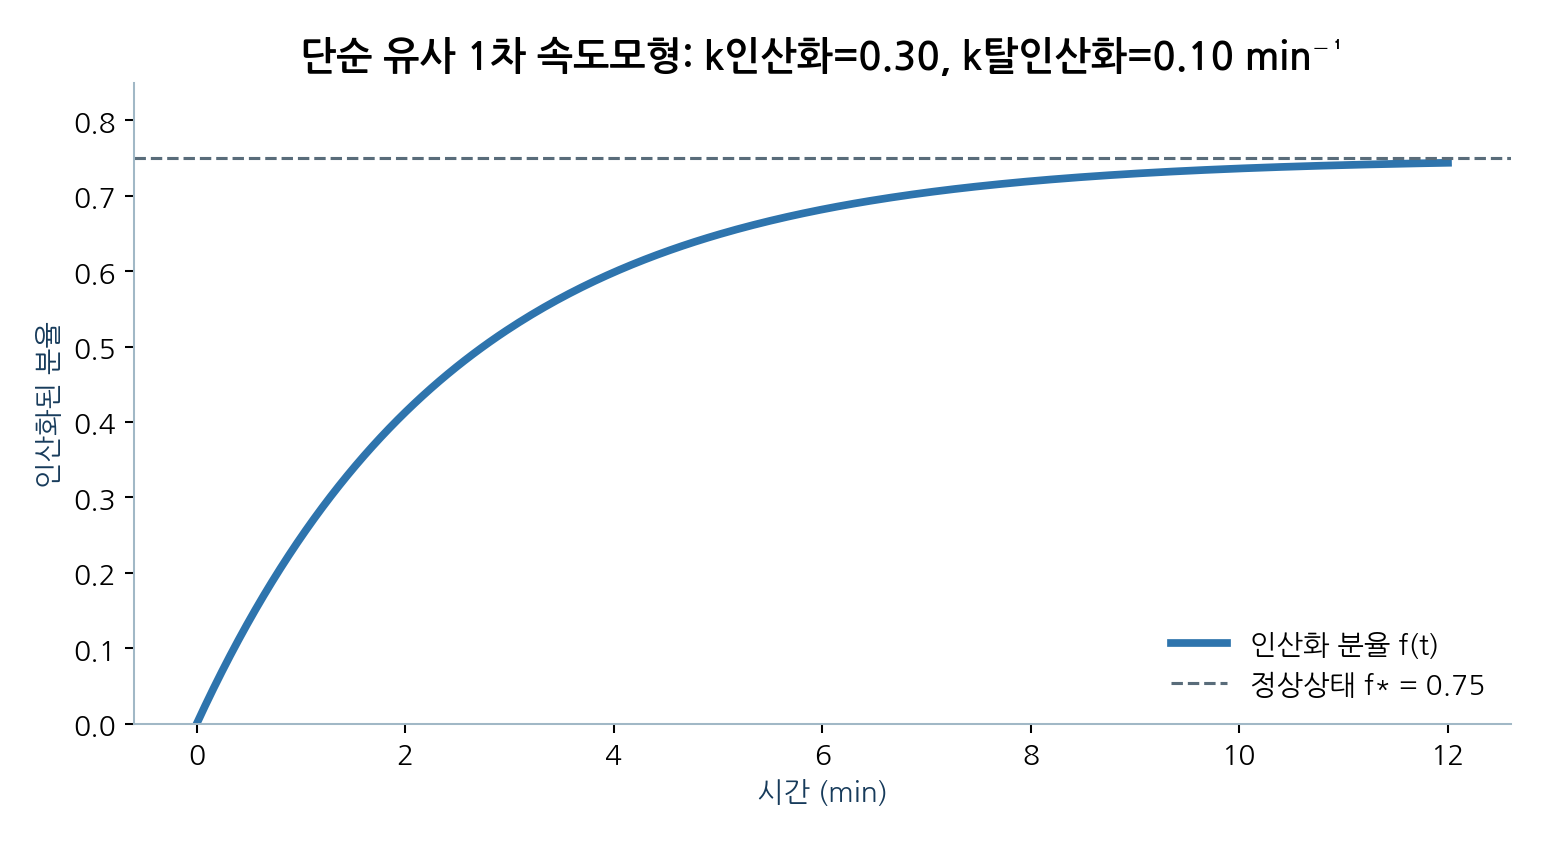
- 단순 모형 df/dt = kP(1−f) − kD f, 정상상태 f* = kP/(kP+kD), 예: kP 0.30·kD 0.10이면 f* = 0.75, 특성시간 2.5분
04
다중 인산화는 효소 활성을 정교하게 제어한다
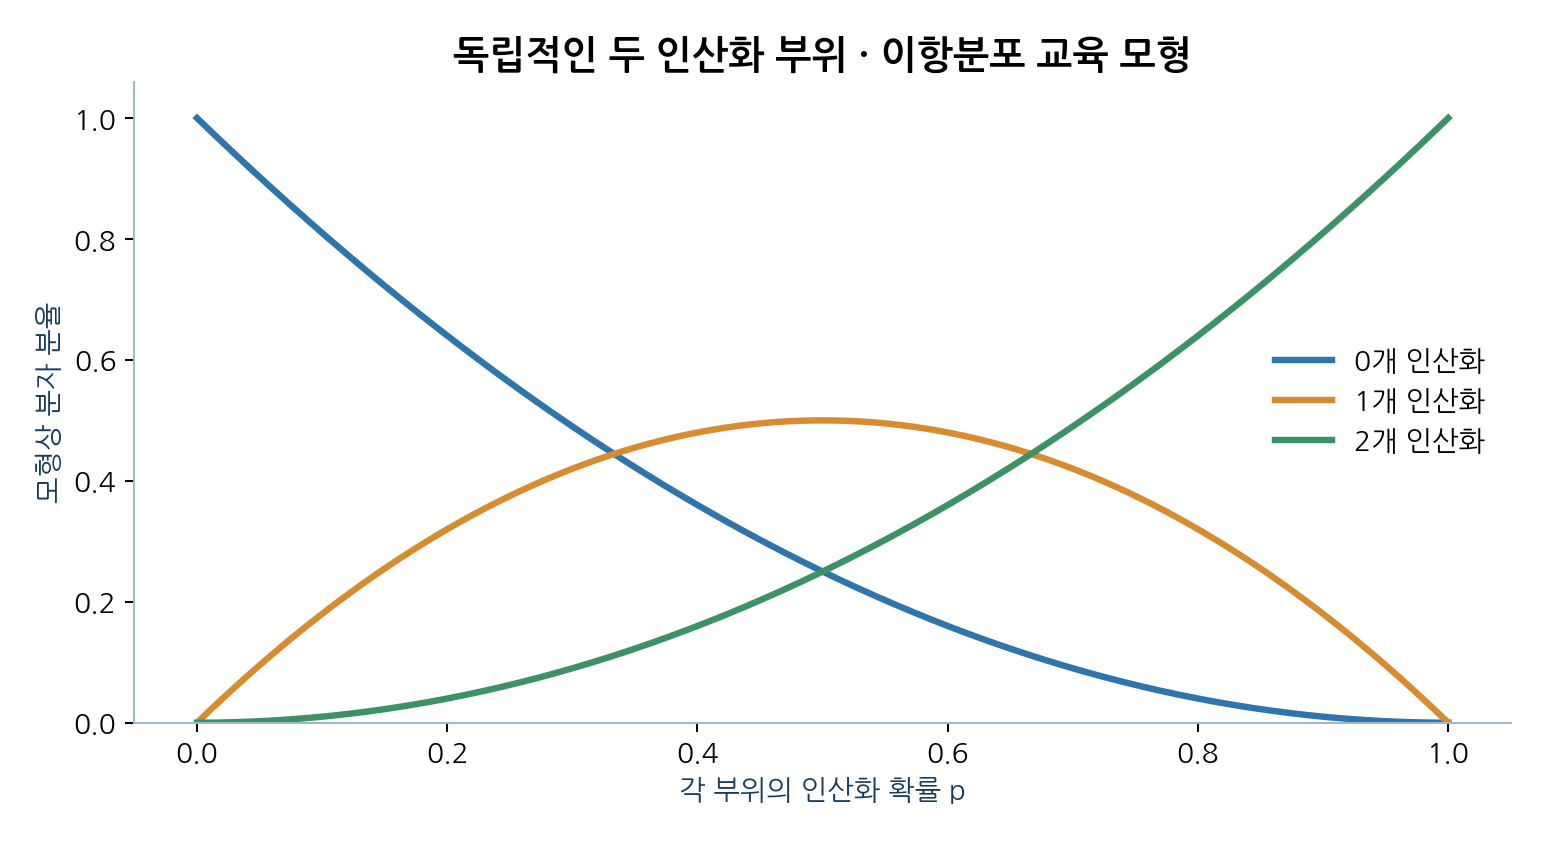
- 여러 Ser·Thr·Tyr 부위가 있으면 인산화 형태가 여러 개 존재(두 독립 부위면 00·10·01·11 네 미시상태)
- 어느 형태가 활성인지는 단백질과 세포 조건에 따라 다름
- 독립 가정에서 0·1·2개 인산화 분율은 (1−p)², 2p(1−p), p², p = 2/3이면 둘 다 인산화 4/9
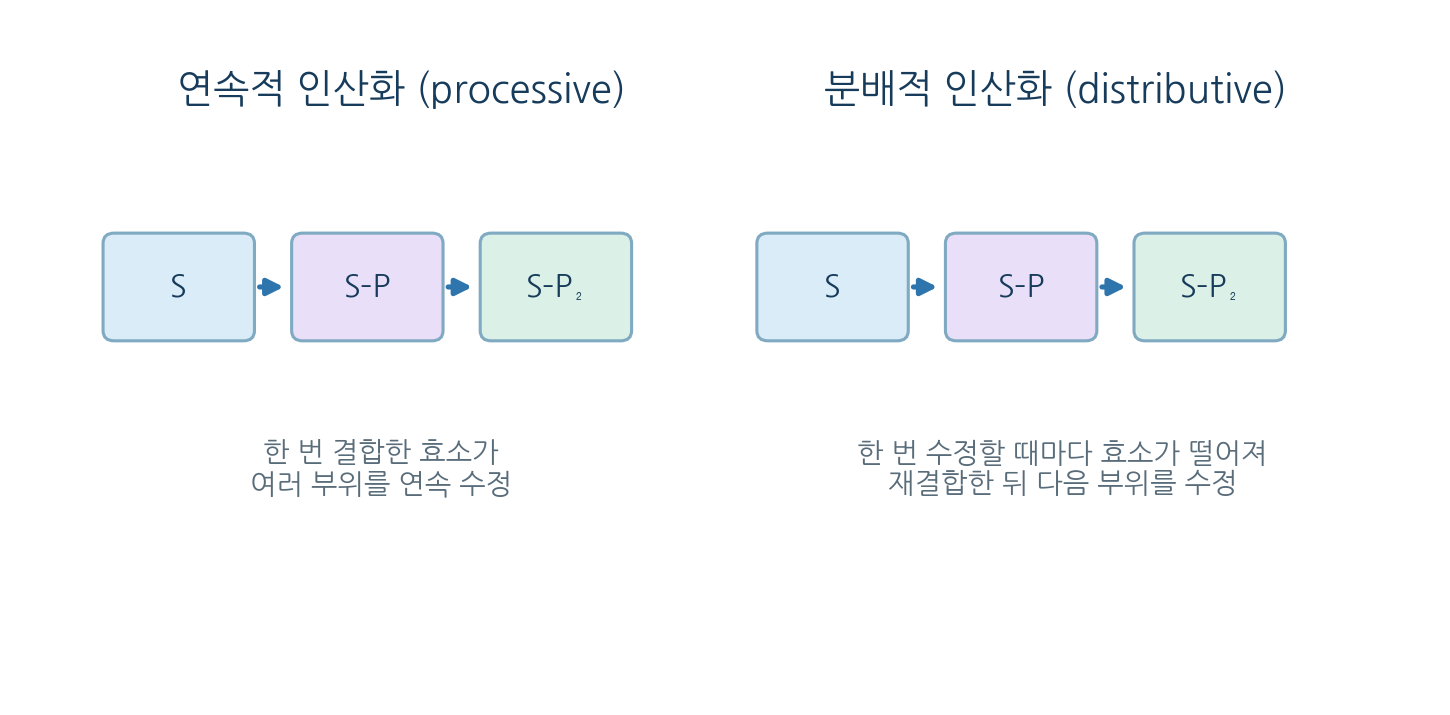
- 연속적 인산화는 한 번 결합해 여러 부위를 수정, 분배적 인산화는 매번 재결합이 필요
- 반복 결합·분리와 포스파테이스 경쟁이 문턱값 응답을 만들 수 있으나 모든 다중 인산화가 초민감성을 일으키지는 않음
05
일부 효소는 불활성 전구체의 단백질분해 절단을 통해 활성화된다
- 효소원 = 촉매 기능이 억제된 전구체, 특정 펩타이드 결합이 절단되면 활성형이 됨
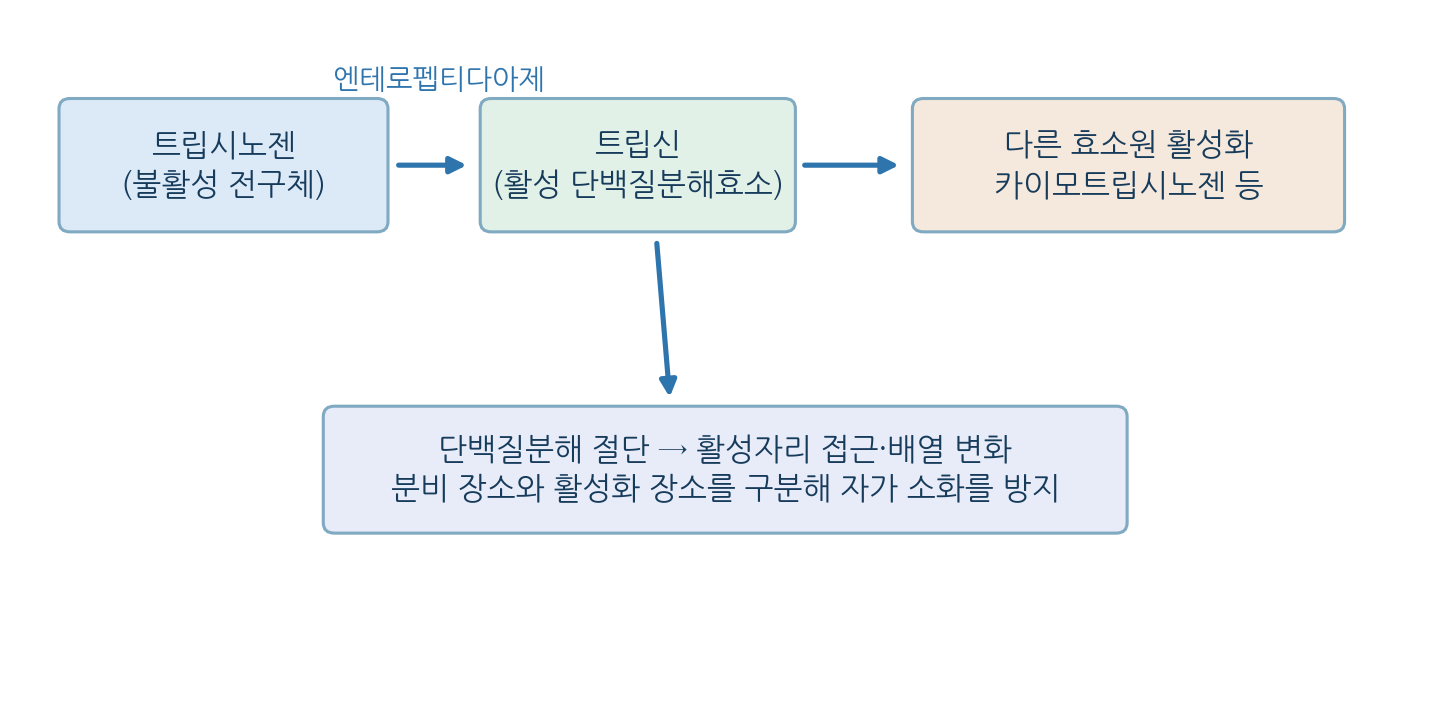
- 소화효소는 췌장에서 트립시노젠·카이모트립시노젠으로 분비되어 십이지장에서 활성화 → 주변 조직 자가 소화 감소
- 엔테로펩티다아제가 트립시노젠을 먼저 활성화하고 생성된 트립신이 다른 효소원을 활성화
- 주사슬 공유결합을 끊는 조절이라 인산화와 달리 저절로 복구되지 않으며, 저해제 결합·제거로 작용을 종료
06
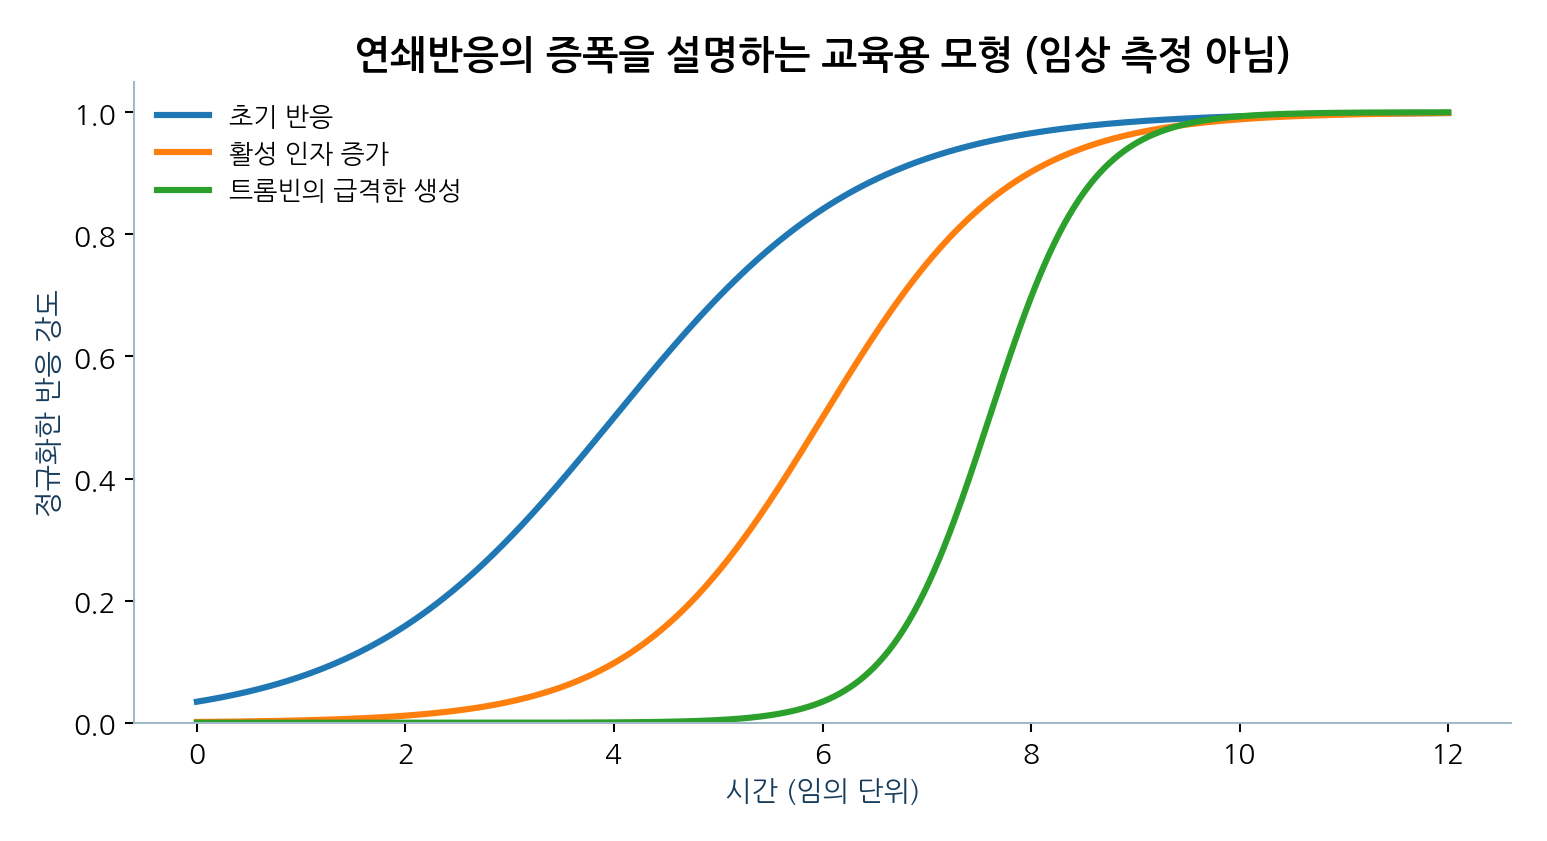
단백질분해로 활성화된 효소원들의 연쇄반응은 혈액 응고를 일으킨다
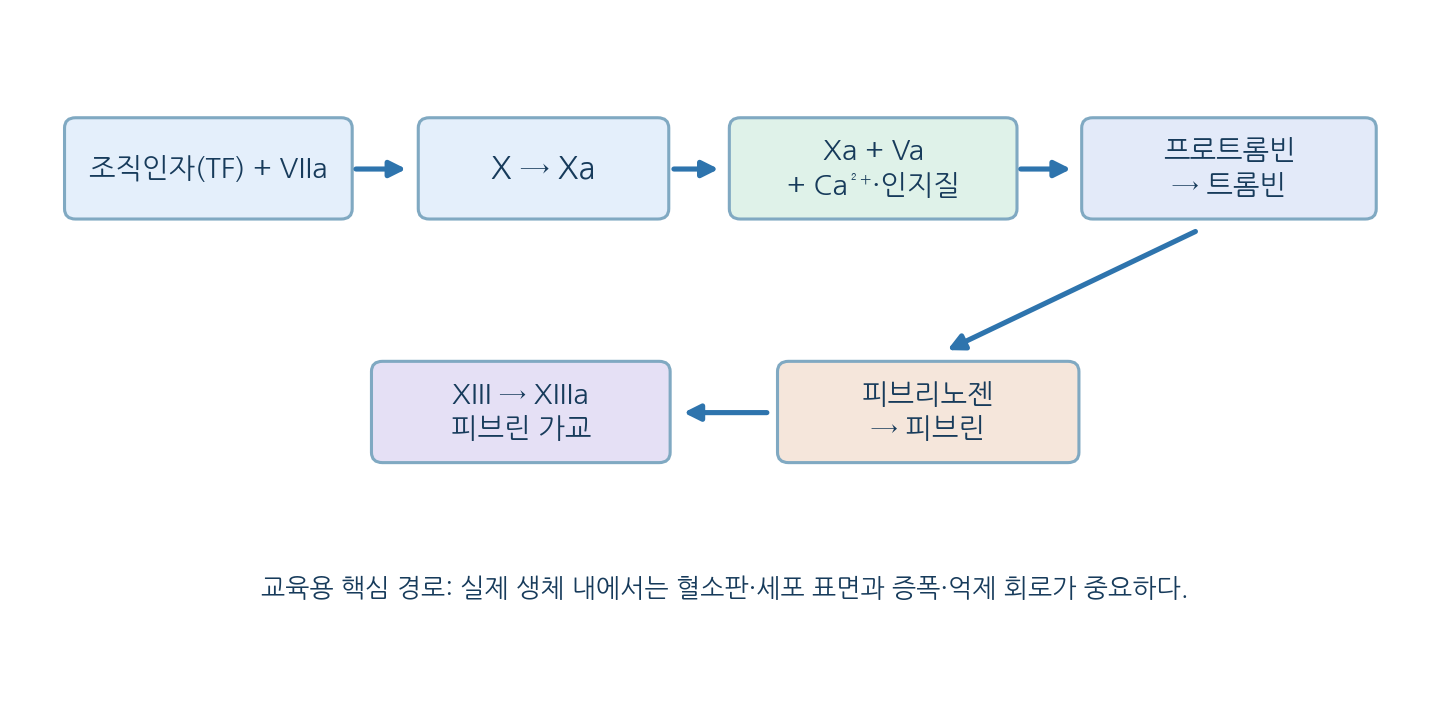
- 혈관 손상으로 조직인자가 노출되면 TF–VIIa가 X 등을 활성화하고 Xa가 Va·Ca²⁺·인지질과 함께 프로트롬빈을 트롬빈으로 전환
- 트롬빈이 피브리노겐을 피브린으로 절단하고 XIIIa가 교차결합해 응고물을 안정화
- 전통적 내인성·외인성 구분은 학습용이며 실제 응고는 개시·증폭·전파가 세포막과 혈소판 활성에 따라 조절되는 복합 과정
- V·VIII은 주로 보조인자, XIII은 트랜스글루타미나아제로 모든 응고인자가 단백질분해효소는 아님
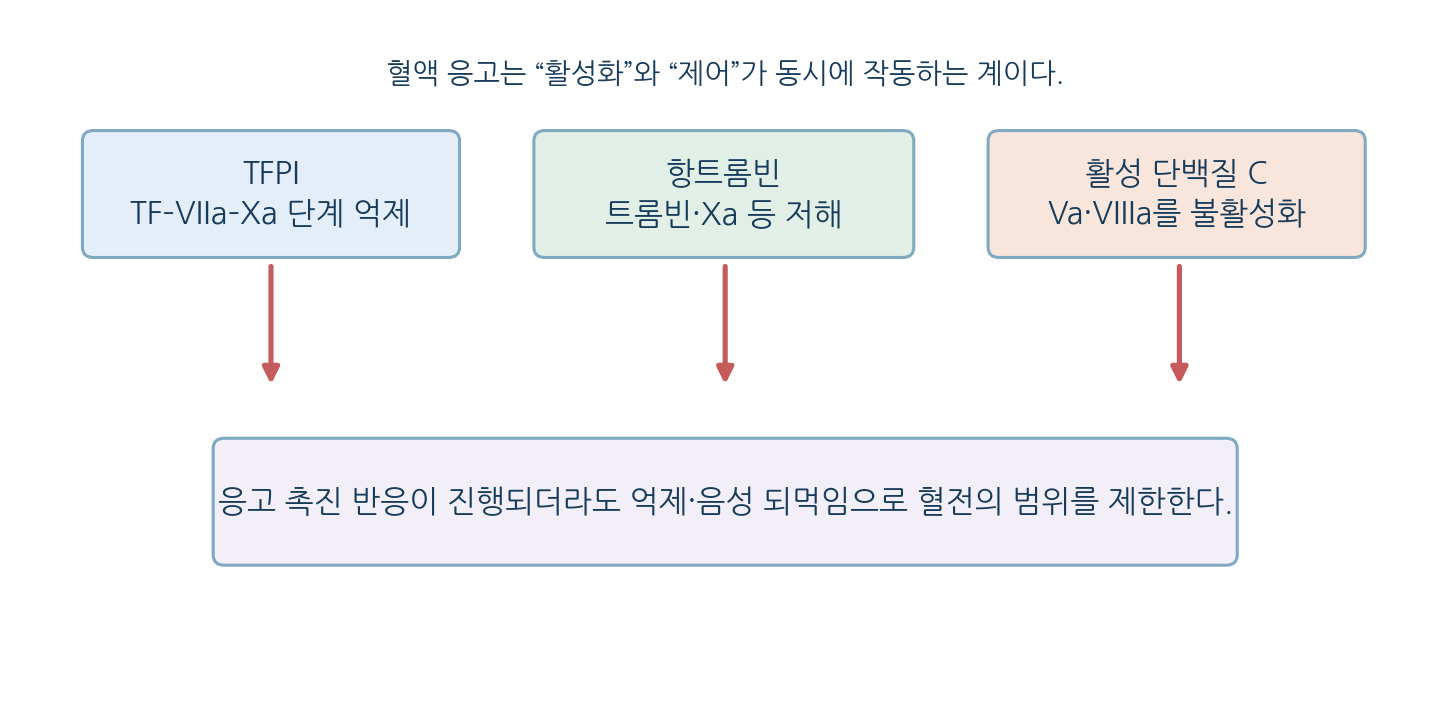
- 연쇄반응은 신호를 증폭하지만 TFPI·항트롬빈·단백질 C–S 계가 과도한 응고를 제한하며 균형이 정상 지혈
07
몇 가지 조절 효소는 여러 조절 기전을 동시에 사용한다
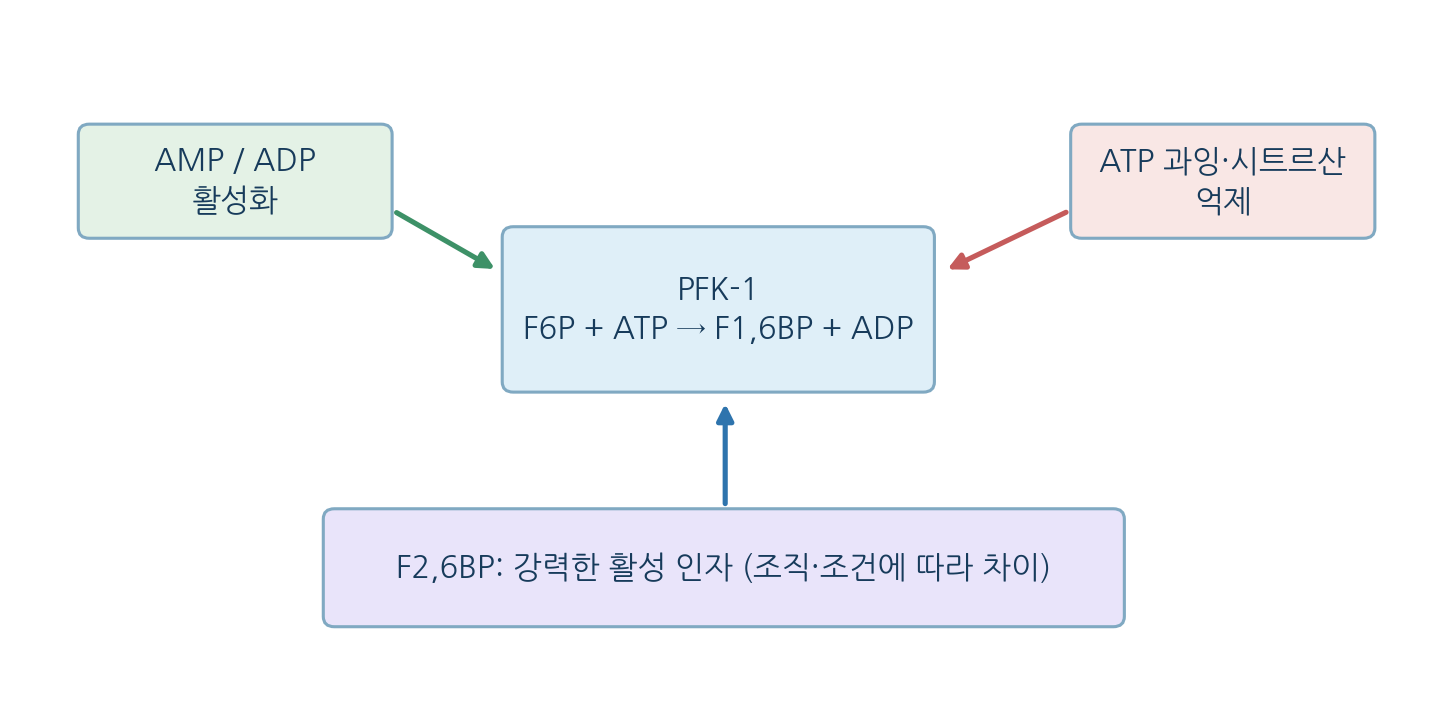
- PFK-1은 과당 6-인산과 ATP를 과당 1,6-이인산과 ADP로 전환하며 ATP는 기질이자 알로스테릭 억제자
- AMP·ADP는 에너지 부족 신호로 활성에 기여하고 과당 2,6-이인산은 강력한 활성 인자, 시트르산은 억제 신호가 될 수 있음
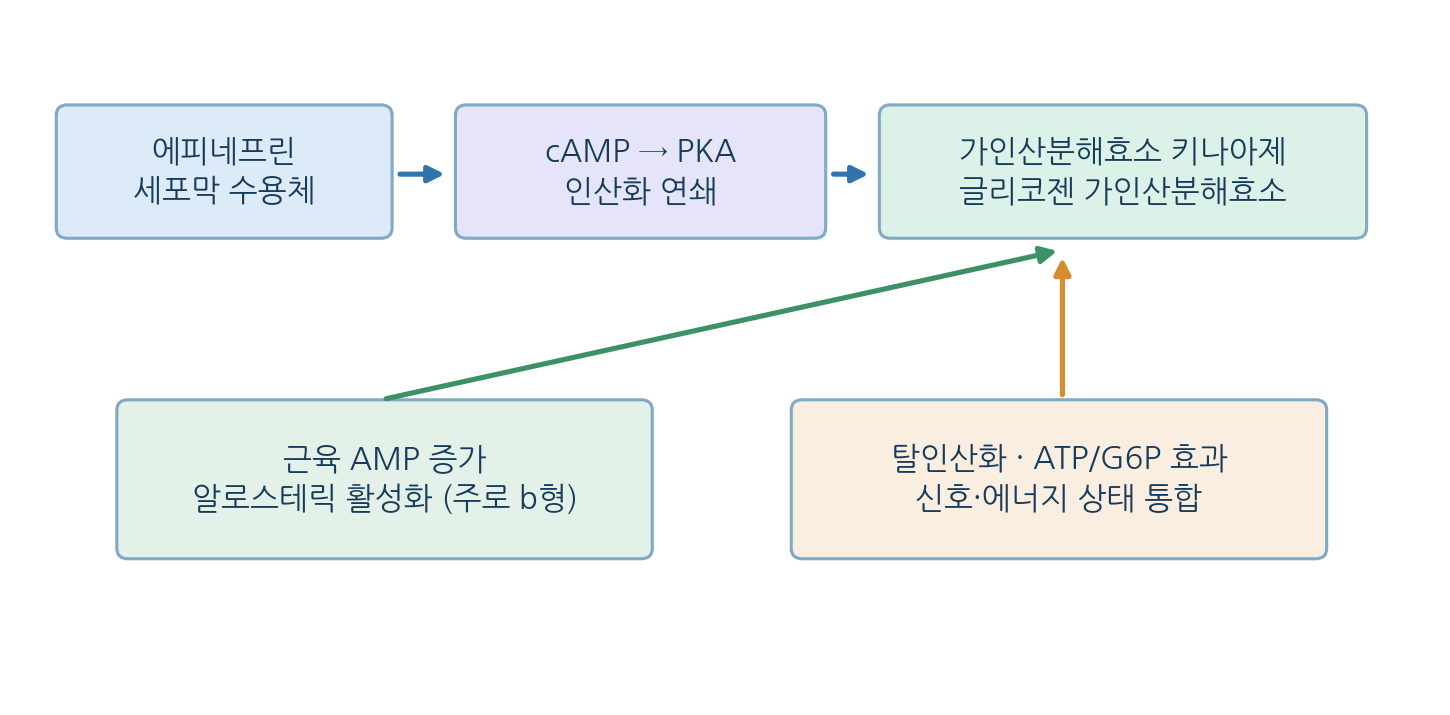
- PFK-1 자체 조절과 F2,6BP 농도를 정하는 PFK-2/FBPase-2의 인산화 조절은 서로 다른 층위
- PFK-2/FBPase-2 인산화 효과는 조직 특이적 아이소폼에 따라 달라 일반화할 수 없음
- 글리코젠 가인산분해효소는 Pi로 α(1→4) 결합을 인산분해해 글루코스 1-인산을 만들고, 호르몬 자극은 cAMP–PKA 연쇄로 인산화 상태를 바꾼다
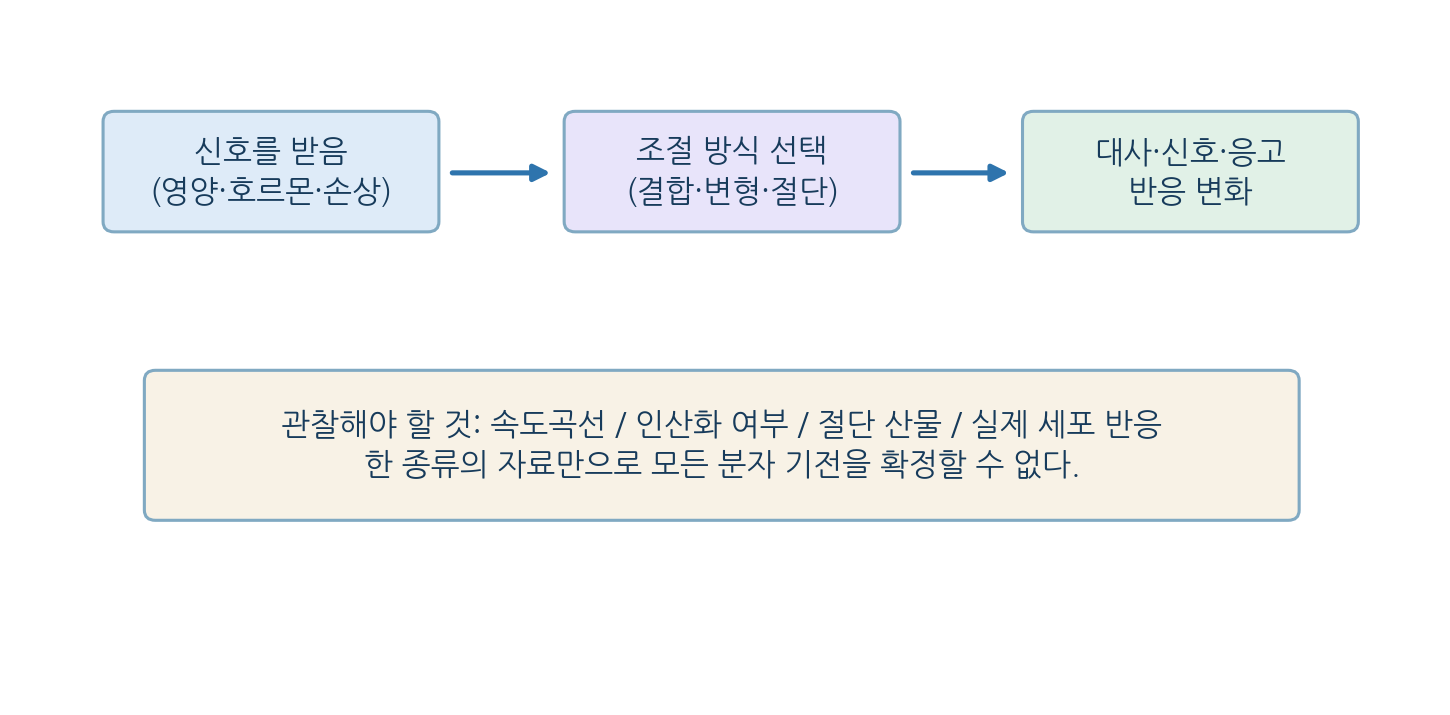
- 활성 변화를 발견하면 초기속도 곡선, 조절자 결합, 인산화 부위, 절단 상태, 세포 내 위치, 실제 대사산물을 함께 조사해야 함
08
통합 비교와 핵심 개념 정리
- 조절 효소는 촉매 효율을 직접 바꾸거나, 활성 상태로 존재하는 비율·시기·위치를 바꾼다
- 알로스테릭은 비공유 결합으로 빠르고 가역적, 인산화는 공유결합으로 중간 속도, 효소원 절단은 비가역적이며 별도 종료 기전이 필요
- 연쇄반응은 증폭을 얻는 대신 억제 계통이 함께 있어야 정상 지혈이 유지된다
- “속도 변화”를 관찰했다고 “분자 기전”을 확정할 수 없으며 여러 층위의 증거가 필요하다
참조 자료 · References
| 조절 방식 | 화학적 변화 | 대표 예 | 가역성·특징 |
|---|---|---|---|
| 알로스테릭 조절 | 조절자의 비공유결합 결합 | ATCase의 CTP | 결합·해리에 따라 상태 평형 변화 |
| 공유결합 인산화 | Ser/Thr/Tyr의 인산 에스터 | 글리코젠 대사 효소 | 키나아제와 포스파테이스가 반대 작용 |
| 다중 인산화 | 여러 부위의 인산화 조합 | MAPK 신호 단백질 | 문턱·시간 조절 가능, 필수는 아님 |
| 단백질분해 활성화 | 펩타이드 주사슬 절단 | 트립시노젠 | 절단의 직접 역반응은 일반적이지 않음 |
| 연쇄반응 | 다단계 효소원 활성화 | 조직인자–트롬빈–피브린 | 증폭과 억제가 동시에 필요 |
| 다중 입력 통합 | 위 방식들의 결합 | PFK-1·글리코젠 분해 | 세포·조직 맥락에 따라 달라짐 |