01
DNA는 유전 정보를 저장하는 이중나선이다
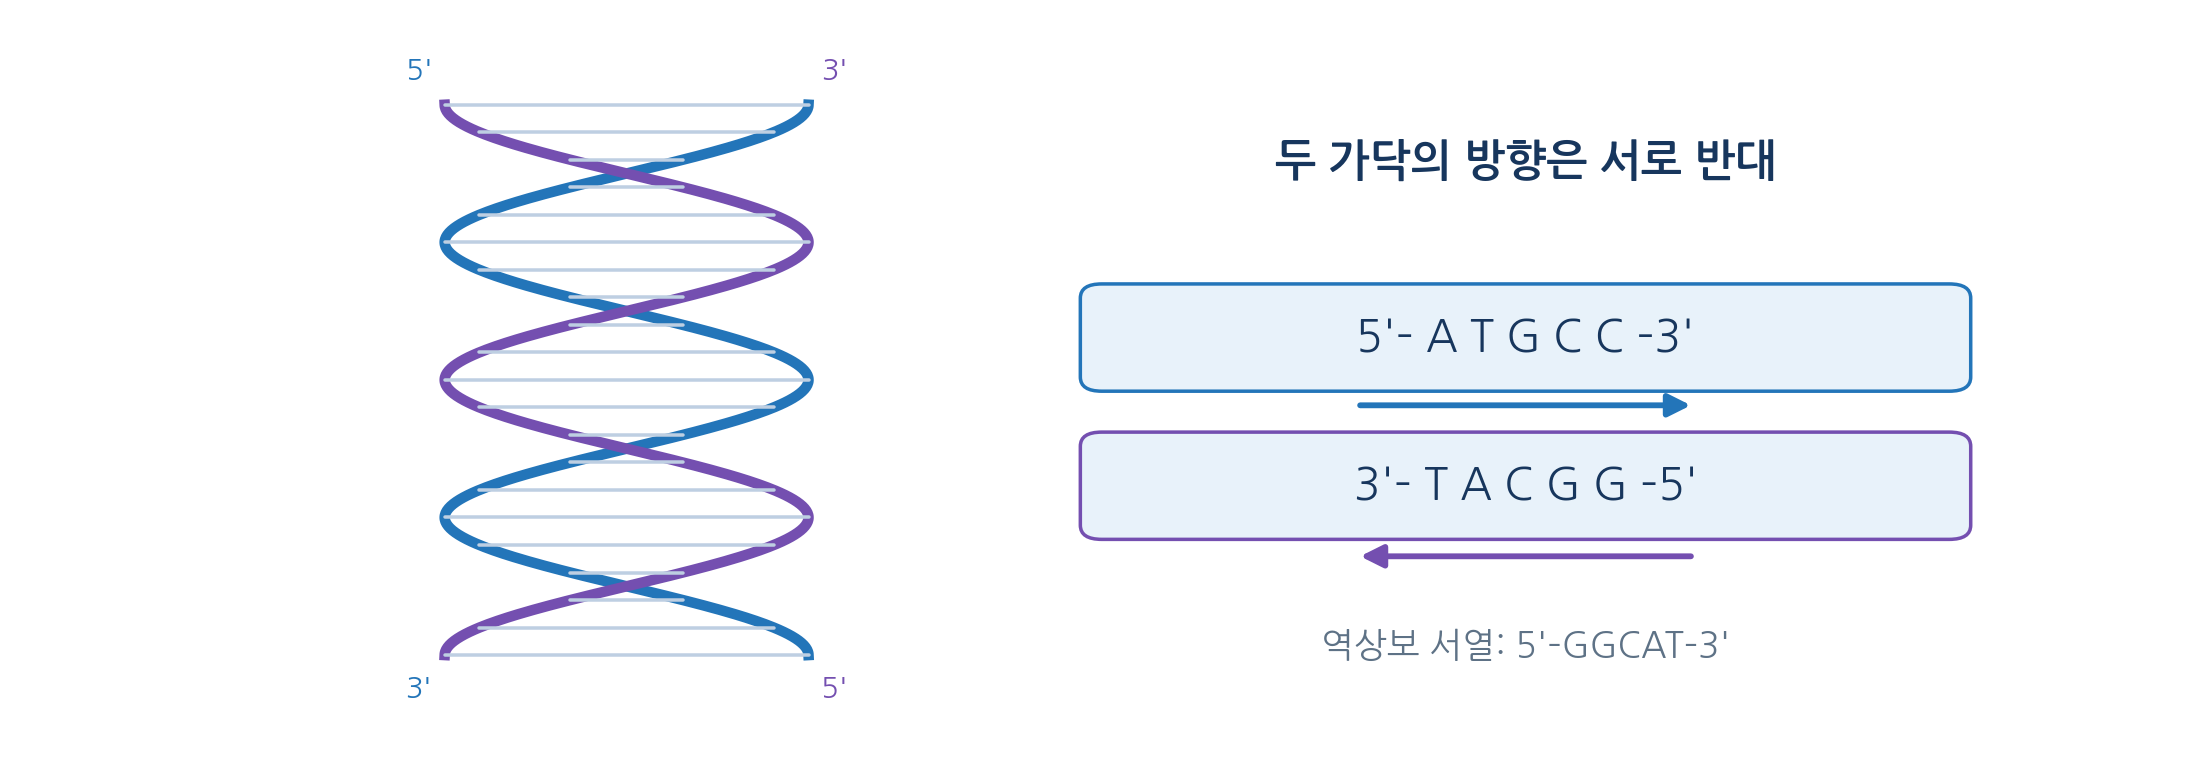
- 왓슨–크릭 이중나선은 두 가닥이 역평행으로 놓이고 골격은 바깥, 염기는 안쪽에 위치
- 5′-ATGCC-3′의 상보는 3′-TACGG-5′이고 5′→3′ 표기는 5′-GGCAT-3′
- 이를 역상보 서열이라 하며 단순 상보와 혼동하면 프라이머 설계와 서열 분석에 오류가 생김
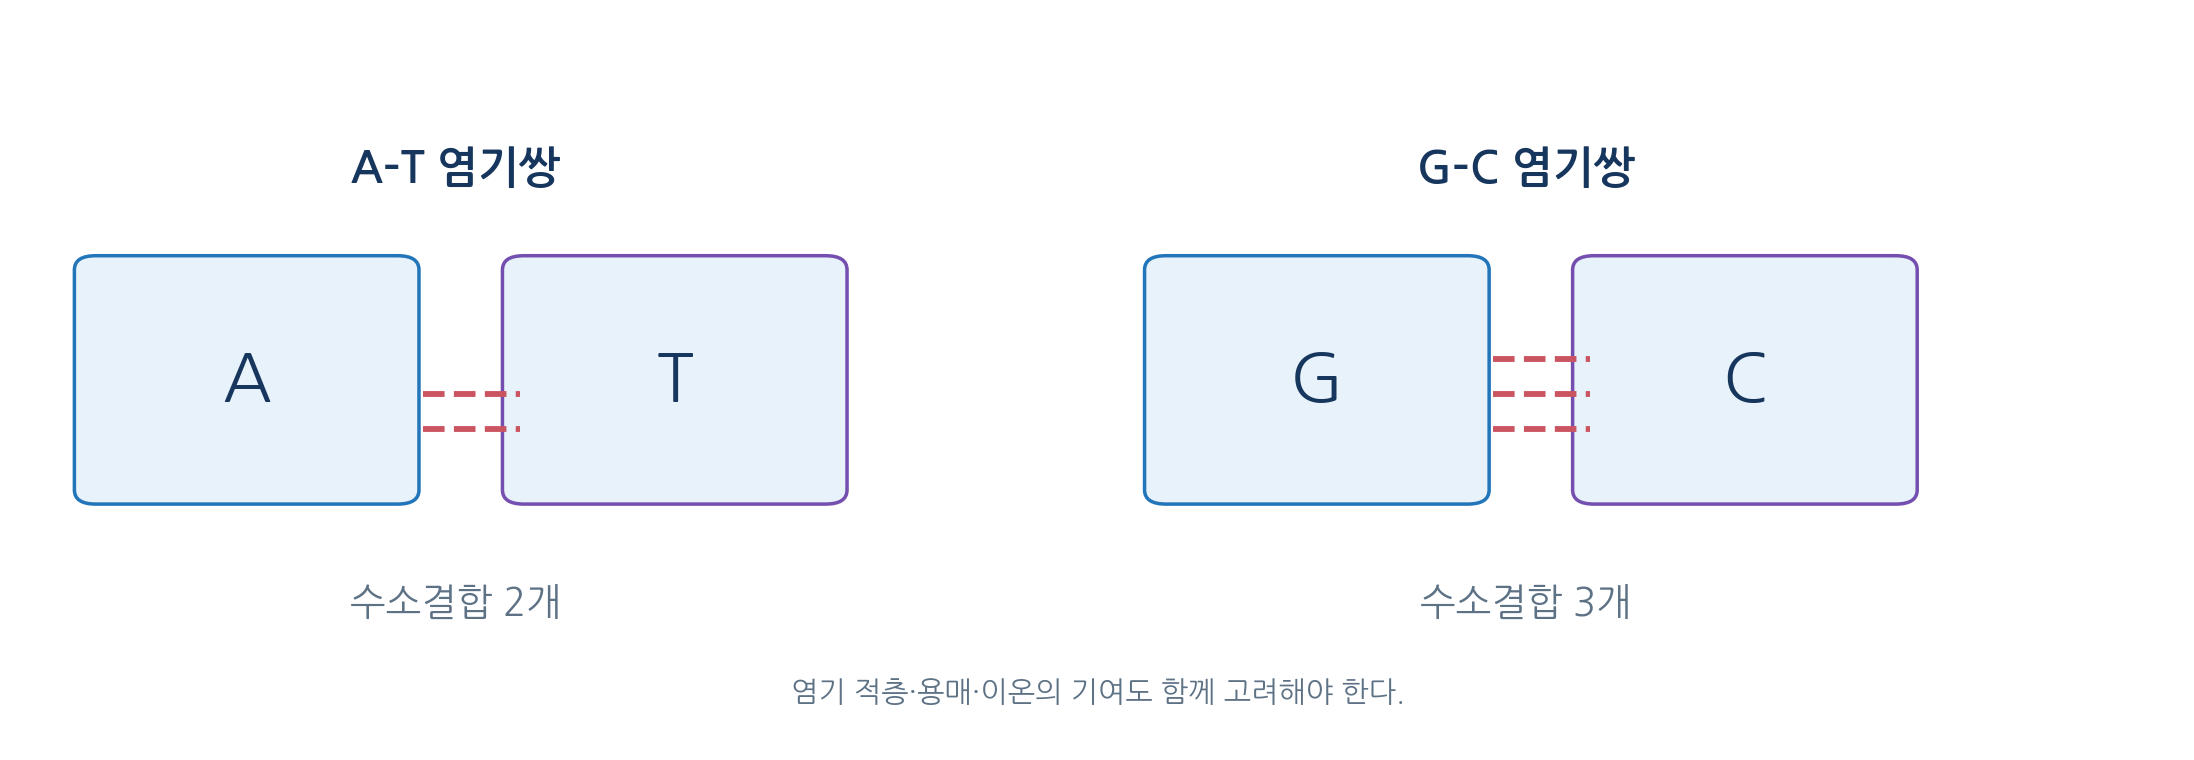
- A–T는 2개, G–C는 3개의 수소결합이지만 안정성은 적층·수화·이온·이웃 관계가 함께 결정
- 같은 GC 함량이라도 염기 배열이 다르면 녹는 온도와 국소 형태가 달라질 수 있음
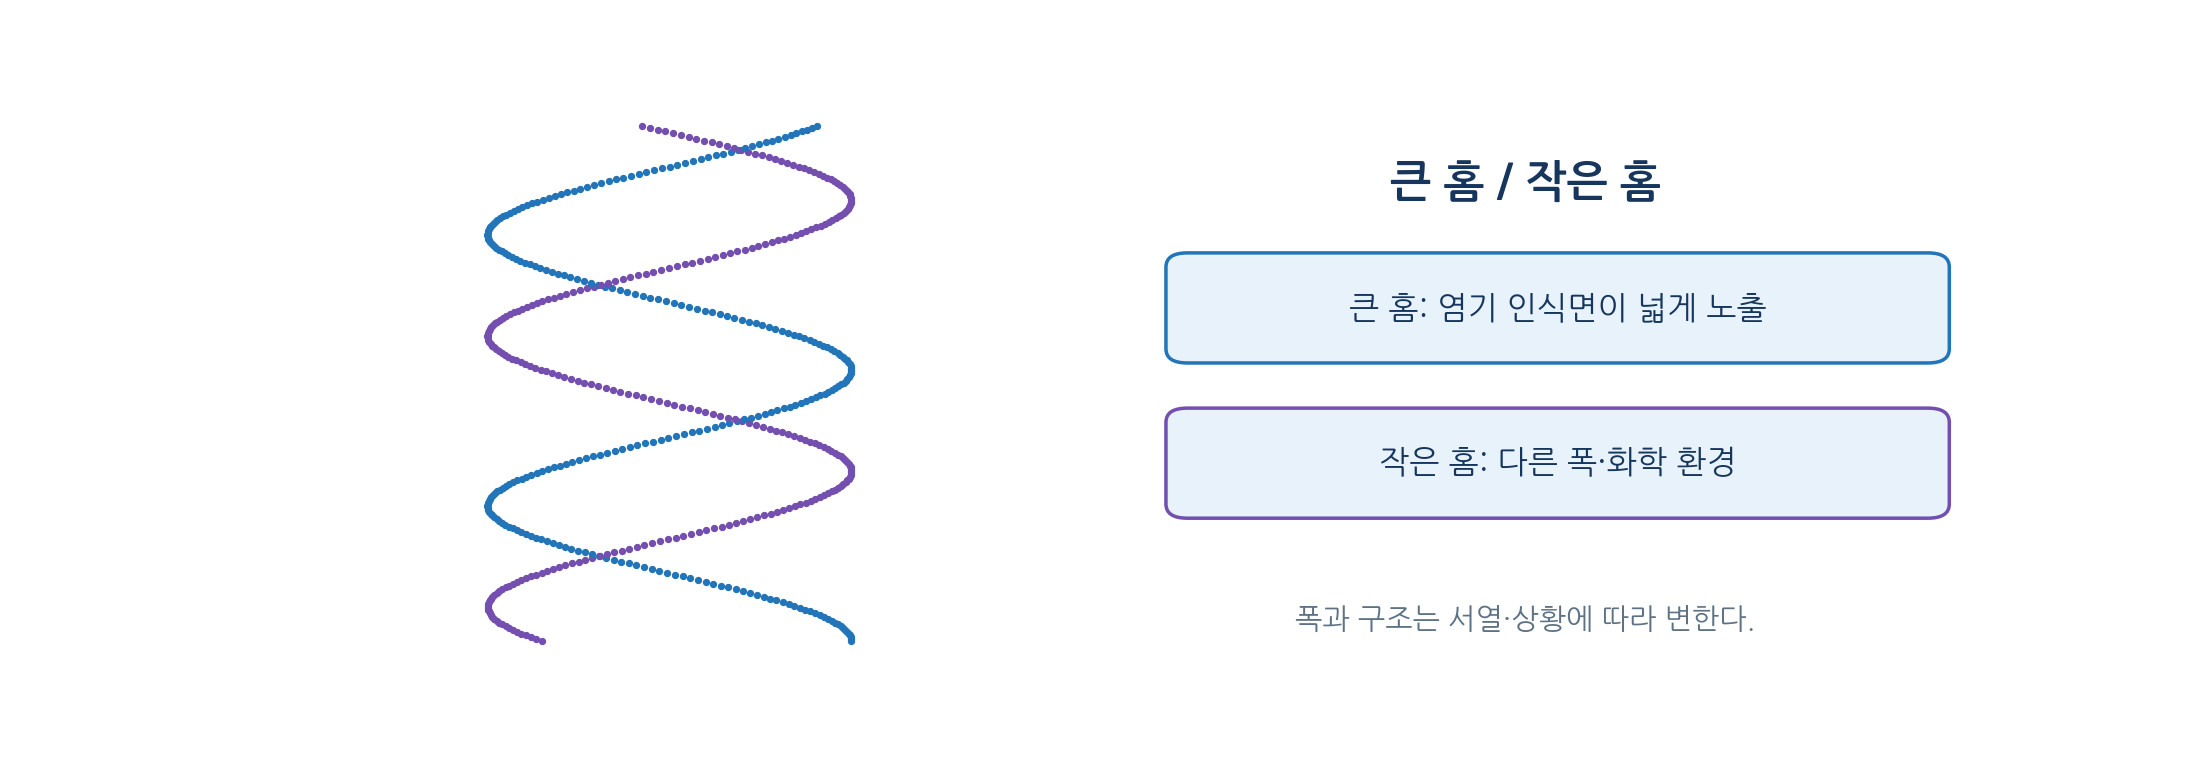
- B형 DNA의 두 골격 사이에는 폭이 다른 큰 홈과 작은 홈이 형성
- 홈에는 염기의 수소결합 주개·받개와 비극성 원자단이 서로 다른 배열로 노출
- DNA 결합 단백질은 화학적 패턴과 국소 굽힘을 함께 인식
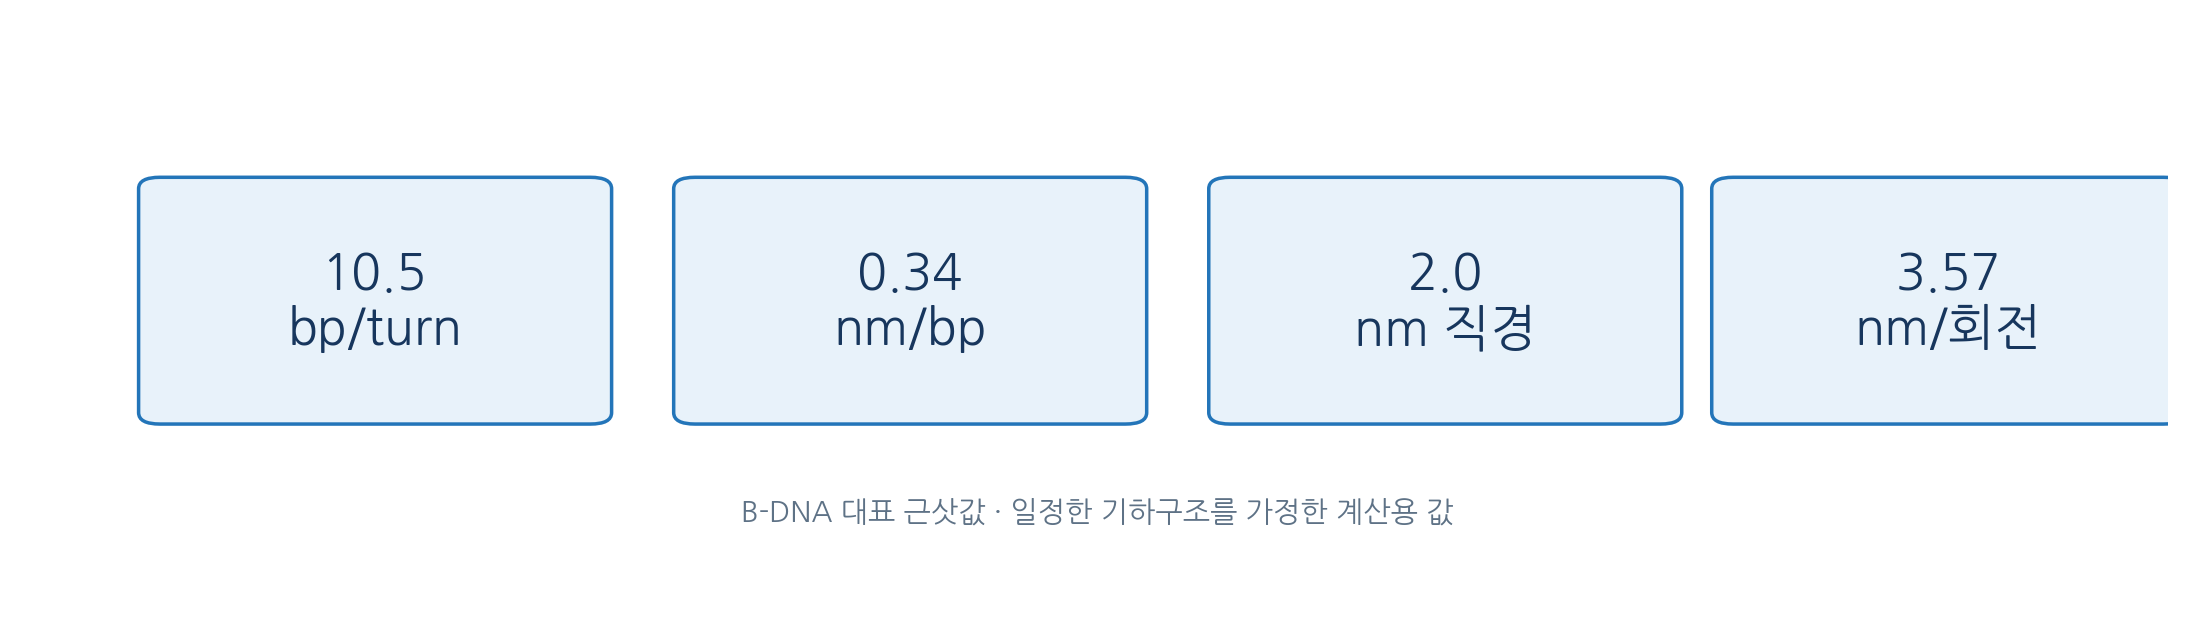
- B-DNA 근삿값: 지름 2.0 nm·상승 0.34 nm/bp·10.5 bp/회전 → 피치 약 3.57 nm
- 실제 DNA는 서열·수화·장력·단백질 결합에 따라 굽고 비틀림
- 예: 1,050 bp → 축방향 길이 357 nm, 회전 수 100
02
DNA는 다양한 3차원 형태로 존재할 수 있다
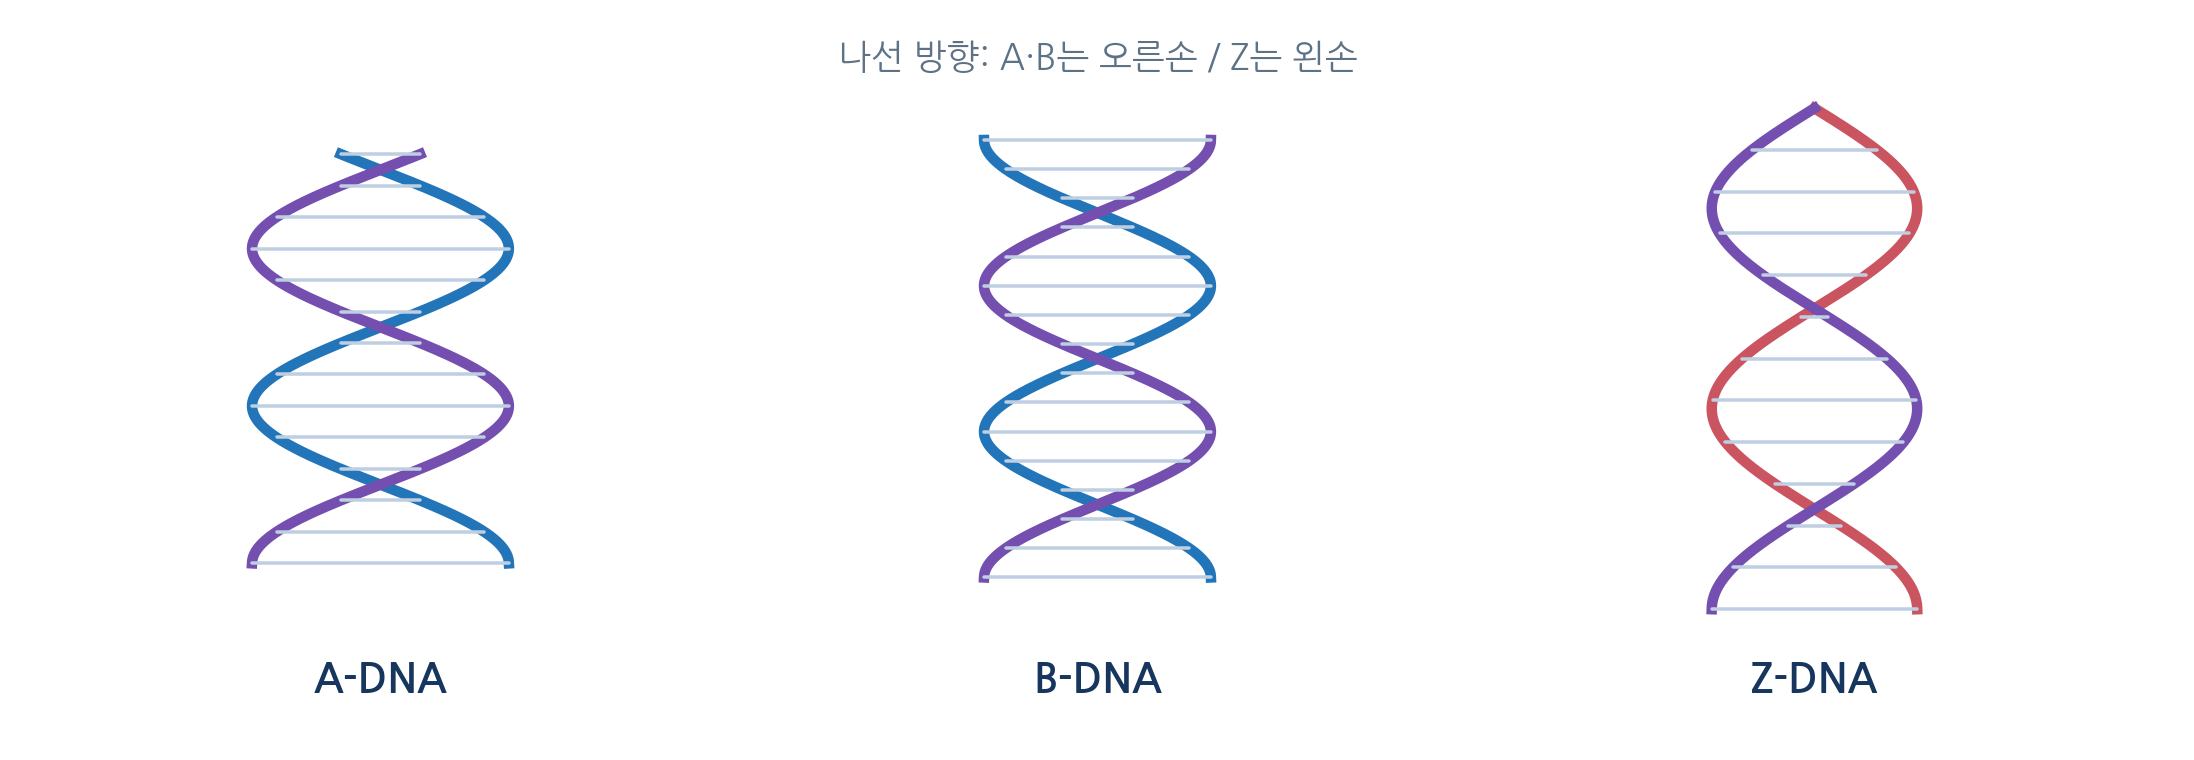
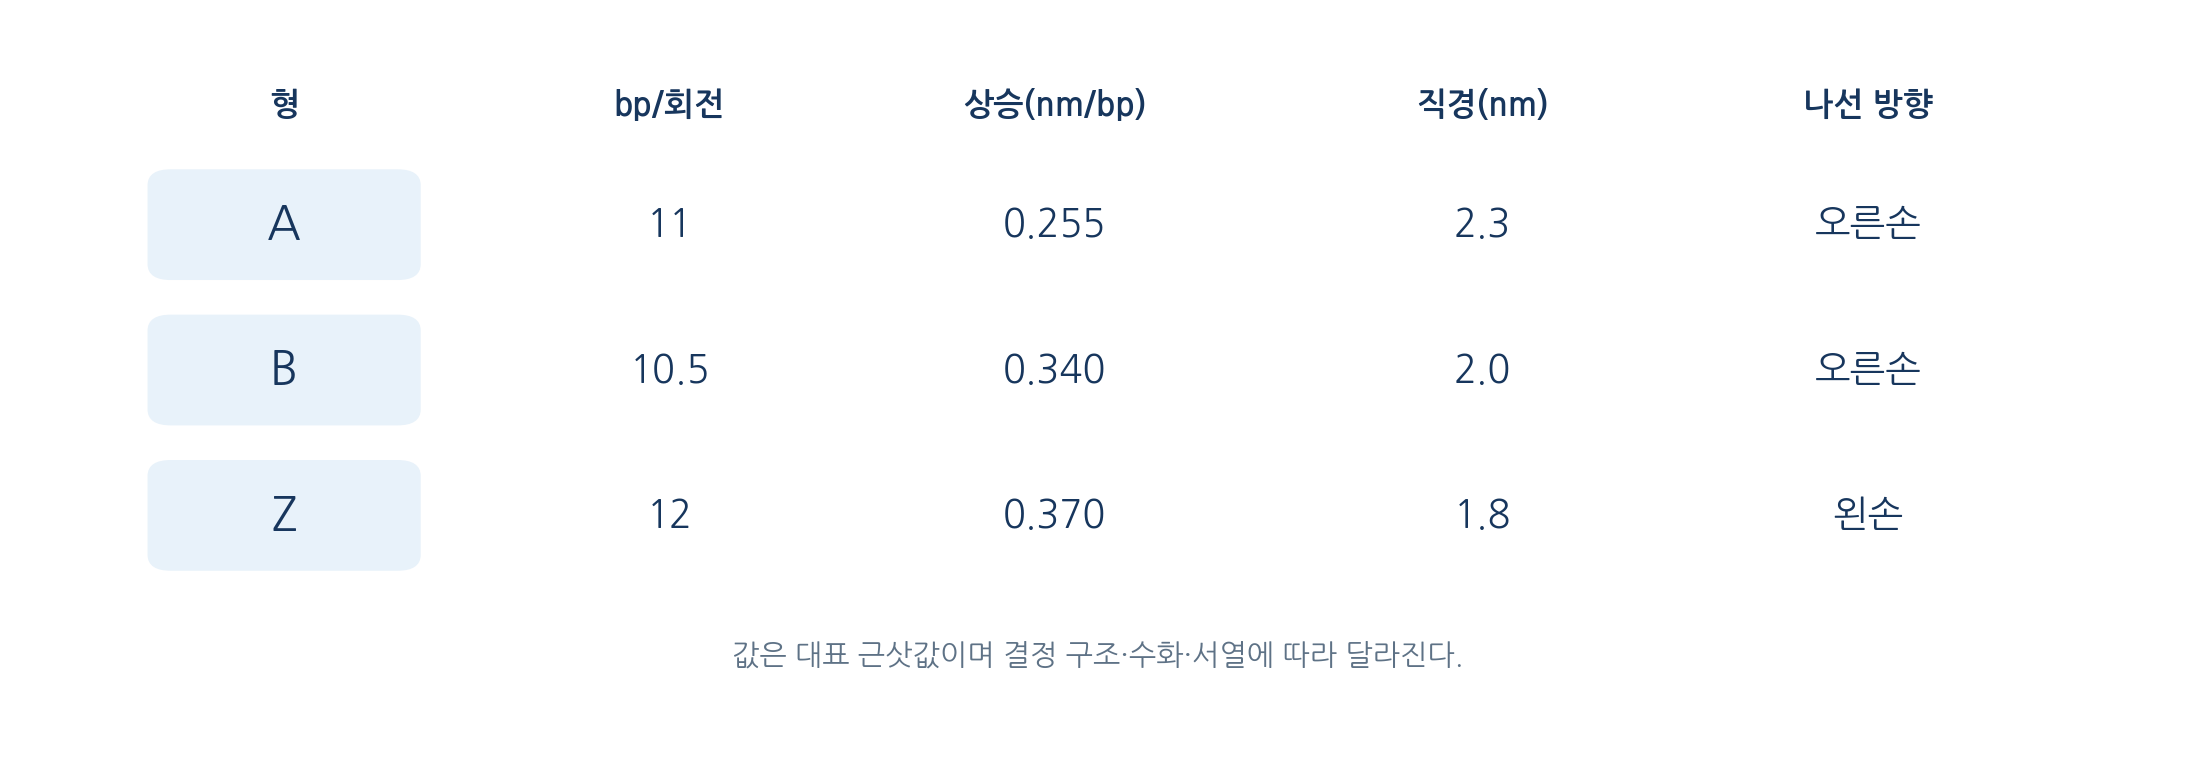
- A형과 B형은 모두 오른손 나선이나 A형이 더 짧고 굵으며 염기쌍 기울기가 큼
- A형은 수화가 감소한 조건과 DNA–RNA 이중가닥에서 나타나고 이중가닥 RNA도 A형에 가까움
- Z형은 골격이 지그재그로 꺾인 왼손 나선으로 교대 퓨린–피리미딘 서열에서 형성되기 쉬움
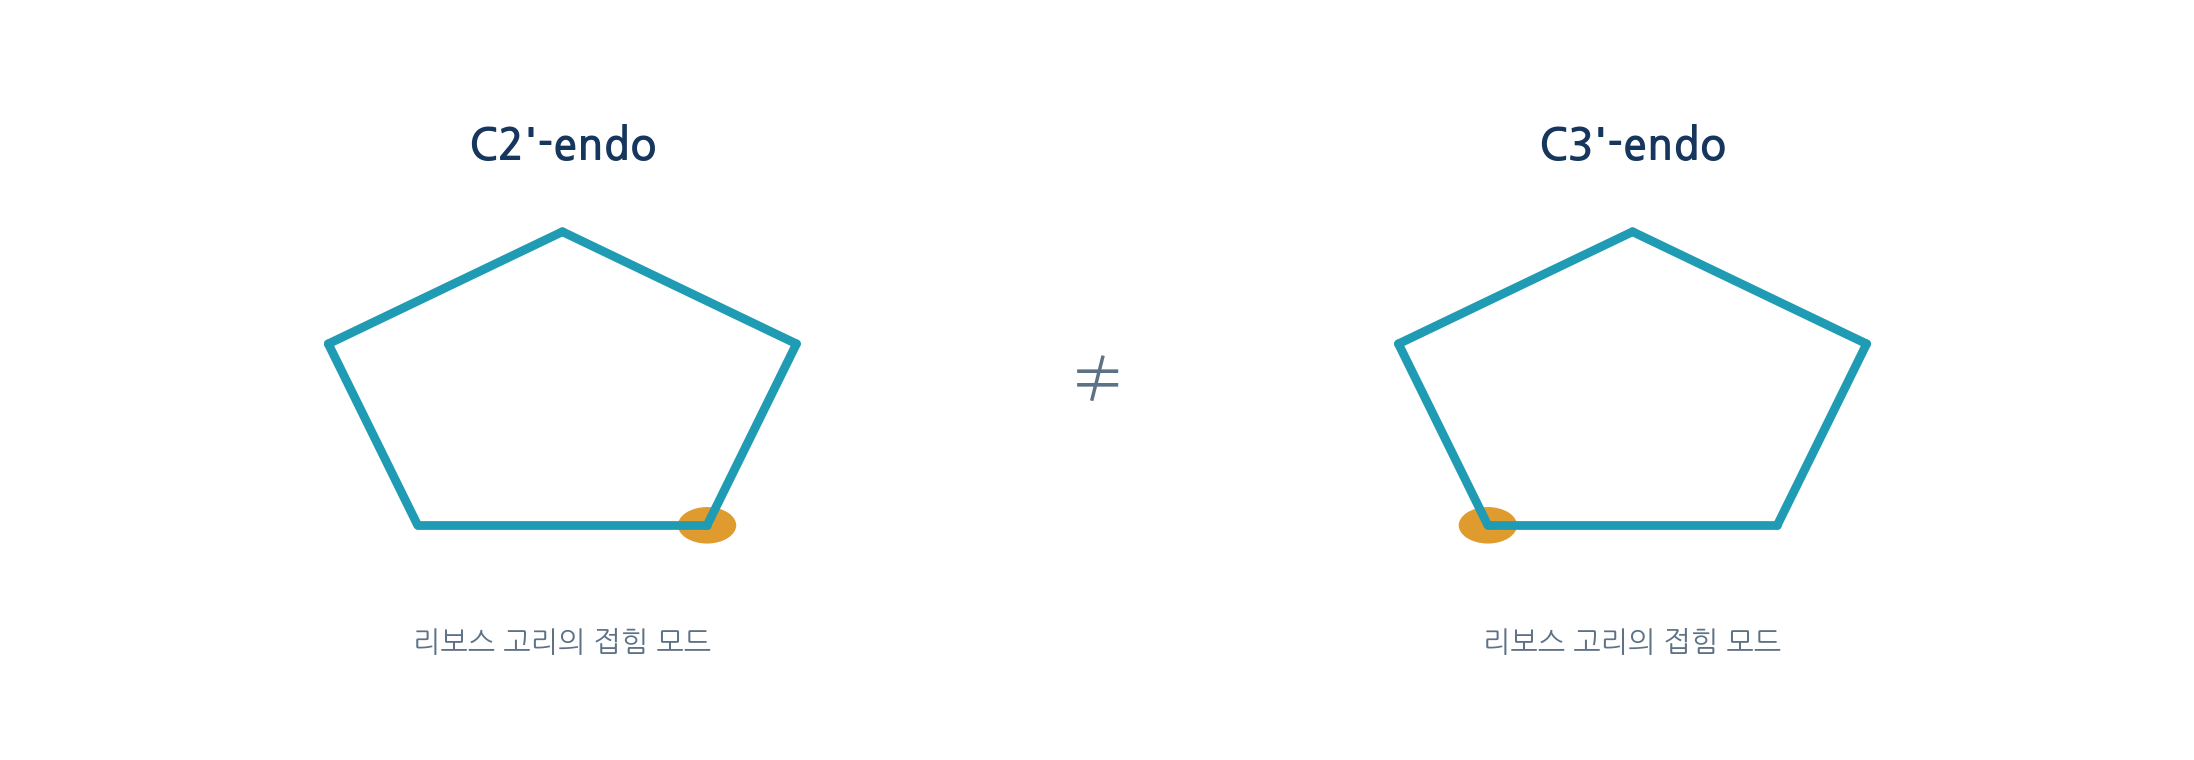
- 오탄당은 평평하지 않고 퍼커링을 보이며 B형은 C2′-endo, A형과 A-RNA는 C3′-endo 성향
- 당 고리 입체형태가 골격 배치와 염기쌍 위치를 제한해 나선 특성을 결정
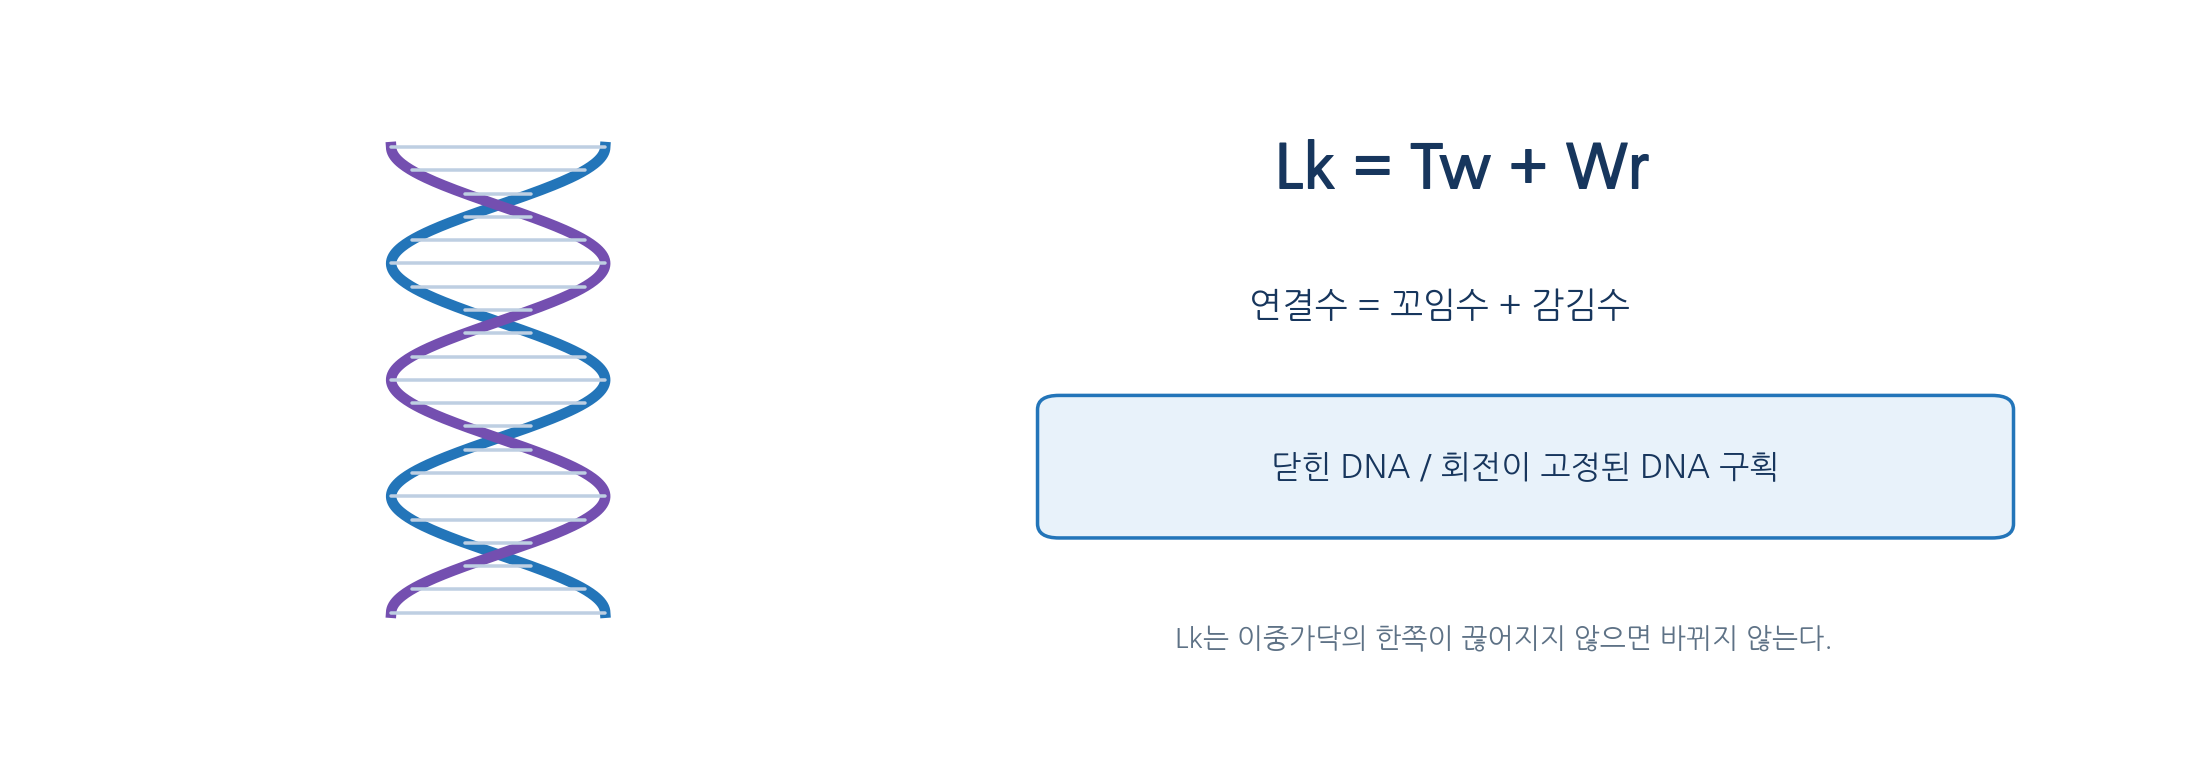
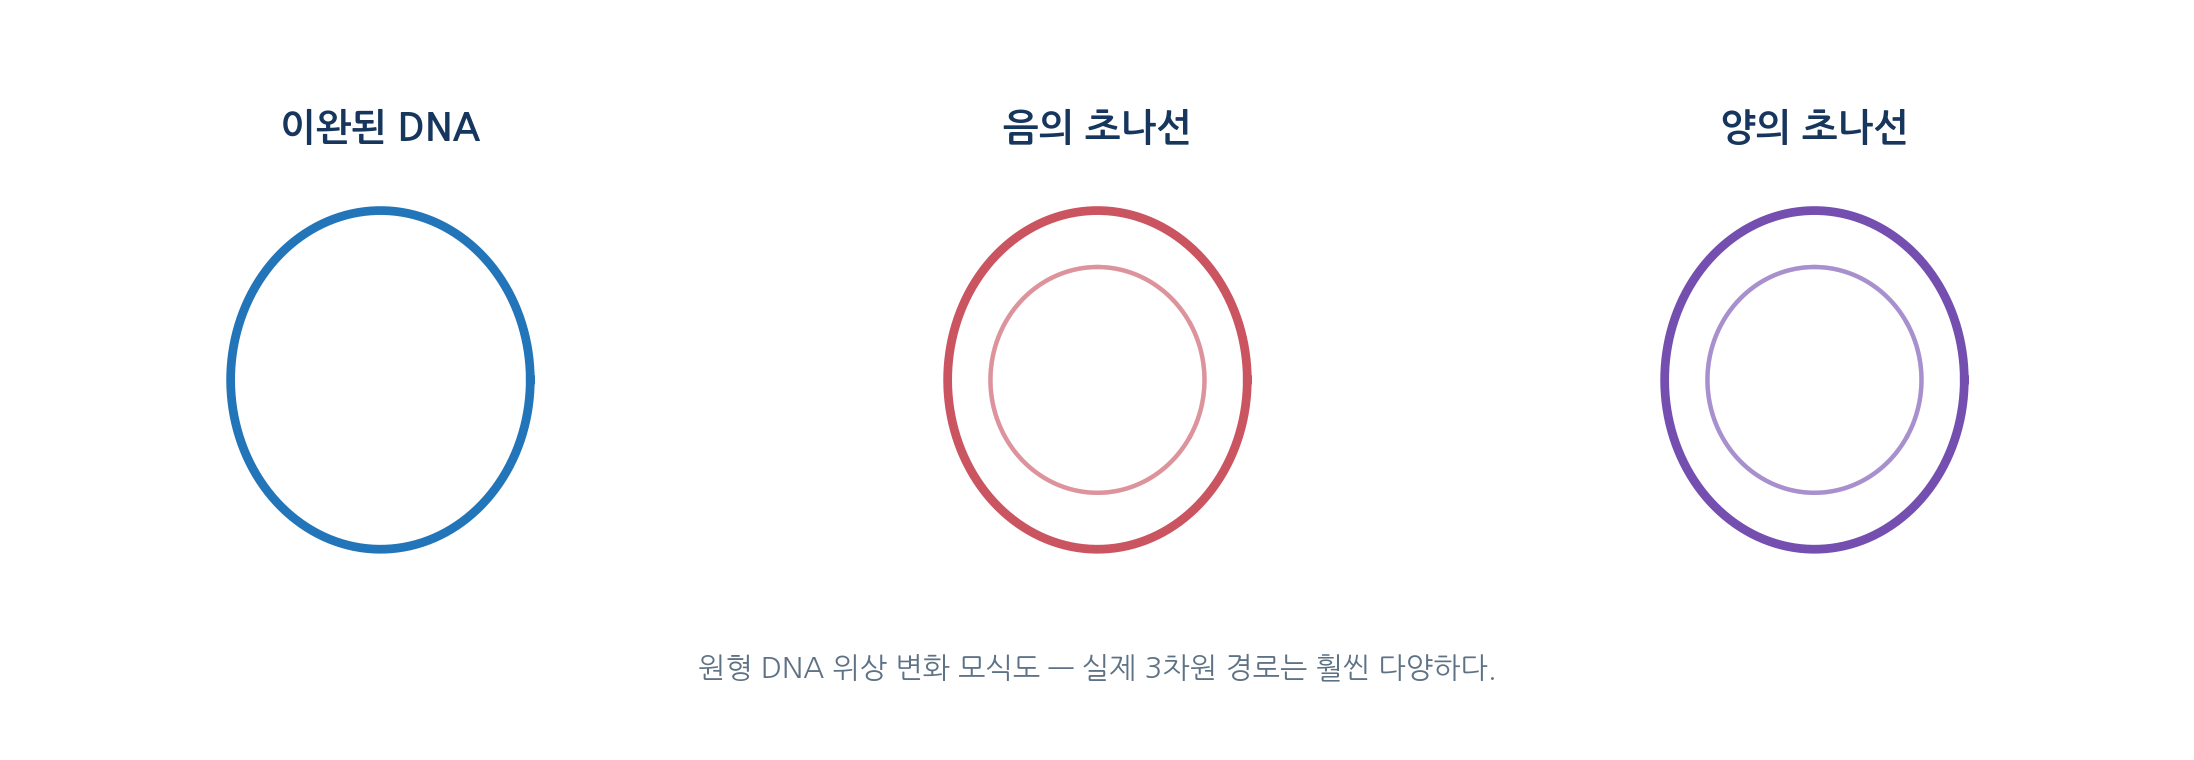
- 닫힌 원형이나 회전이 고정된 DNA는 Lk = Tw + Wr로 위상 상태를 기술
- Tw는 국소 꼬임, Wr은 이중나선 축의 공간적 감김
- 예: 2,100 bp·Lk₀ ≈ 200·Lk 190이면 ΔLk = −10, σ = −0.05로 음의 초나선
- 절단점이 있어 자유 회전이 가능하면 Lk를 불변량으로 다룰 수 없음
03
특정 DNA 서열은 특이한 구조를 형성한다
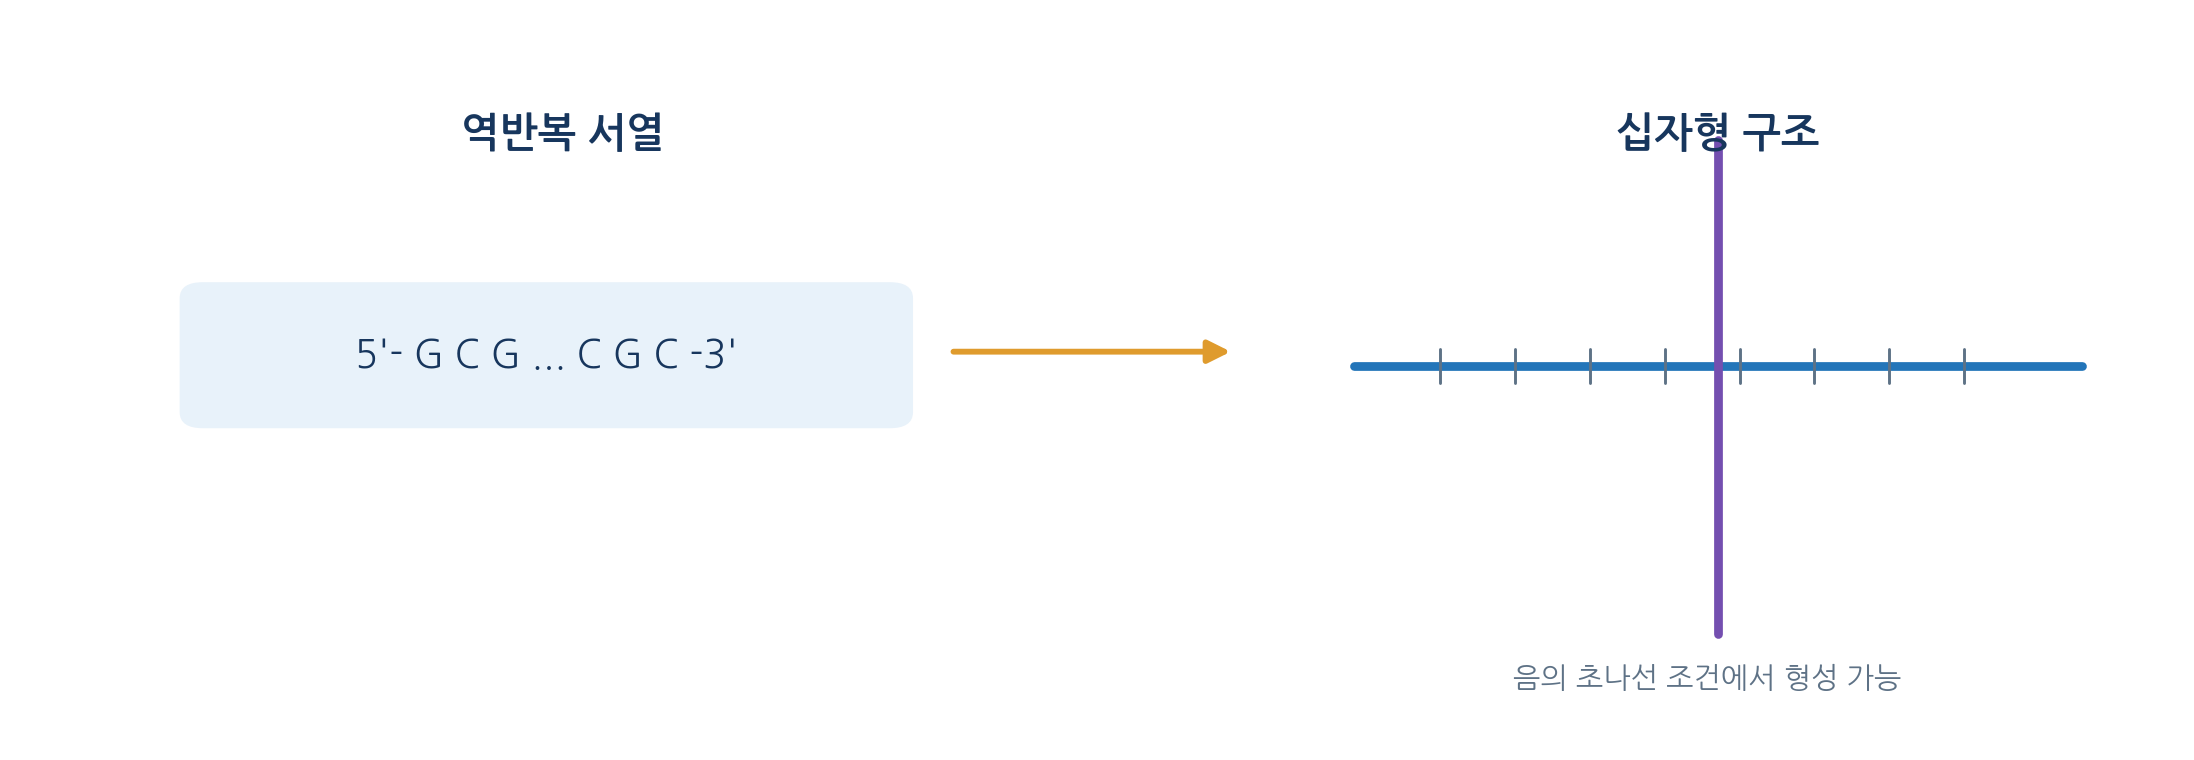
- 역반복 서열은 가닥이 분리될 때 헤어핀을, 닫힌 이중가닥에서는 십자형 구조를 형성할 수 있음
- 형성 여부는 서열뿐 아니라 초나선·염 농도·주변 조건에 의존
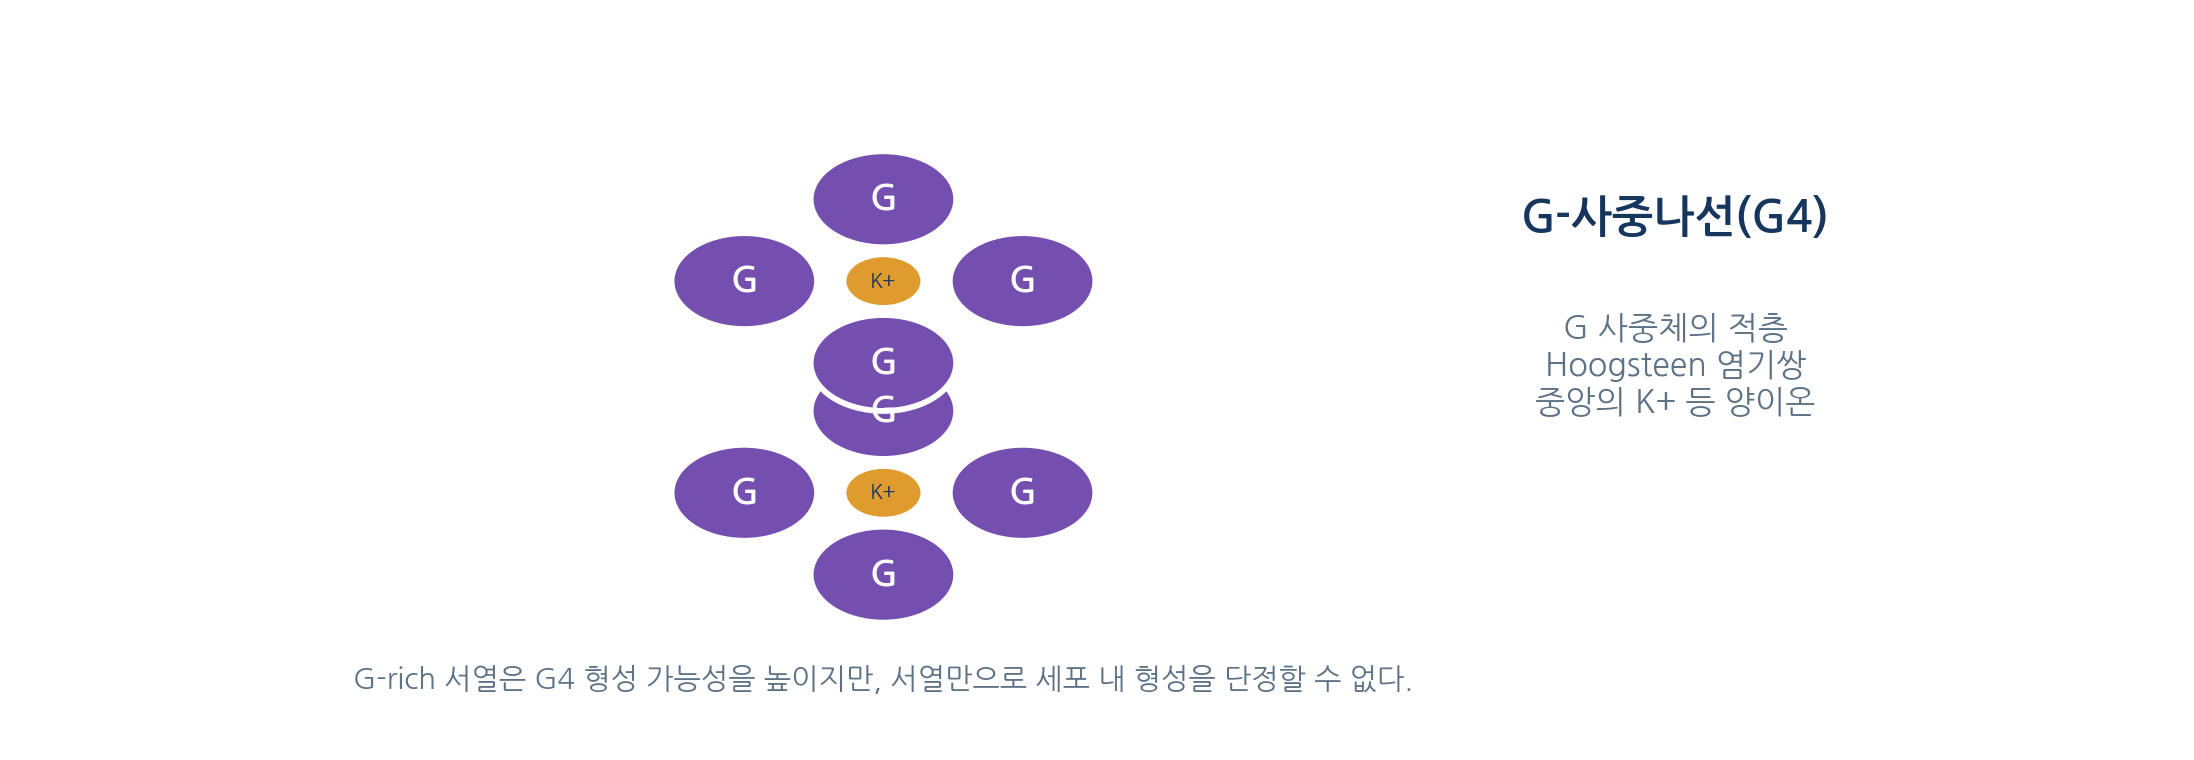
- G-사중체 = 네 구아닌이 Hoogsteen 수소결합으로 만드는 평면 구조, 적층되면 G4
- K⁺ 같은 단가 양이온이 중앙 통로에서 G4를 안정화
- G4 형성 능력은 시험관에서 확인할 수 있으나 생체 내 점유와 기능은 별개의 문제
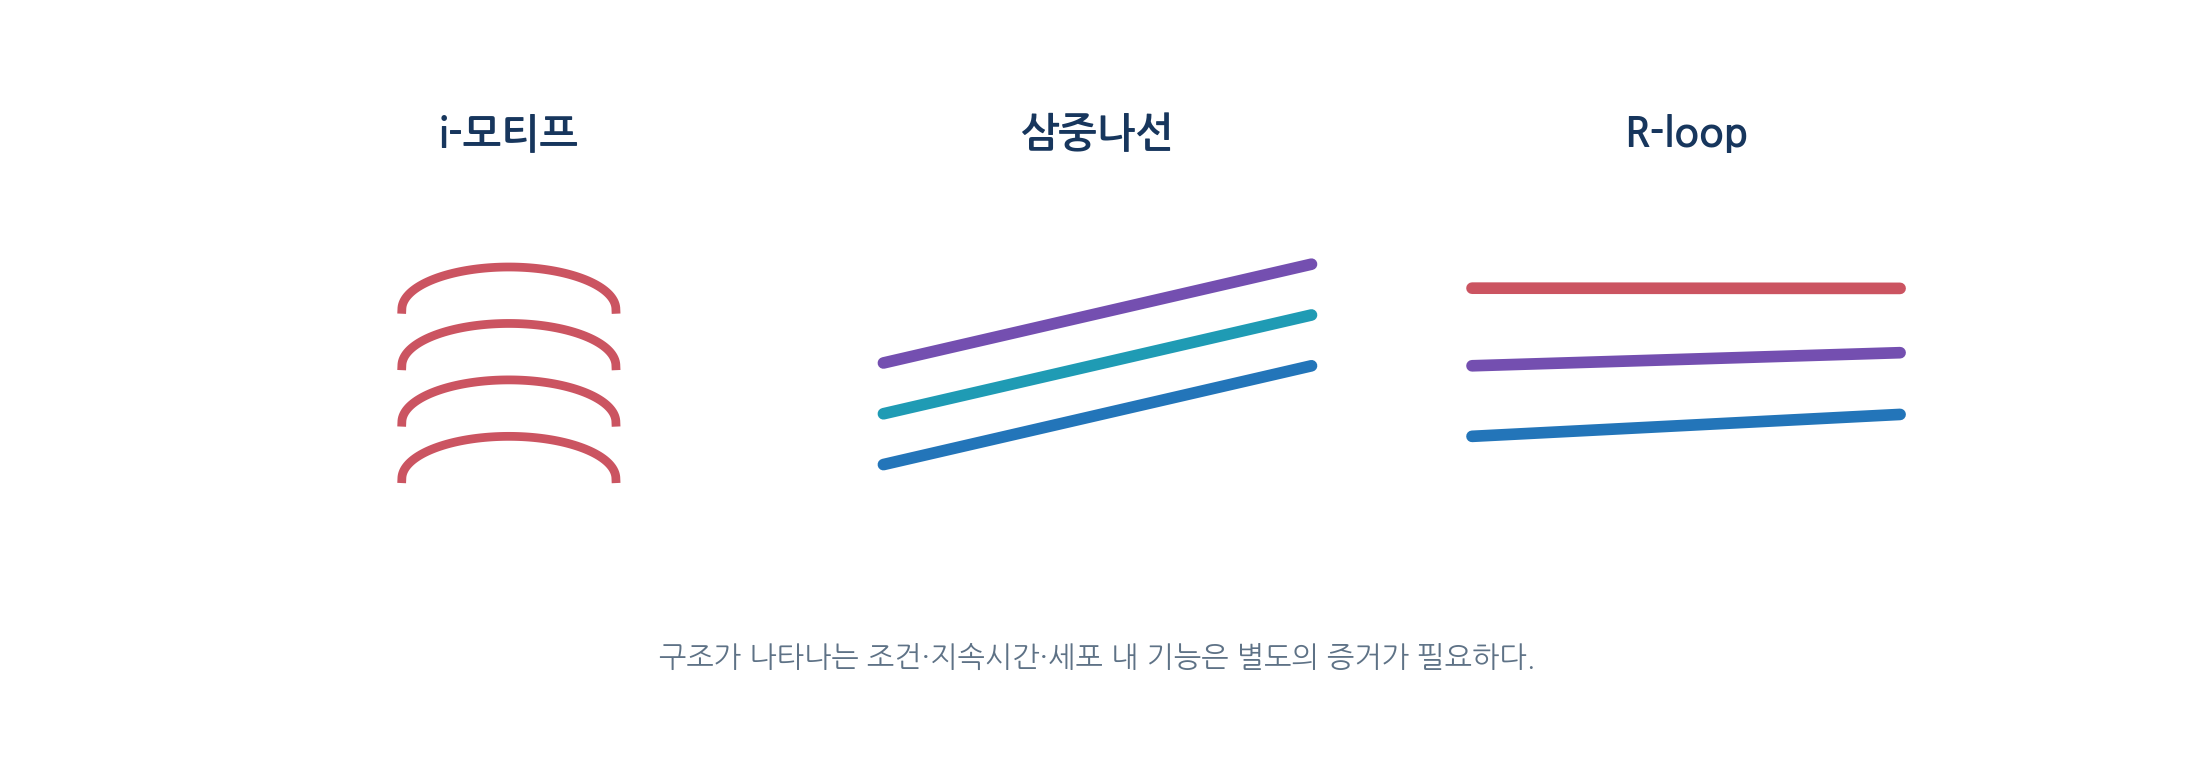
- C가 풍부한 서열은 C·C⁺ 염기쌍 기반 i-모티프를 형성할 수 있음
- 삼중나선 = 기존 이중나선의 큰 홈에 제3의 가닥이 Hoogsteen 상호작용으로 결합
- R-loop = RNA가 DNA 한 가닥과 혼성 이중가닥을 만들고 다른 가닥이 밀려나는 구조
- 형성 가능성·정제 시료 관찰·세포 내 기능 주장은 서로 다른 증거 수준을 요구
04
전령 RNA는 폴리펩타이드 사슬을 암호화한다
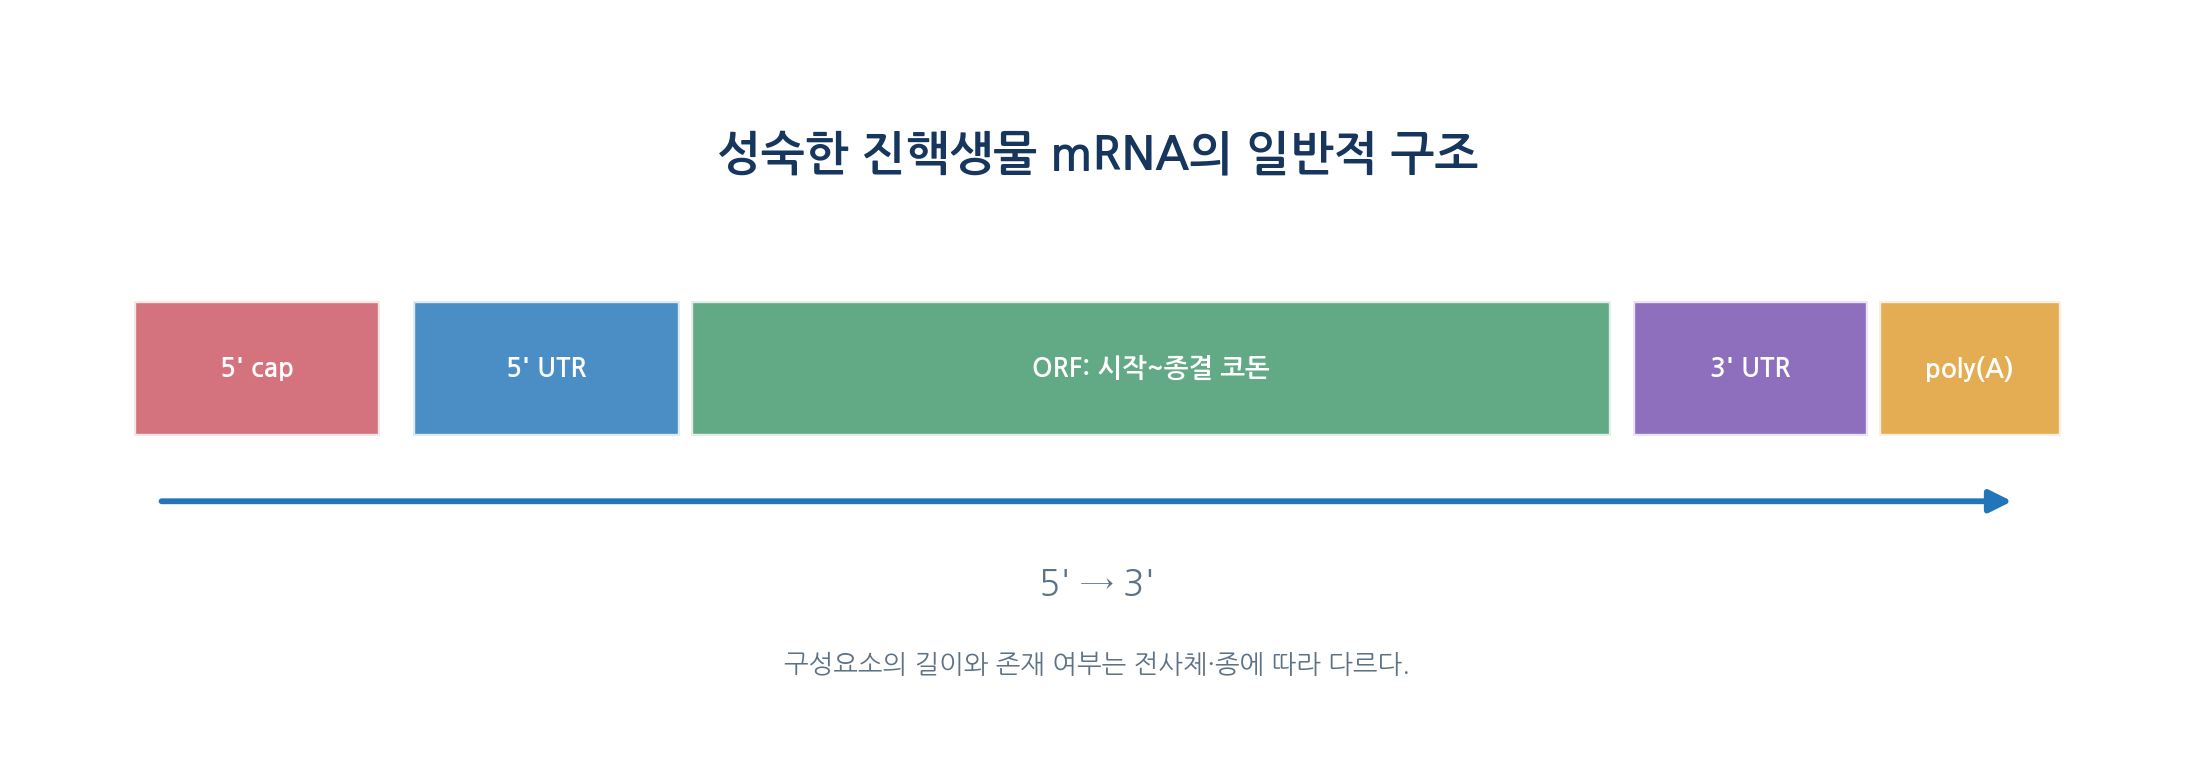
- mRNA는 코돈을 제공하고 5′ cap·5′ UTR·ORF·3′ UTR·poly(A) 꼬리로 구성
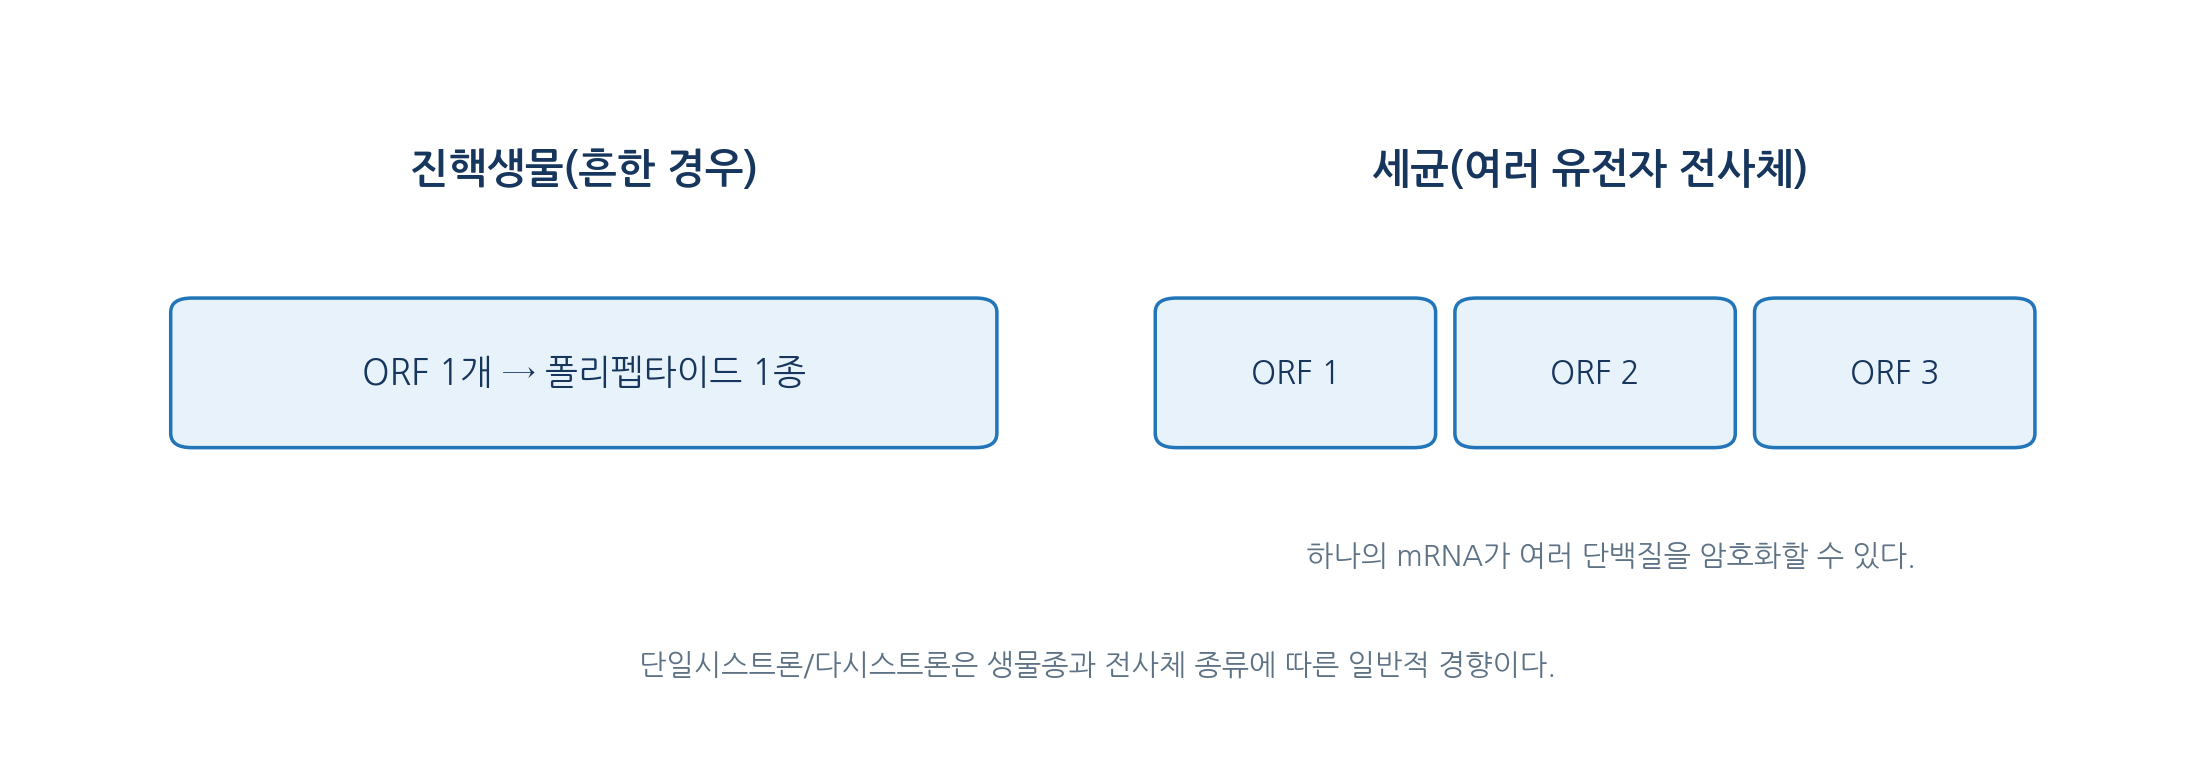
- ORF는 시작과 종결 코돈을 포함하며 종결 코돈은 아미노산을 지정하지 않음
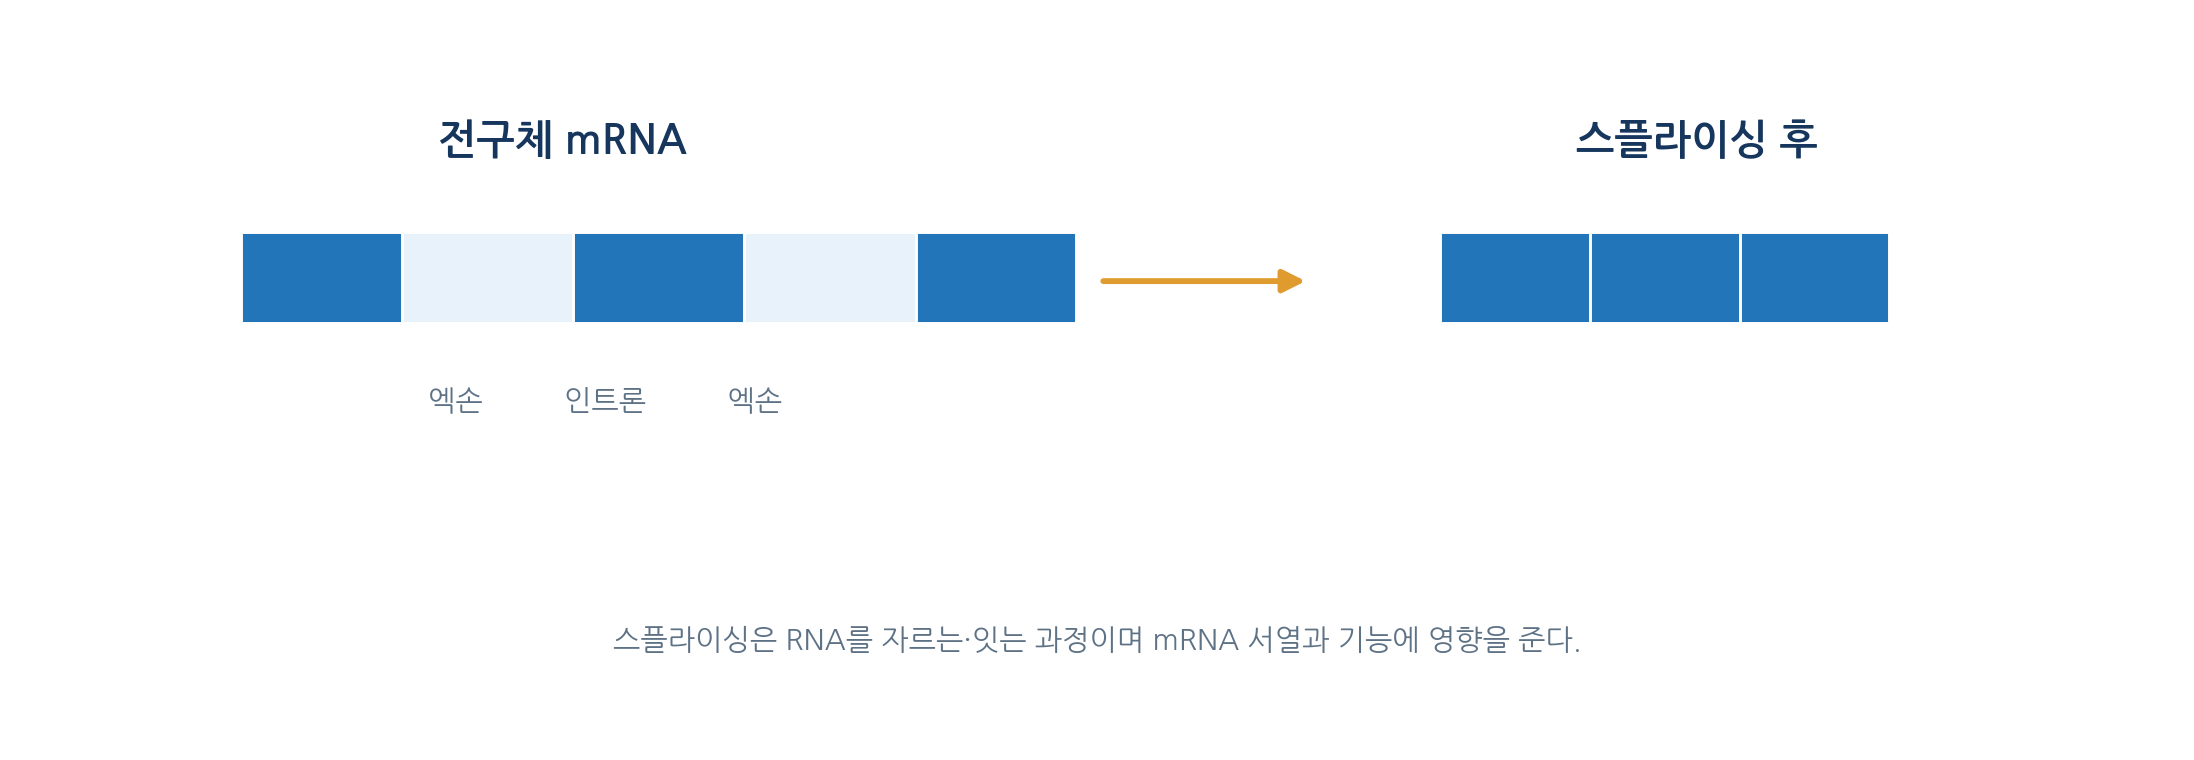
- 전구체 mRNA는 5′ cap 획득·스플라이싱·3′ 절단·폴리아데닐화를 거쳐 성숙
- 5′ cap은 5′–5′ 삼인산 연결을 갖고 poly(A) 꼬리는 안정성·번역·수송에 관여
- 스플라이싱 위치 선택이 달라지면 한 유전자에서 여러 산물이 생성
- 진핵 mRNA는 대개 단일시스트론, 세균은 다시스트론이 흔하지만 예외가 존재
- 예: 1,203 nt ORF는 401코돈이고 종결 코돈을 제외하면 400잔기
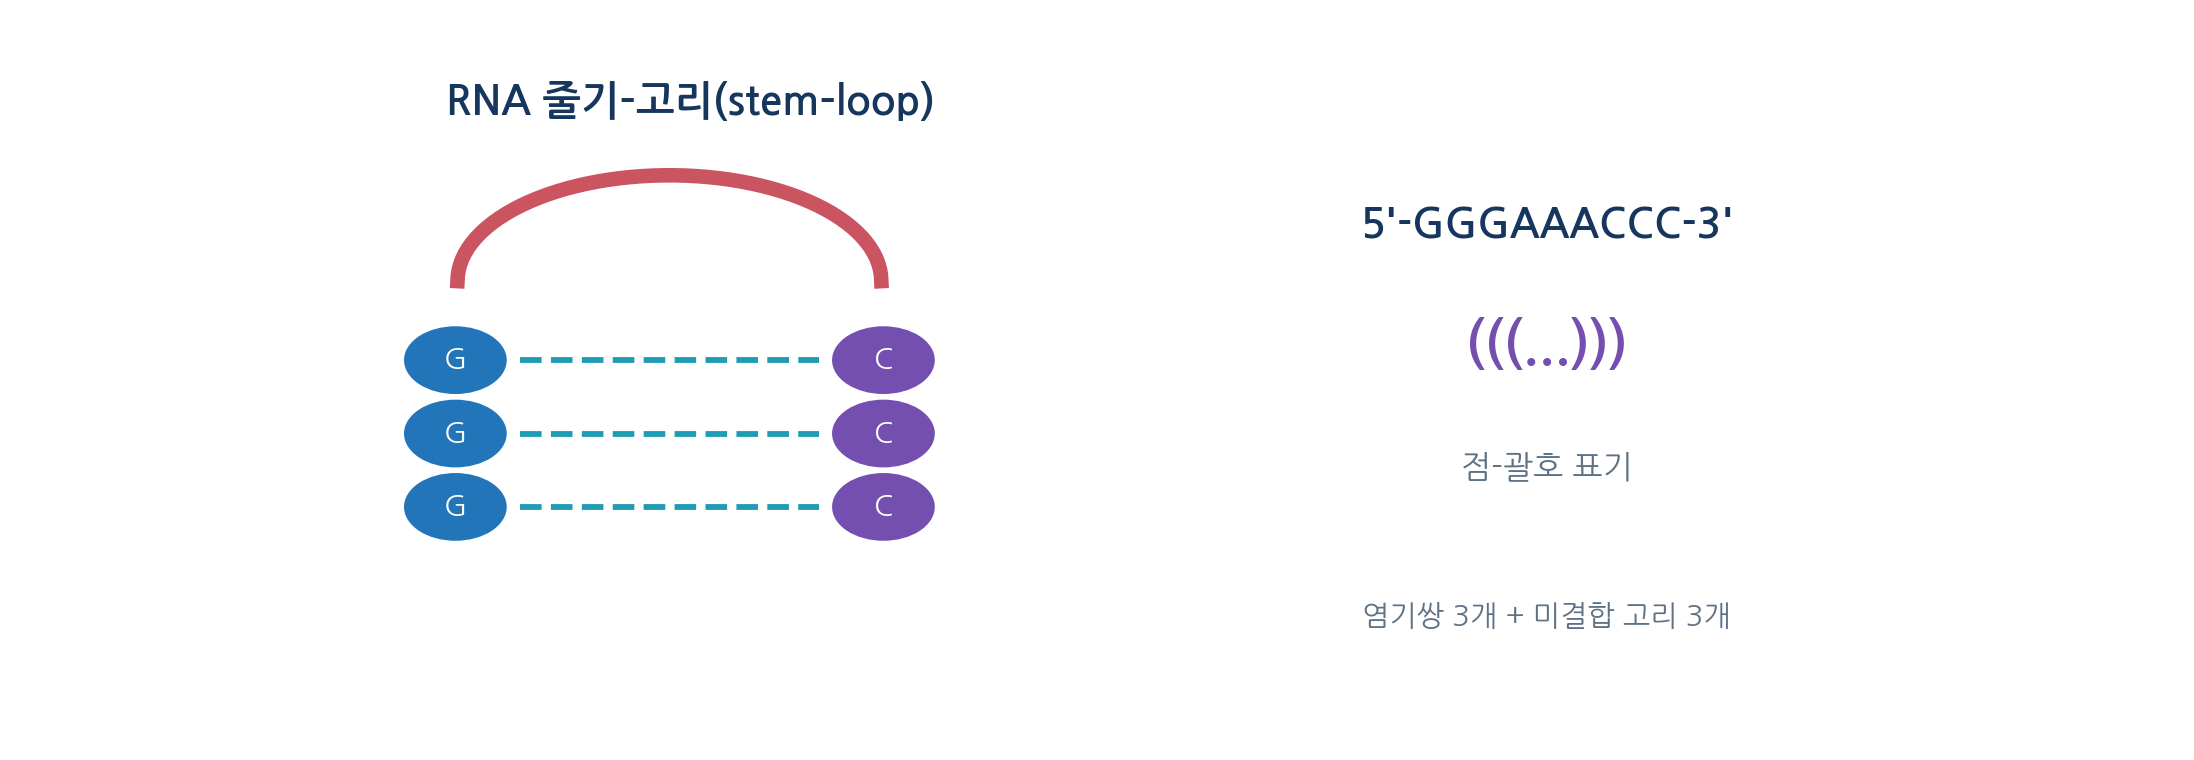
- 5′ UTR의 줄기–고리는 번역 개시 인자 접근성을, 3′ UTR 구조는 단백질·조절 RNA 작용과 연계
- 페리틴 mRNA의 철 반응 요소는 철 대사 조절 단백질과 상호작용
05
많은 RNA는 복잡한 3차원 구조를 갖는다
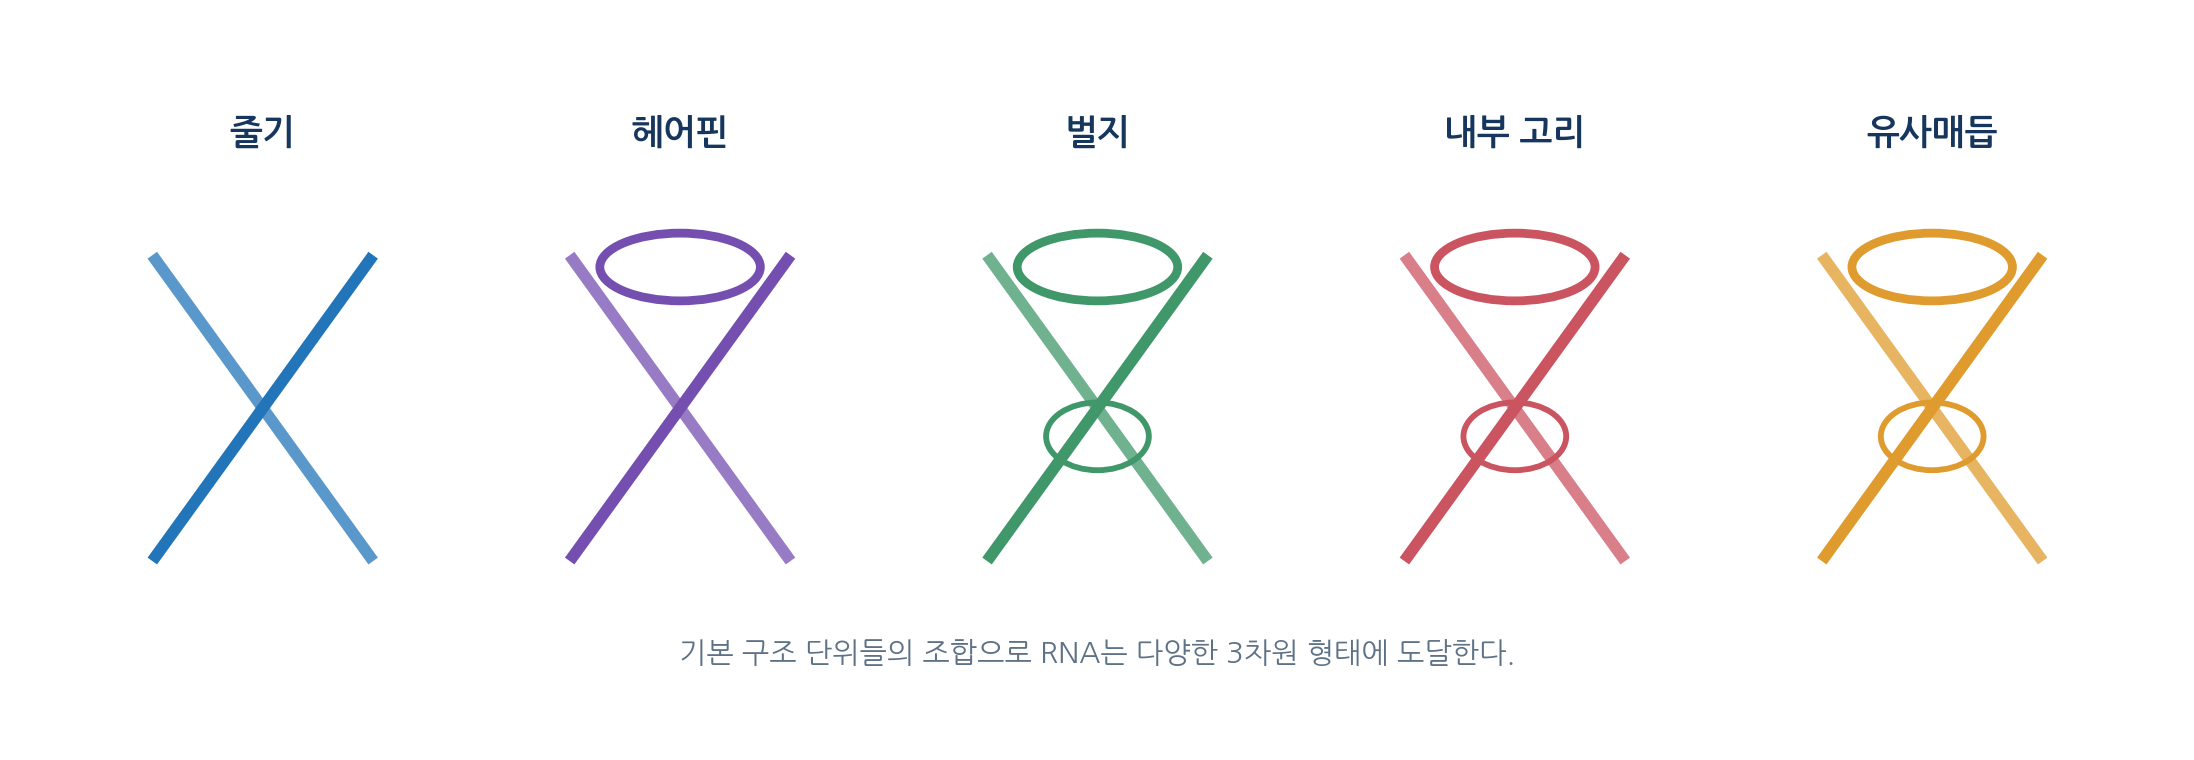
- 2차 구조는 줄기·헤어핀 고리·벌지·내부 고리·다분지 고리·유사매듭으로 기술
- 3차 구조는 장거리 접촉·염기와 당과 인산의 배치·금속 이온과 단백질 결합까지 포함
- A·U와 G·C 외에 G·U 흔들림 염기쌍과 비정형 상호작용이 존재
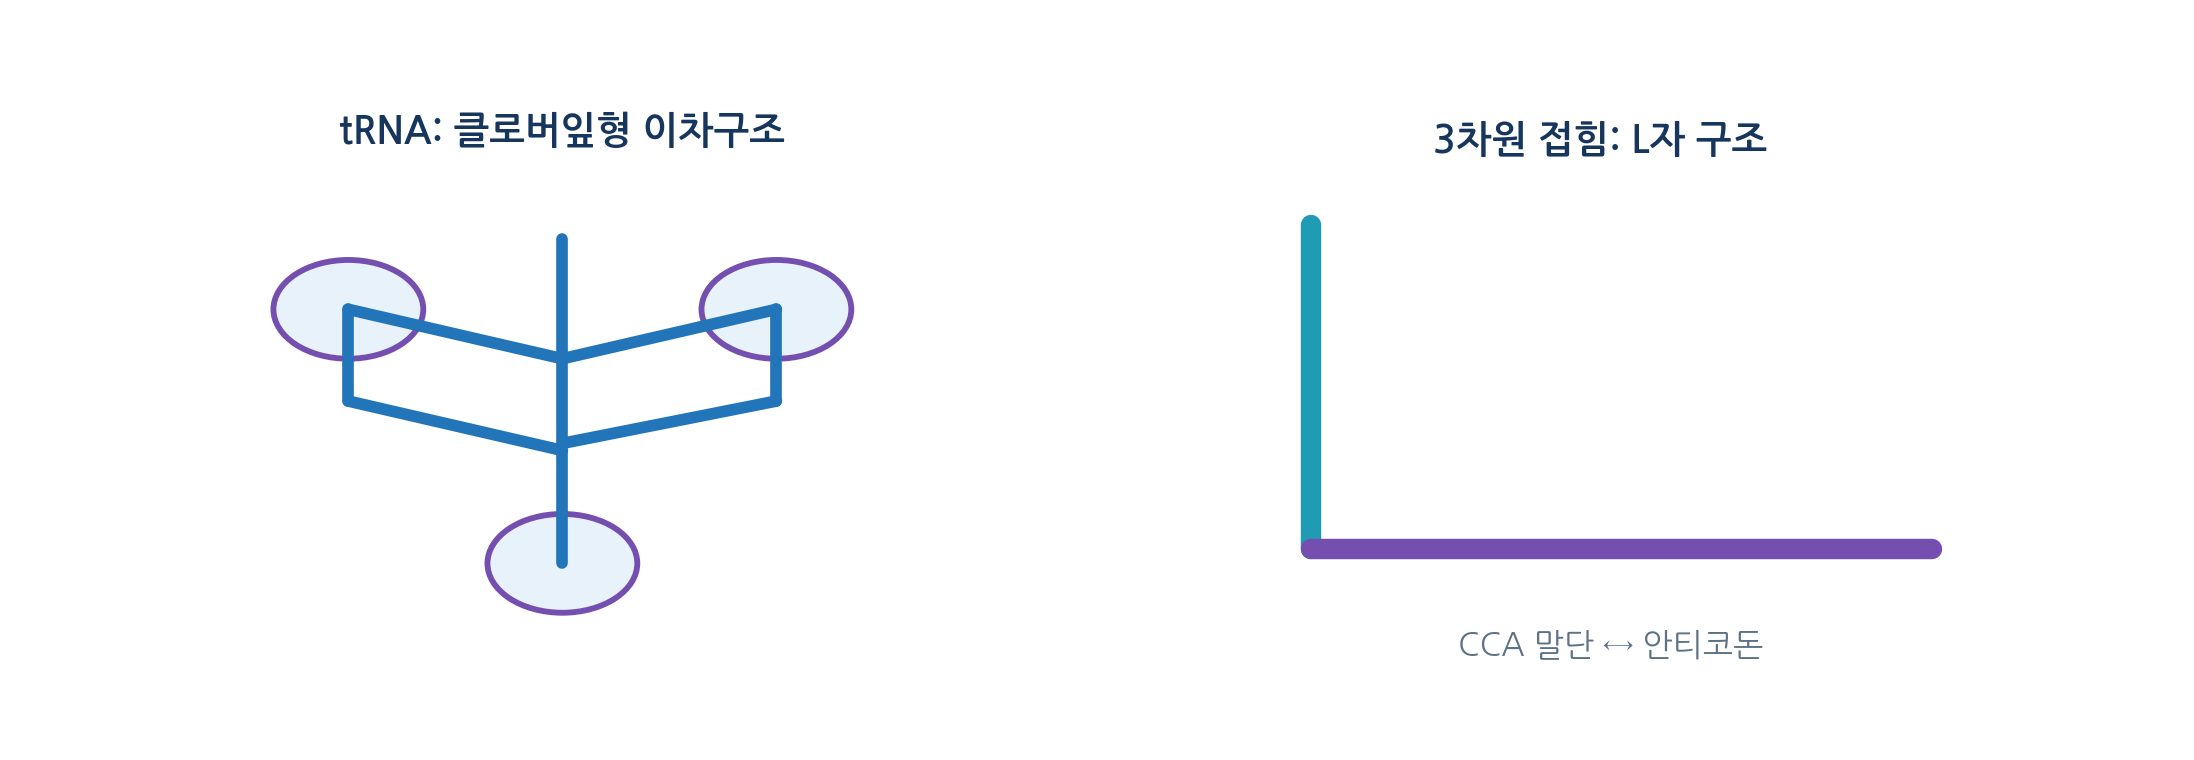
- tRNA는 70~90 nt이고 2차 구조는 클로버잎이나 실제 분자는 L자형 3차 구조
- 3′ 말단 CCA에 아미노산이 결합하고 안티코돈이 코돈과 상보적으로 결합
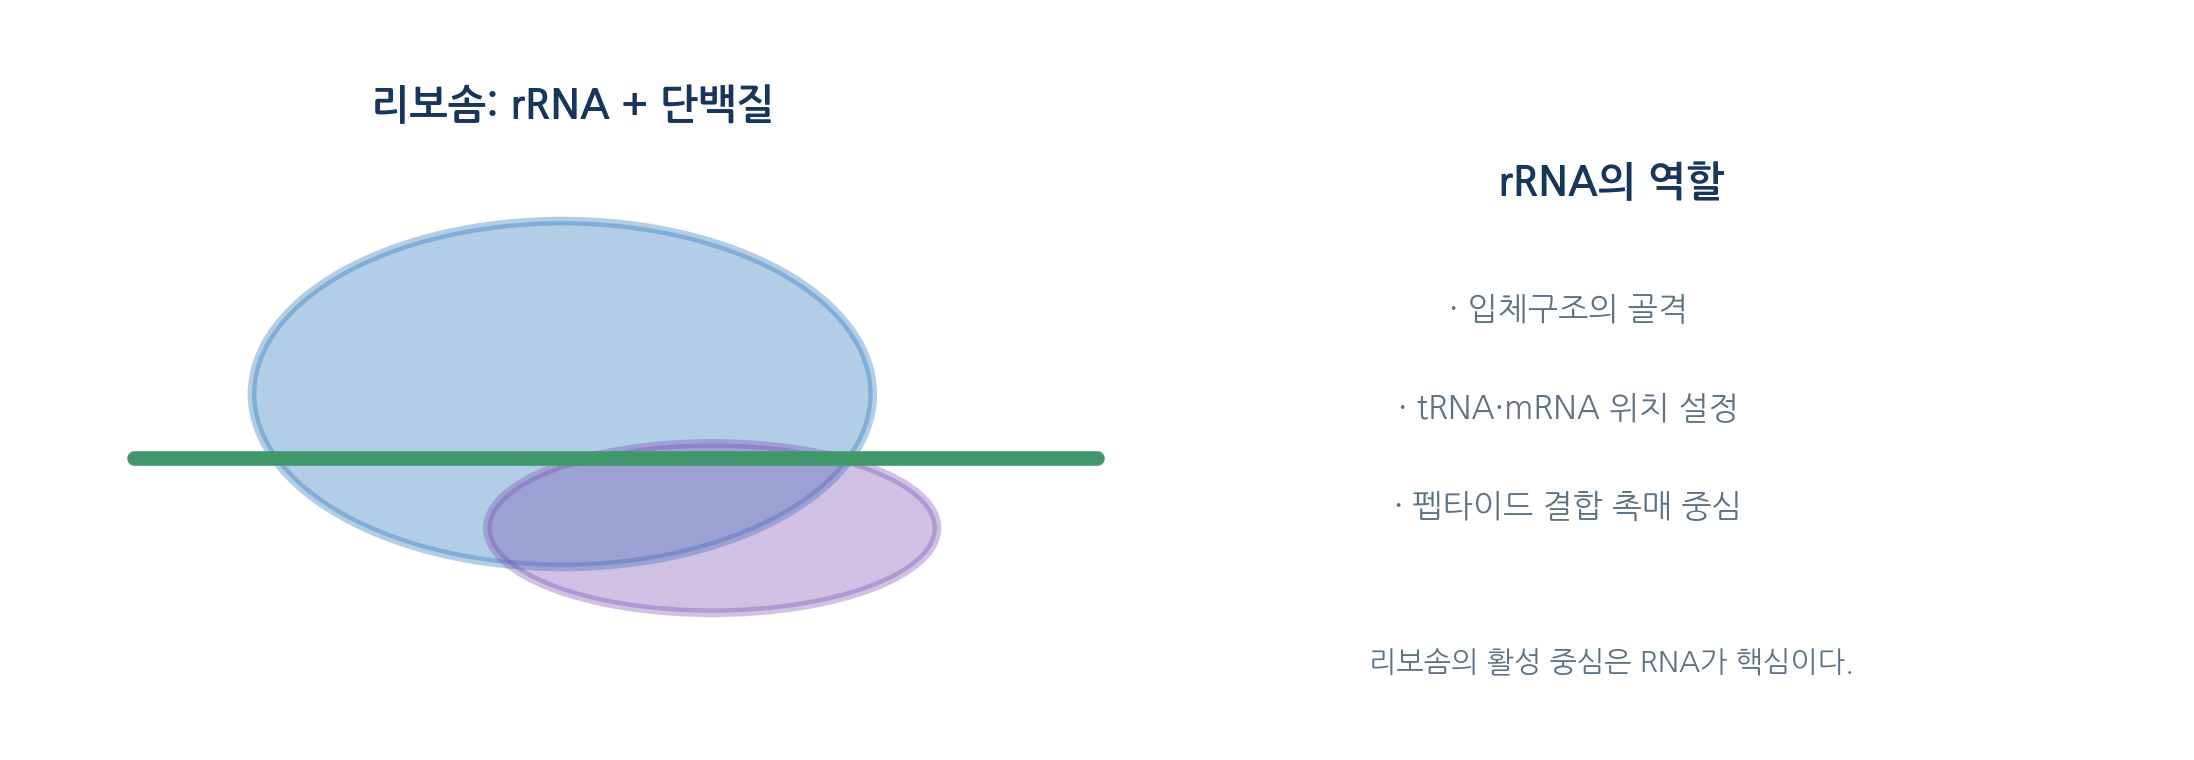
- 리보솜은 rRNA가 골격 형성·위치 결정·펩타이드 결합 촉매 중심을 담당
- 리보자임 = 스스로 화학 반응을 촉매하는 RNA로 리보솜이 대표적 생물학적 사례
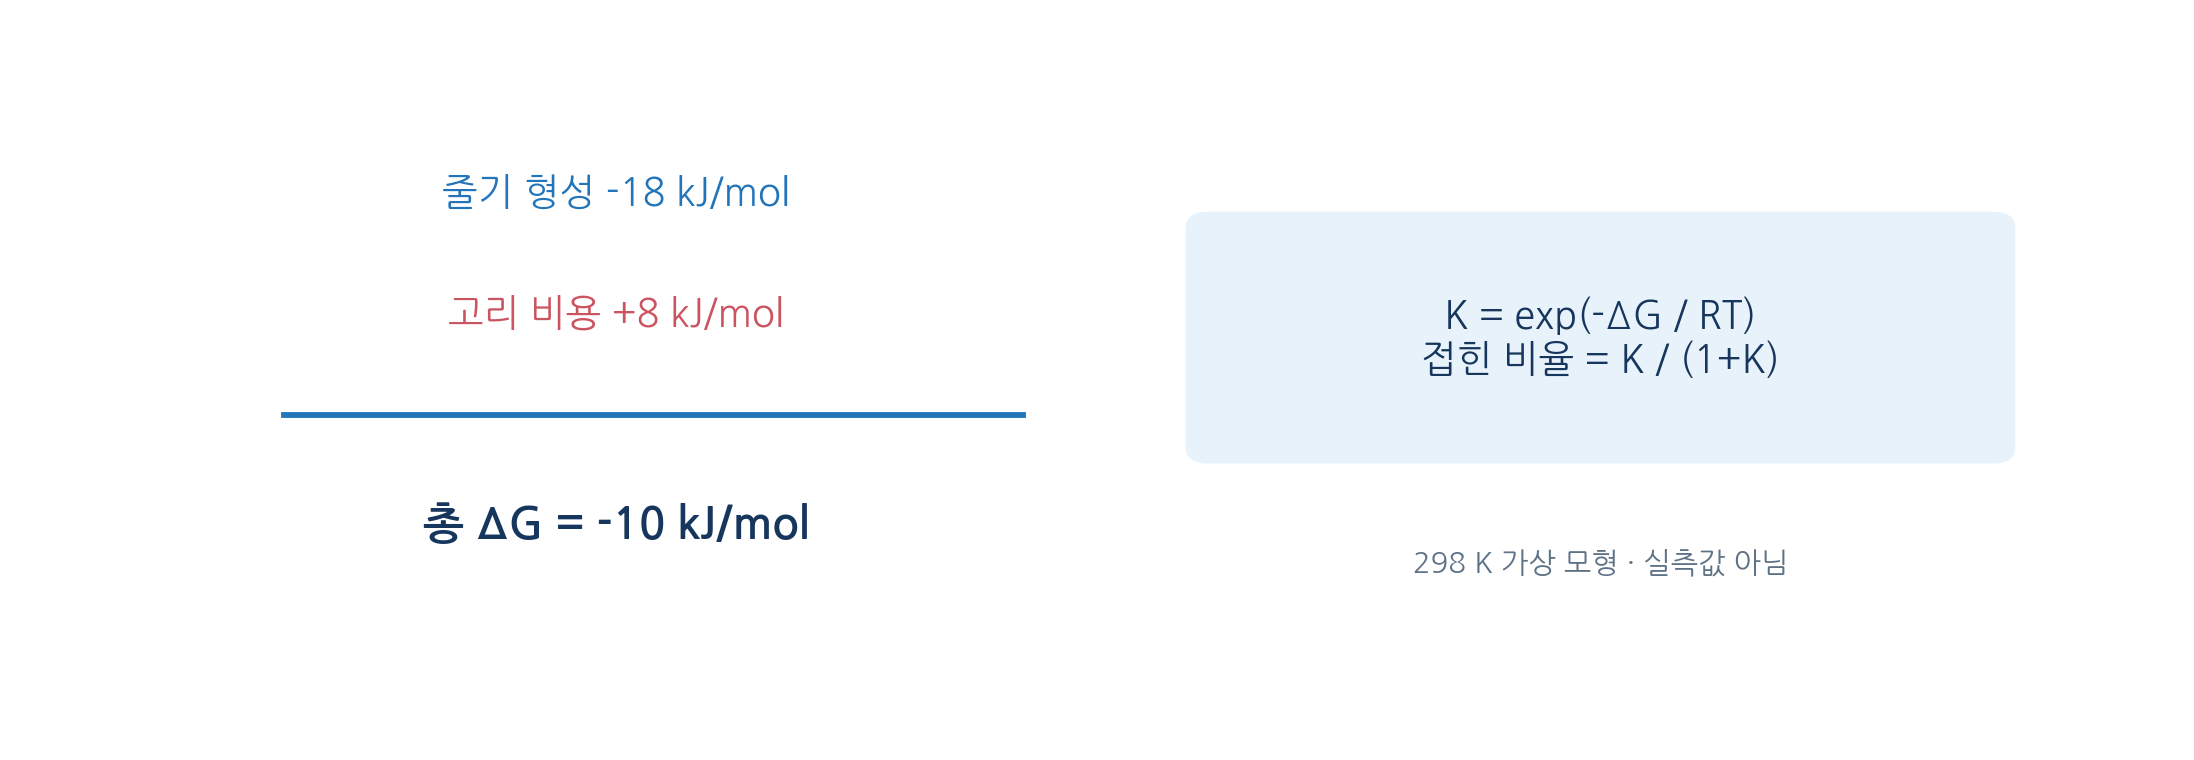
- 2차 구조 예측은 인접 염기쌍과 고리 종류를 고려하는 최근접 이웃 자유에너지 모형을 사용
- 예: ΔG° −10.0 kJ/mol이면 K ≈ 56.5, 접힌 분율 약 98.3%
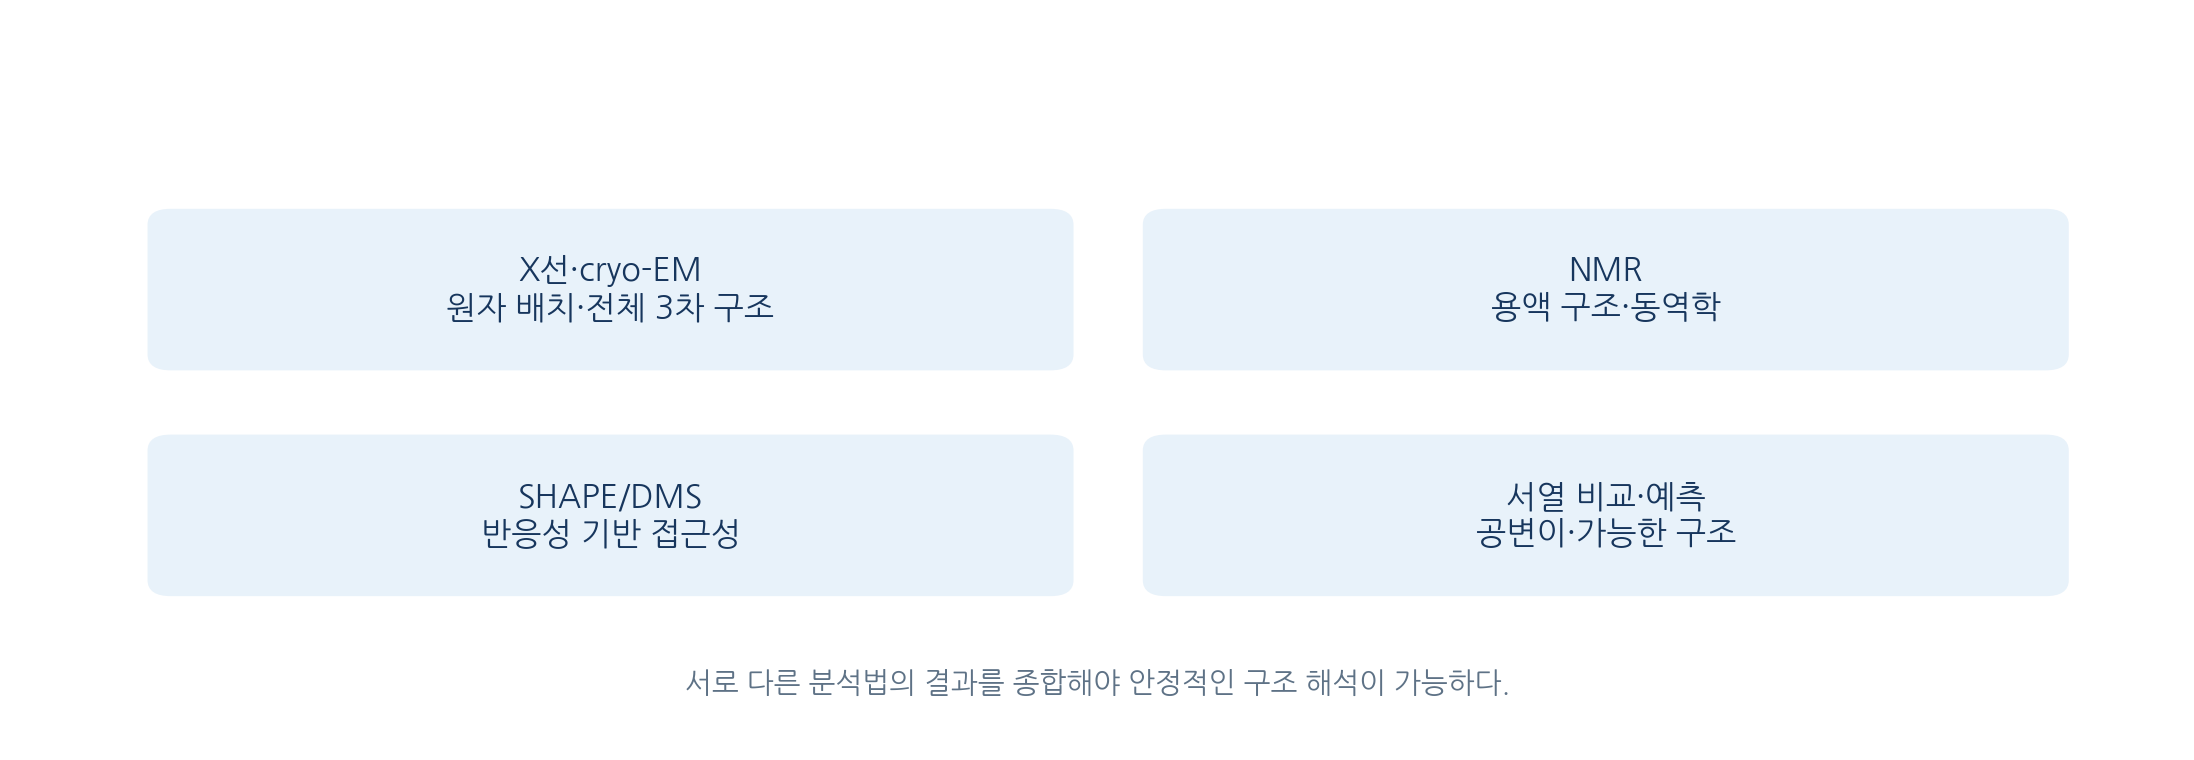
- X선·cryo-EM·NMR·SHAPE·DMS·공변이 분석·구조 예측은 서로 보완적
참조 자료 · References
| 특성 | A형 DNA | B형 DNA | Z형 DNA |
|---|---|---|---|
| 나선 방향 | 오른손 | 오른손 | 왼손 |
| 염기쌍/회전 | 약 11 | 약 10.5 | 약 12 |
| 상승량(nm/bp) | 약 0.255 | 약 0.340 | 약 0.370 |
| 지름(nm) | 약 2.3 | 약 2.0 | 약 1.8 |
| 특징 | 넓고 짧음, 염기쌍 기울기 큼 | 일반적 수용액 조건의 DNA | 교대 서열에서 형성되기 쉬운 지그재그 골격 |
| 관찰 | 말할 수 있는 결론 | 추가로 필요한 증거 |
|---|---|---|
| G가 많은 서열 | G4 형성 가능성 검토 | 구조 특이적 실험·세포 내 검출 |
| CD 스펙트럼 변화 | 평균적 구조 변화 가능성 | 독립적 구조 분석·대조군 |
| 특정 항체 신호 | 해당 구조 또는 항원 존재 가능성 | 특이성·교차반응 검증 |
| X선·NMR·cryo-EM 결과 | 조건에 따른 3차원 구조 제약 | 세포 내 동역학·생리적 존재량 확인 |