01
이중나선 DNA와 RNA는 변성될 수 있다
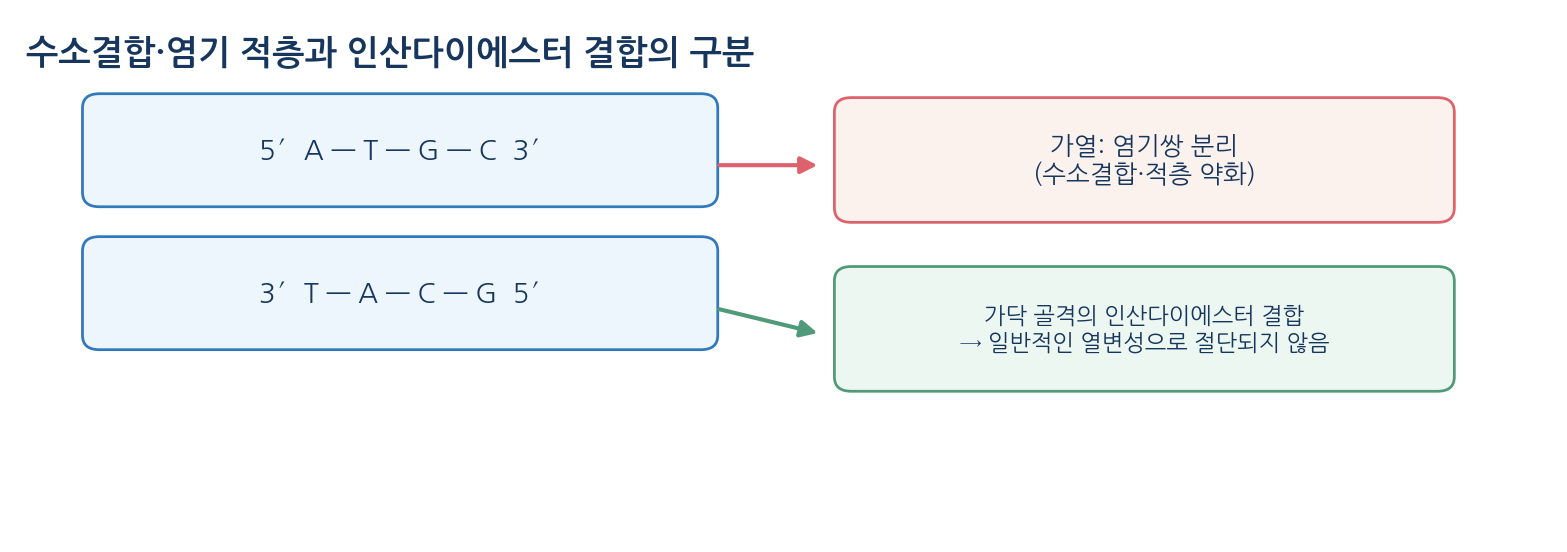
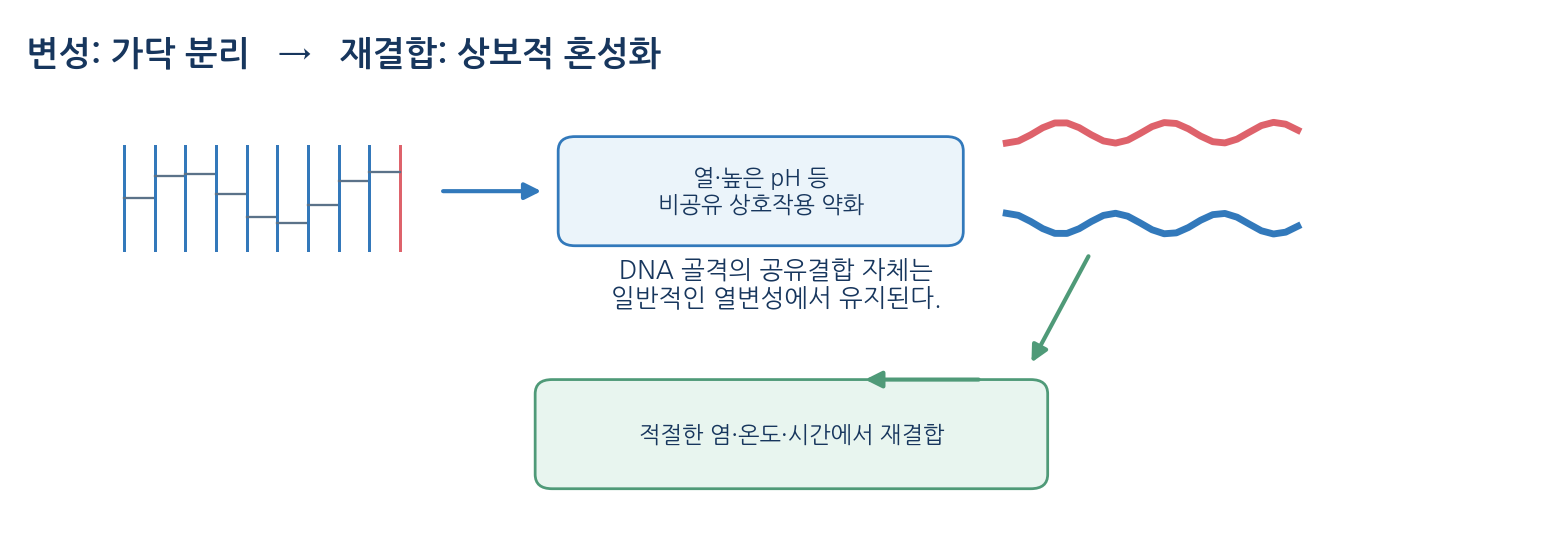
- 변성 = 상보 가닥이 분리되어 염기쌍과 적층이 약해지는 과정
- 열·극단적 pH·화학적 변성제가 이중가닥 안정성을 감소시킴
- 당–인산 골격의 인산다이에스터 공유결합은 유지되므로 변성과 가닥 절단은 다른 현상
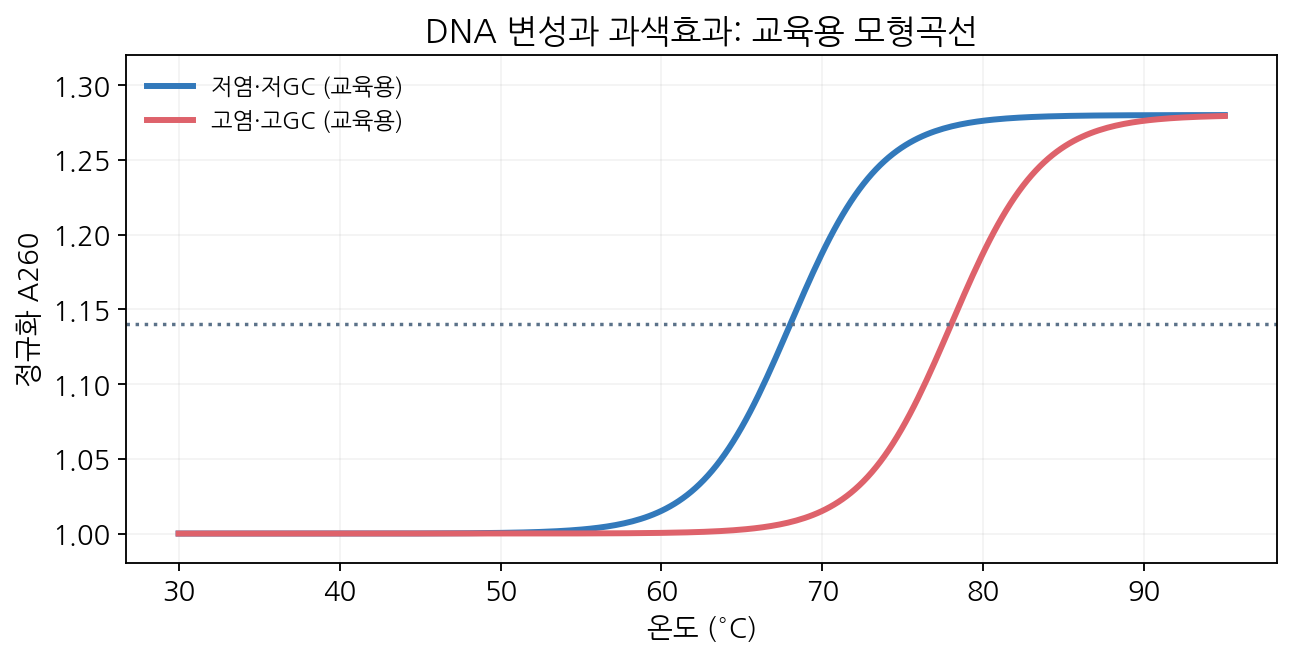
- 염기 적층이 풀리면 260 nm 흡광도가 증가하는 과색효과가 나타남
- Tm = 주어진 조건에서 이중가닥의 약 절반이 분리되는 온도
- 예: A260이 1.00에서 1.28로 변하면 과색 증가율 28%, 중간값 1.14가 이 모형의 Tm
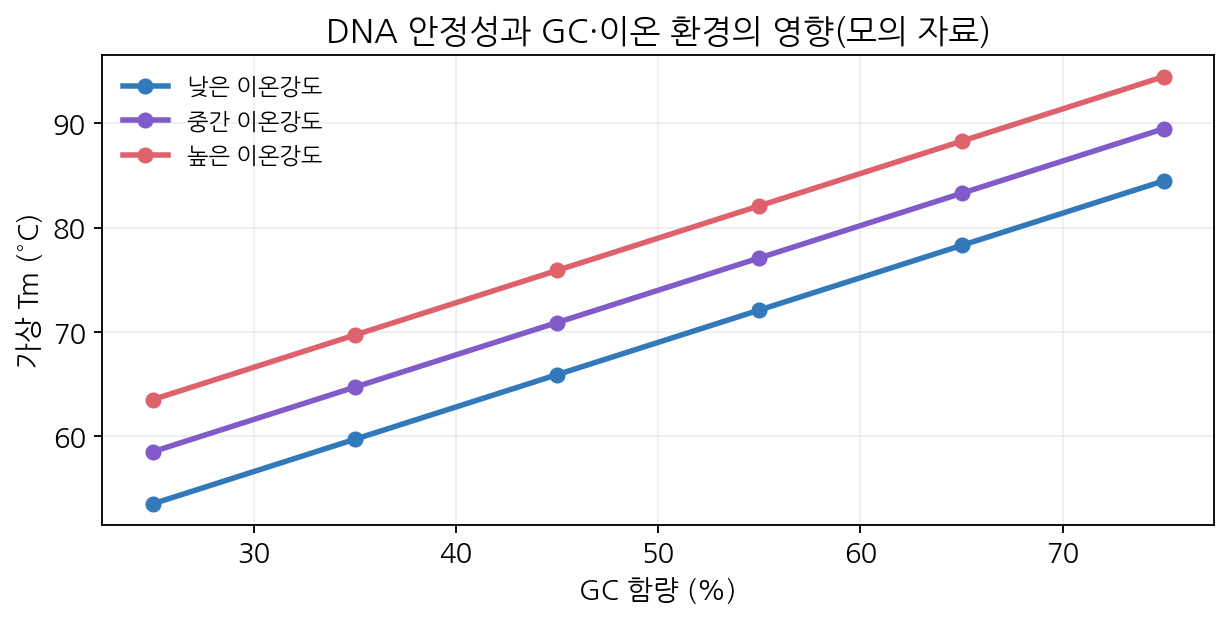
- GC 함량·적층에너지·서열 배열·이온에 의한 인산기 차폐가 함께 Tm을 결정
- 적정 이온강도가 증가하면 Tm이 높아지는 경향
- 재결합·혼성화는 상보성·가닥 농도·길이·반복서열·온도 변화 속도에 의존하며 냉각만으로 항상 완전히 재결합되지는 않음
02
뉴클레오타이드와 핵산은 비효소적 변화를 겪는다
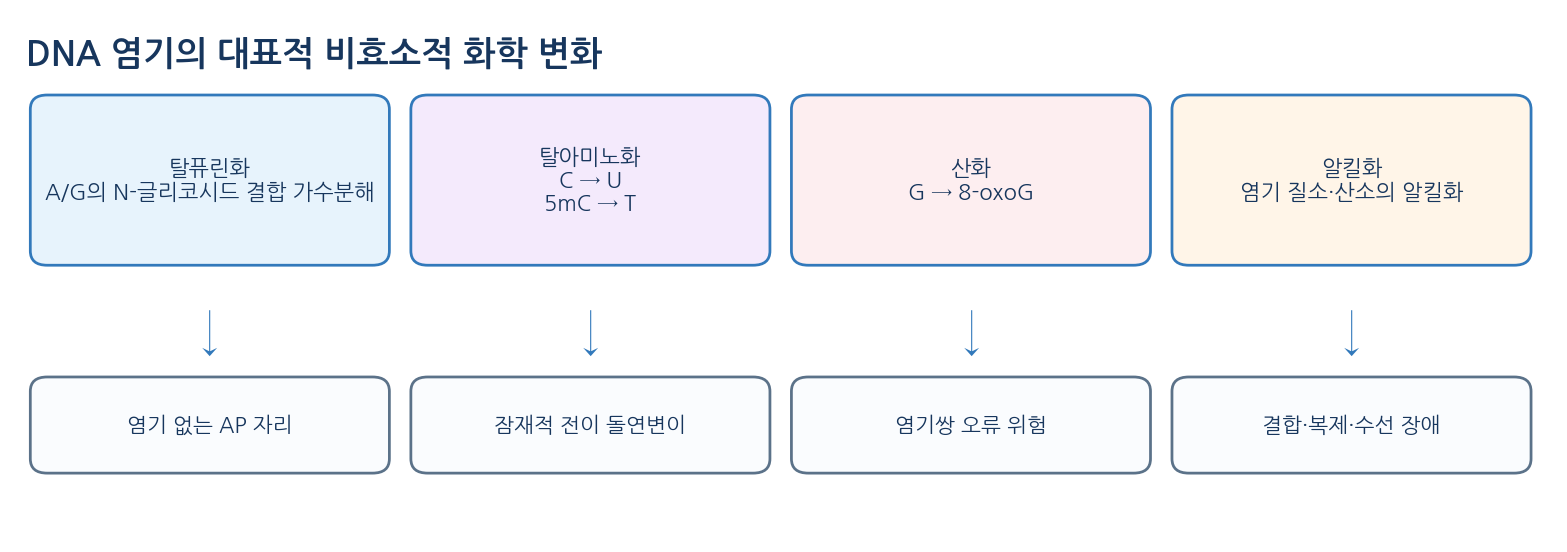
- 탈퓨린화 = 퓨린과 디옥시리보스 사이 N-글리코시드 결합의 자발적 가수분해로 염기가 떨어지는 변화
- 그 자리에 남는 AP 자리는 복제·전사 장애를 일으키고 미수선 시 돌연변이로 이어짐
- 시토신 탈아미노화는 유라실을 만들고, 미제거 시 다음 복제에서 염기쌍 변화가 고정
- 5-메틸시토신 탈아미노화는 티민을 만들어 정상 염기와 구별이 어려움
- 그래서 메틸화된 CpG 위치가 유전체에서 변이 취약 부위가 됨
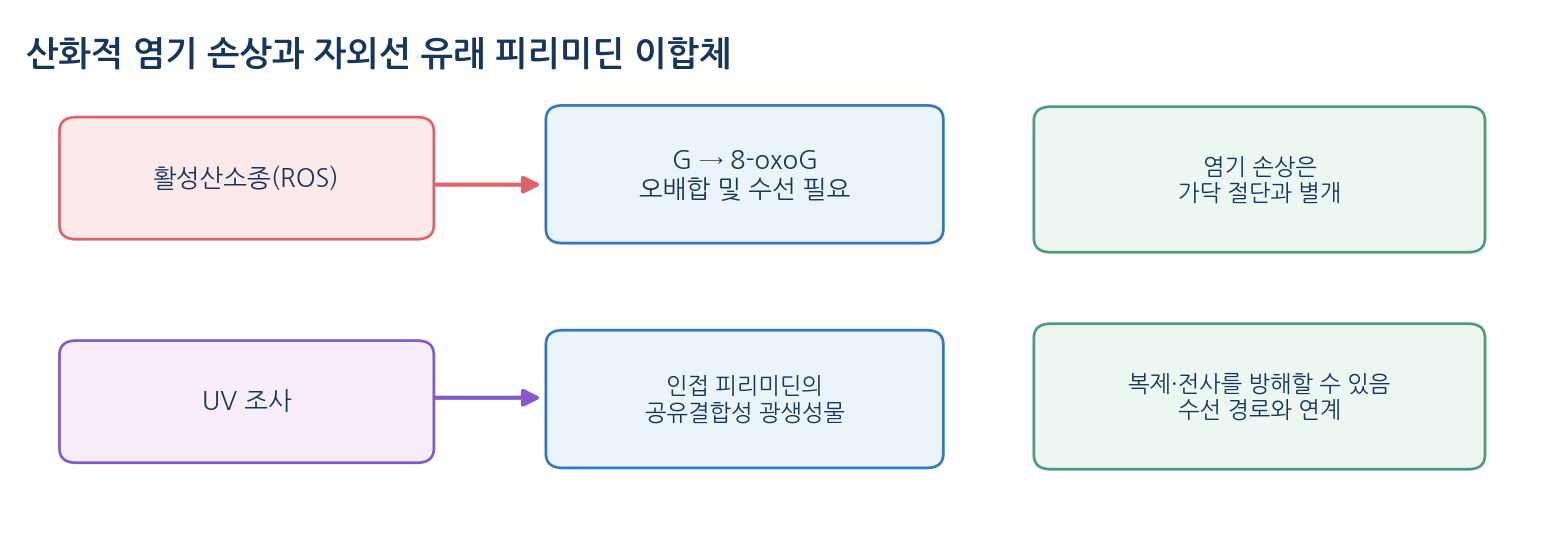
- 반응성 산소종은 구아닌을 산화해 8-옥소구아닌 같은 손상을 만듦
- 자외선은 인접 피리미딘 사이 광생성물을, 알킬화는 염기의 특정 원자에 화학기를 붙임
- 손상된 DNA는 복구 효소로 회복될 수 있으나 남으면 서열 변화로 고정
- 염기 손상(화학적으로 변한 분자 상태)과 돌연변이(서열 변화로 고정된 결과)는 같은 말이 아님
03
일부 DNA 염기는 메틸화된다
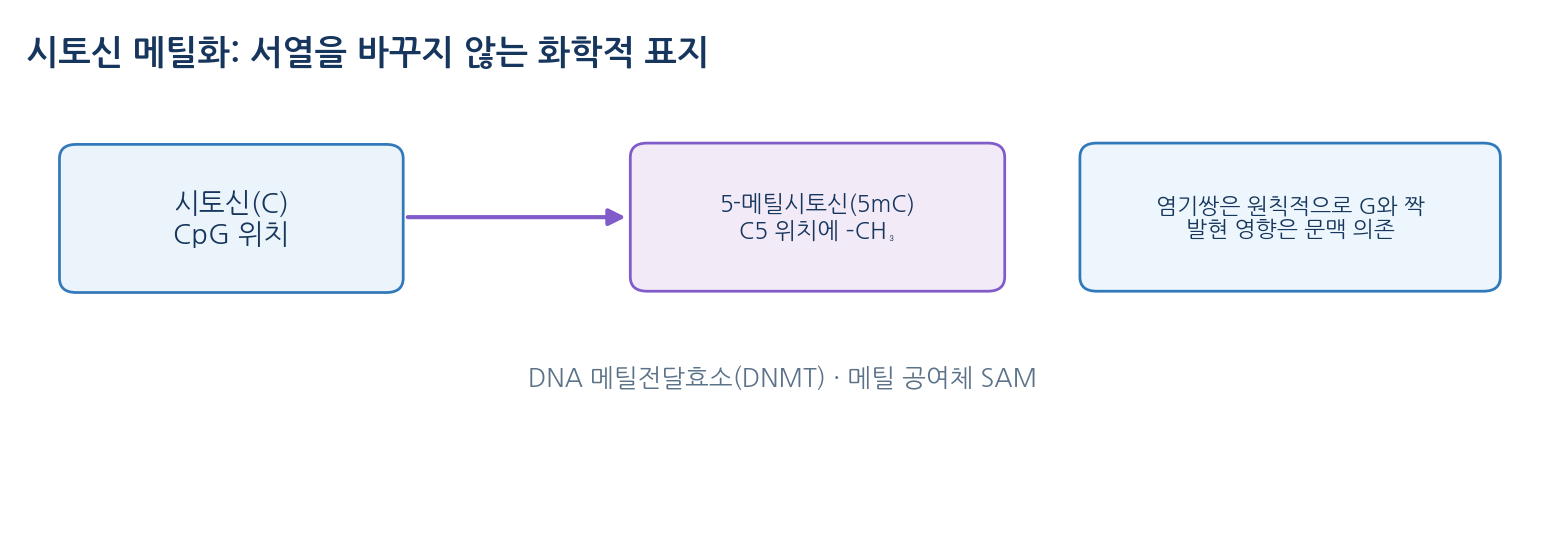
- 5-메틸시토신 = 시토신 C5에 메틸기가 결합한 염기, 포유류에서는 CpG 디뉴클레오타이드가 흔한 위치
- DNA 메틸전달효소가 S-아데노실메티오닌을 메틸기 공여체로 사용
- 메틸화된 시토신도 구아닌과 짝을 이루므로 A·T·G·C 표기만으로는 메틸화를 알 수 없음
- 메틸화는 유전자 발현 조절·세포 유형 유지·유전체 각인·전이성 요소 조절과 관련
- 그러나 메틸화가 항상 발현 억제를 뜻하지는 않음
- 발현 변화가 관찰되어도 메틸화가 직접 원인인지 확인하려면 추가 실험이 필요
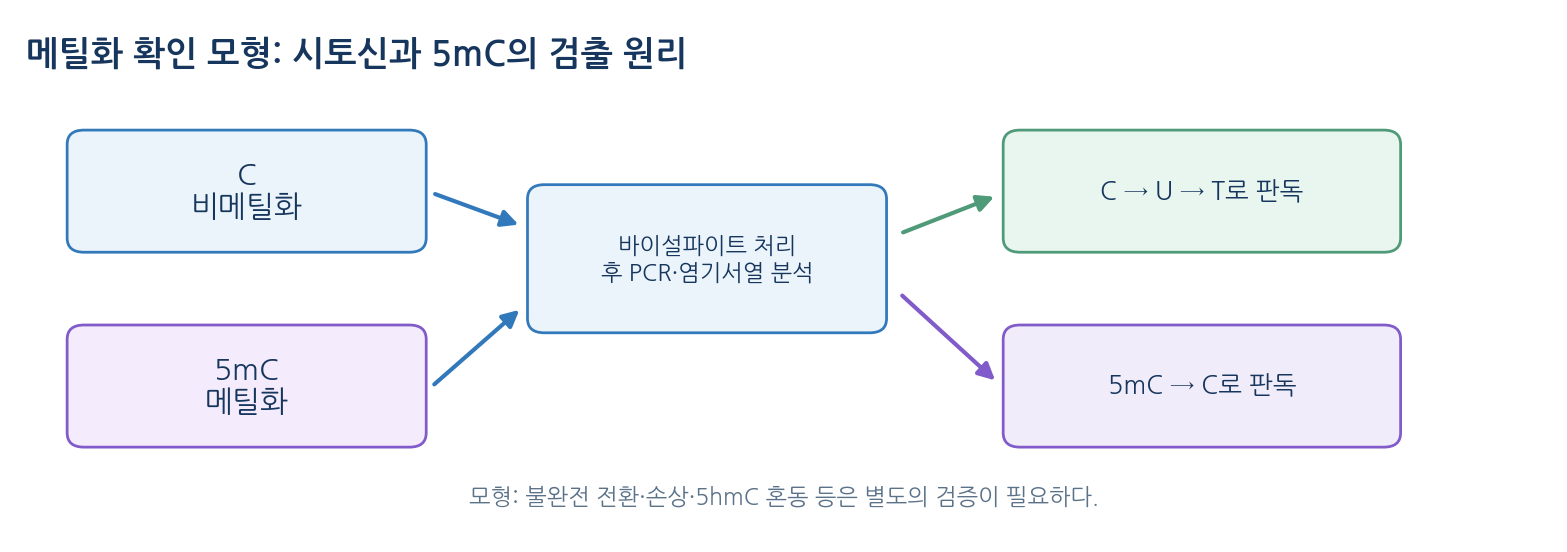
- 바이설파이트 처리에서는 비메틸화 시토신이 우라실로 전환되어 T로 판독되고 5mC는 상대적으로 보존
- 불완전 전환·시료 손상·5-하이드록시메틸시토신 구별은 별도 검증이 필요
- 예: 100회 판독 중 C 72·T 28이면 이상 모형에서 메틸화 분율 약 72%
04
DNA 화학 합성은 자동화되었다
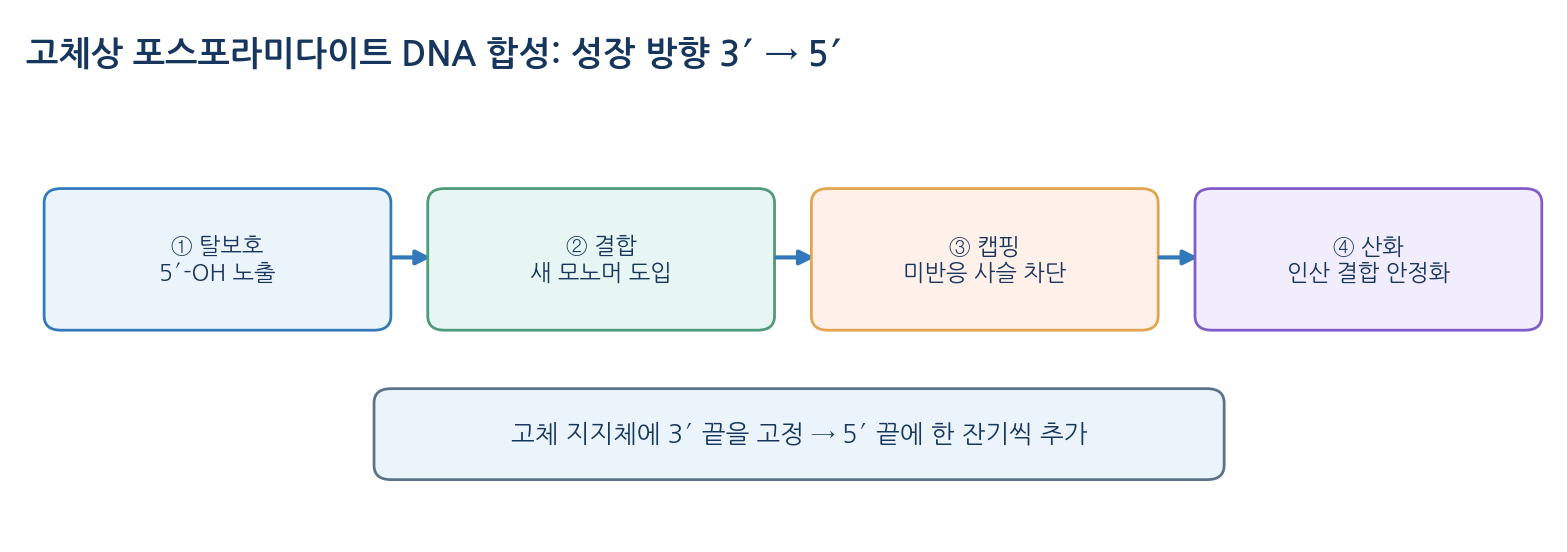
- 포스포라미다이트법은 성장하는 올리고뉴클레오타이드를 고체 지지체에 고정하고 보호된 모노머를 하나씩 결합
- 합성은 고체에 고정된 3′ 말단에서 시작해 5′ 말단으로 성장하므로 조립 방향이 3′→5′
- 생체 DNA 중합효소는 3′-OH에 뉴클레오타이드를 붙여 5′→3′로 합성하므로 방향이 반대
- 합성 주기 = 5′-DMT 탈보호 → 활성화 모노머 결합 → 미반응 5′-OH 캡핑 → 인 결합 산화
- 캡핑은 미반응 사슬이 더 연장되지 않게 하는 단계
- 완성 후 보호기 제거·지지체 분리·정제·품질 확인을 거침
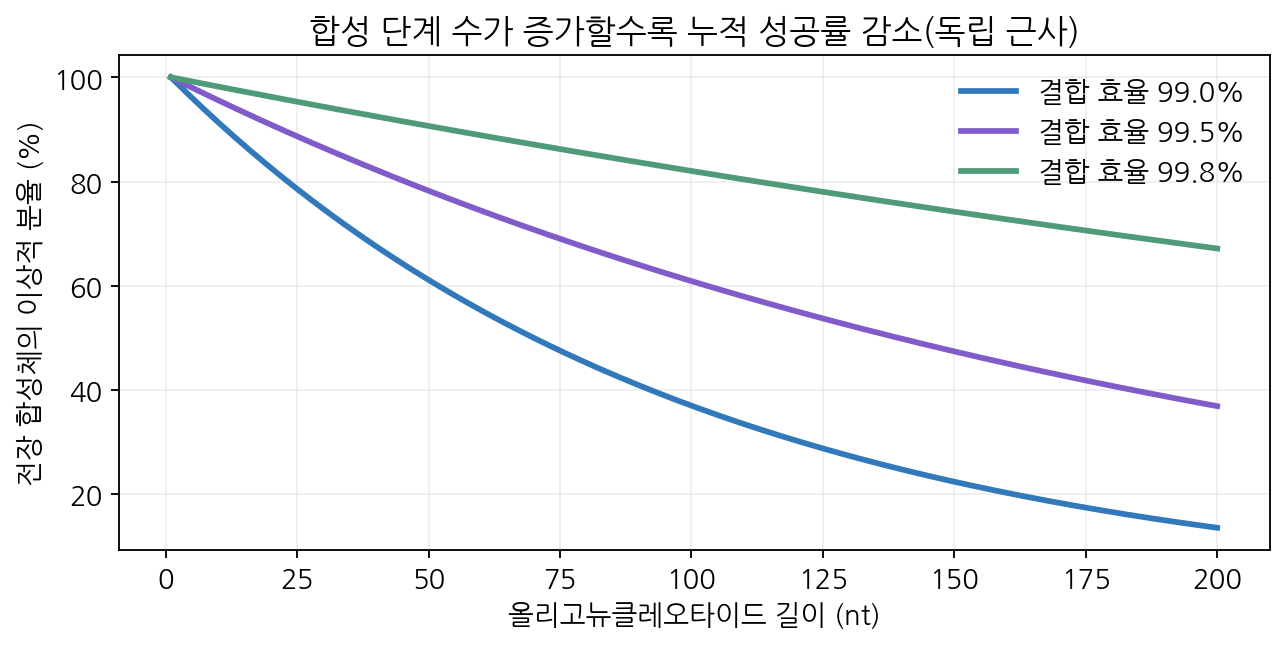
- 각 결합의 성공률이 p면 n−1번 결합이 모두 성공할 확률은 p^(n−1)
- 예: 50 nt 올리고의 49번 결합이 99.5%면 0.995⁴⁹ ≈ 78.2%
- 이 값은 나머지 처리 손실을 고려하지 않은 상한에 가까운 이상 모형값
05
유전자 서열은 중합효소연쇄반응으로 증폭될 수 있다
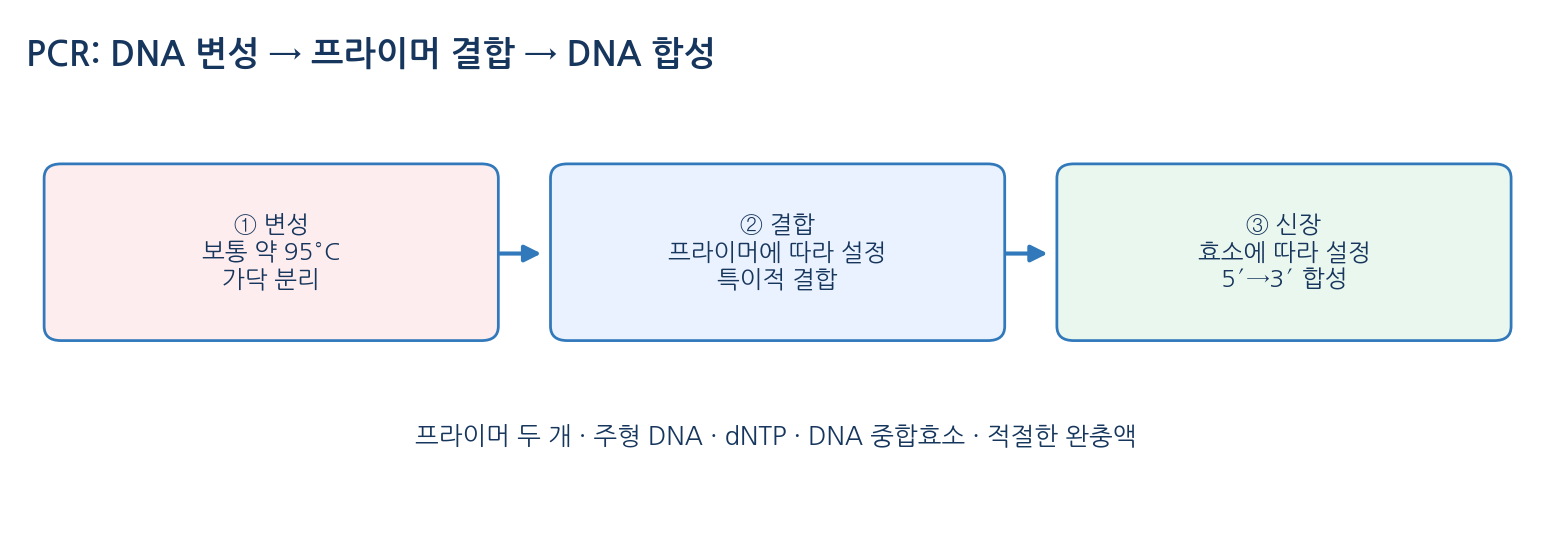
- PCR은 주형 양쪽에 결합하는 두 프라이머와 열에 안정한 DNA 중합효소로 특정 구간을 반복 증폭
- 반응에는 주형·프라이머·dNTP·Mg²⁺·완충액·중합효소가 필요
- 한 주기는 변성 → 어닐링 → 신장의 세 단계
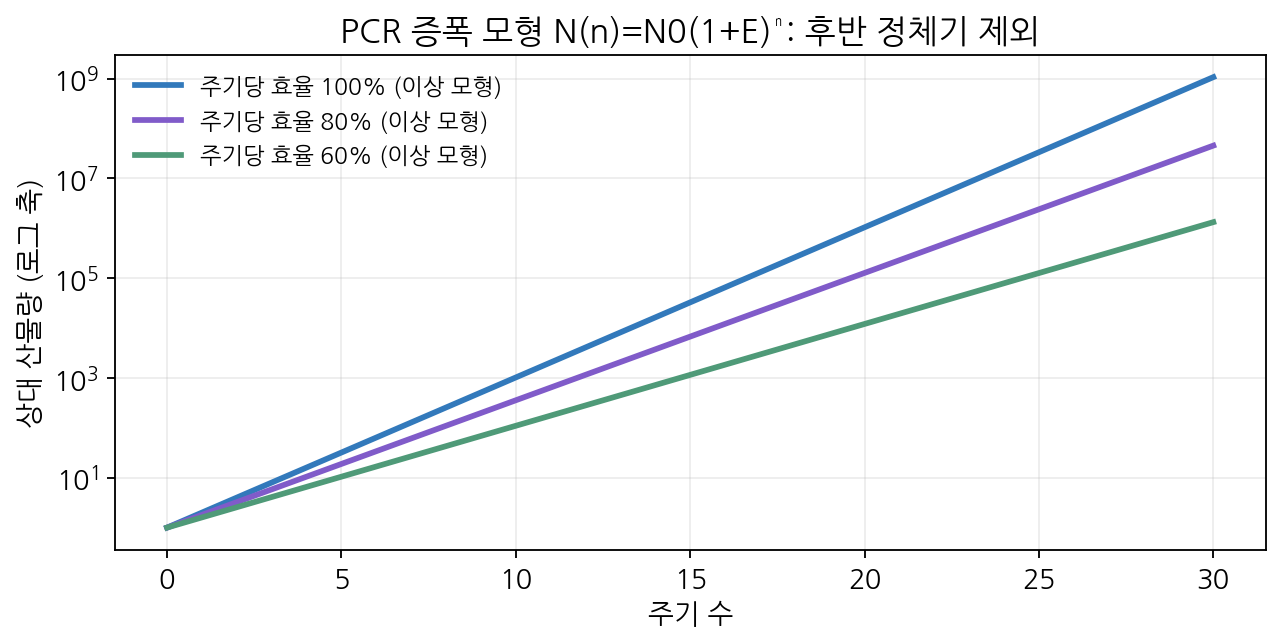
- 이상 조건에서 N_n = N₀·2ⁿ이고 효율 E를 도입하면 N_n = N₀(1+E)ⁿ
- 실제 반응은 효율이 100% 미만이고 산물이 쌓이면 정체기에 접근
- 예: 10분자·20주기면 10,485,760분자, E = 0.80이면 약 1,274,823분자
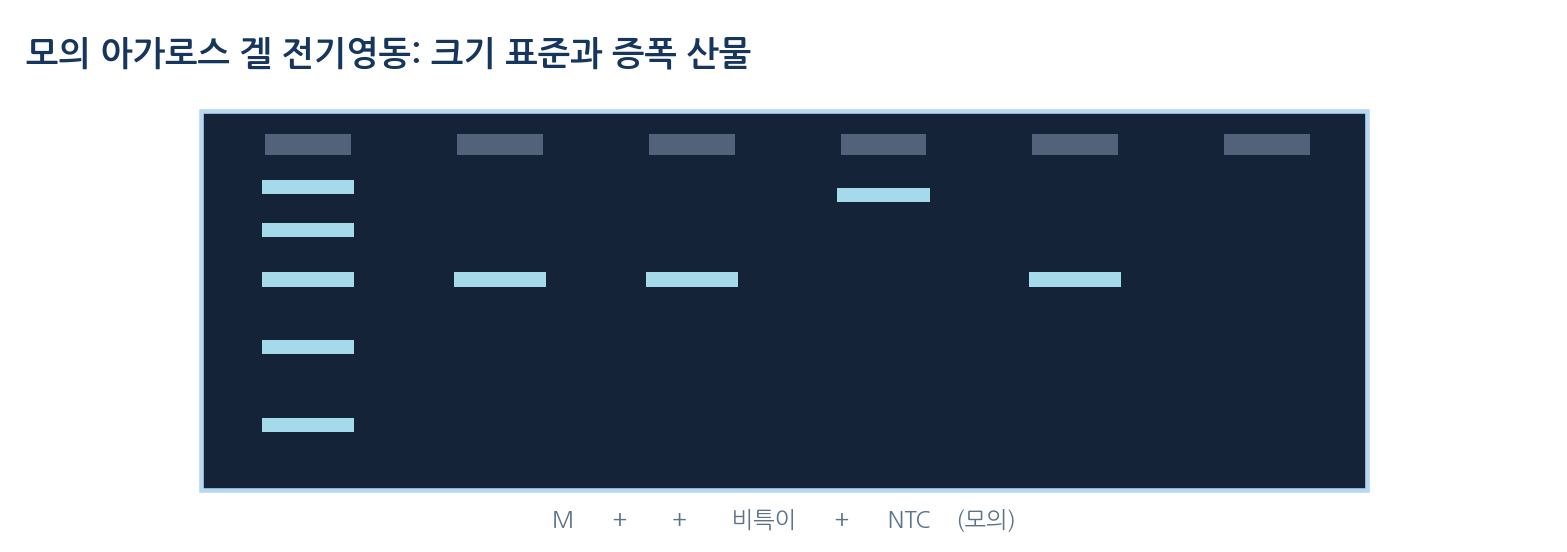
- 양성 대조군은 반응계 작동을, NTC는 오염에 의한 거짓 양성을 탐지
- 예상 크기 밴드는 산물 존재의 단서일 뿐 정확한 서열을 확정하지 않음
- 교차오염 관리와 필요 시 산물 정제·염기서열 확인이 필수
06
긴 DNA 가닥의 염기서열을 분석할 수 있다
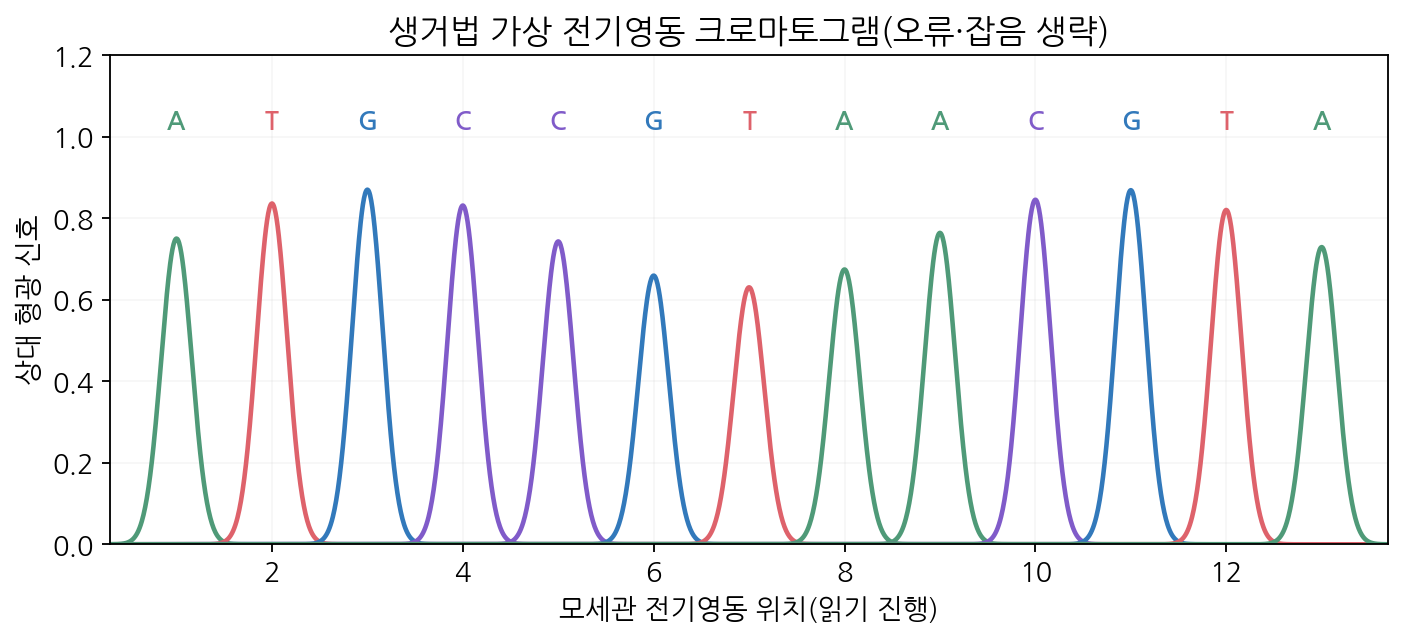
- 생거법에서는 ddNTP가 3′-OH가 없어 삽입되면 다음 인산다이에스터 결합을 만들지 못해 신장이 멈춤
- 길이가 다른 형광 표지 조각을 모세관 전기영동으로 분리해 신호 순서로 서열을 읽음
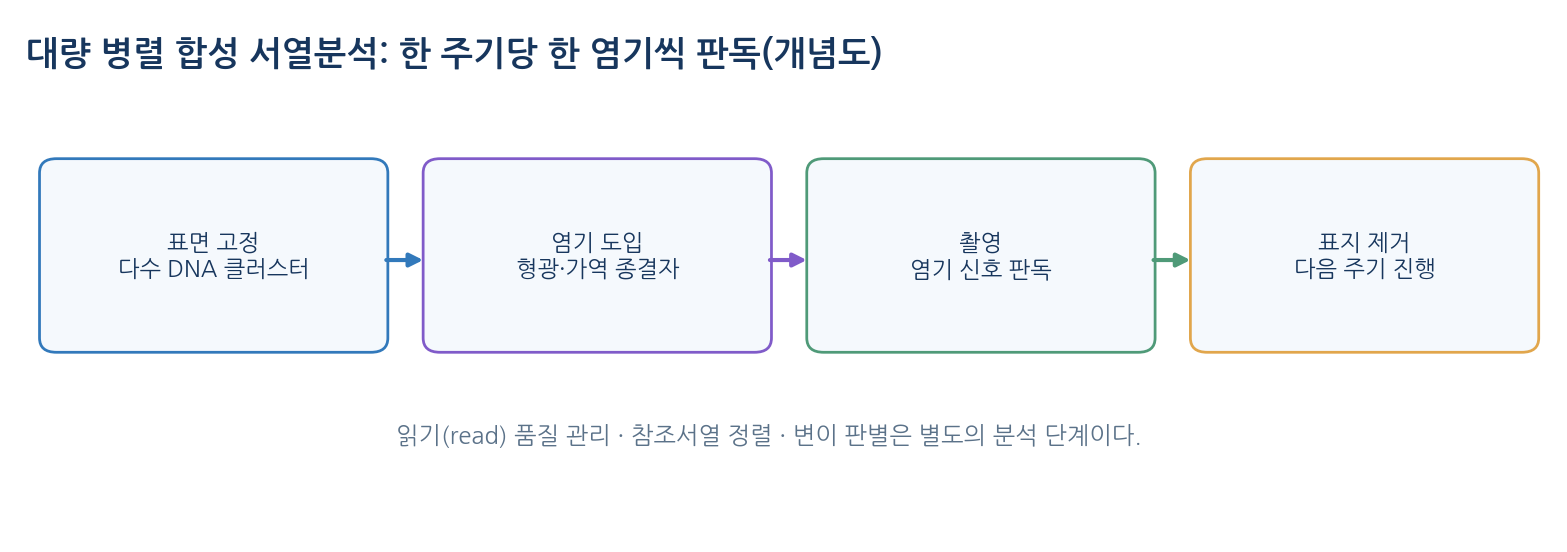
- NGS는 어댑터를 붙인 라이브러리를 만들어 표면에서 증폭한 많은 집단을 동시에 판독
- 가역적 종결자는 한 주기당 한 염기를 넣고 형광을 측정한 뒤 표지와 차단기를 제거
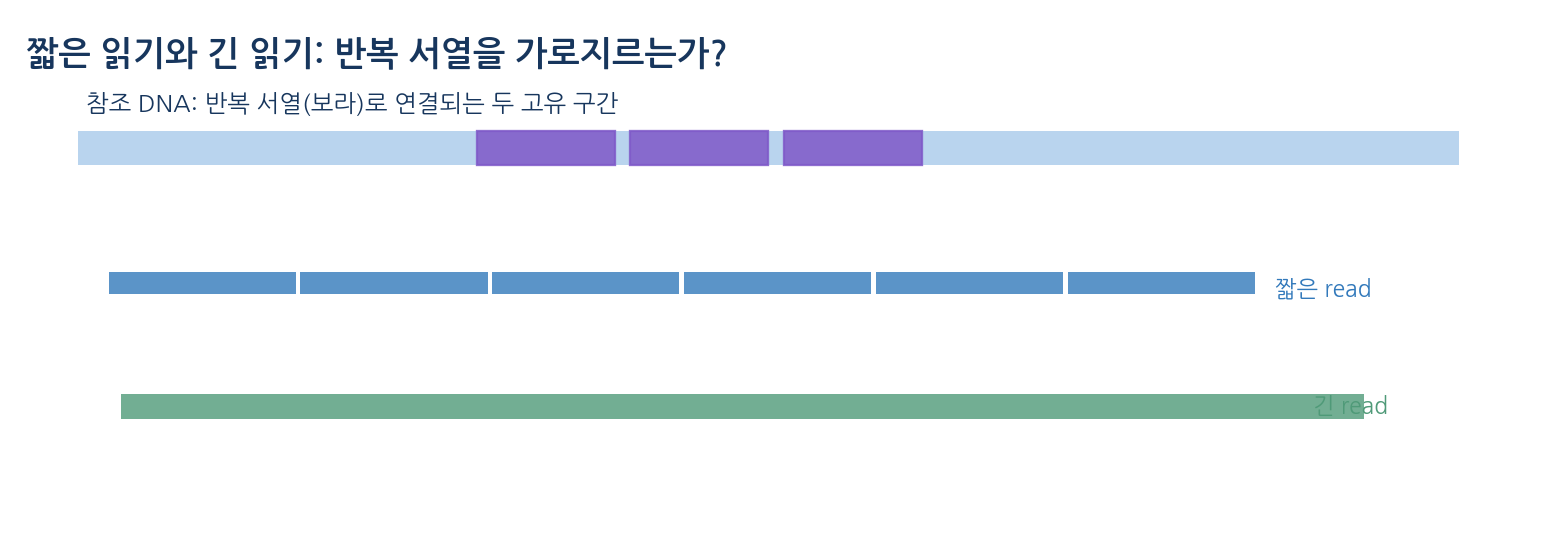
- 짧은 읽기는 반복이 긴 구간에서 어느 반복 위치인지 결정하기 어려움
- 긴 읽기는 한 조각이 반복구간 양옆 고유 서열까지 연결해 조립을 개선
- 긴 읽기라고 해서 개별 염기 오류가 항상 더 적은 것은 아님
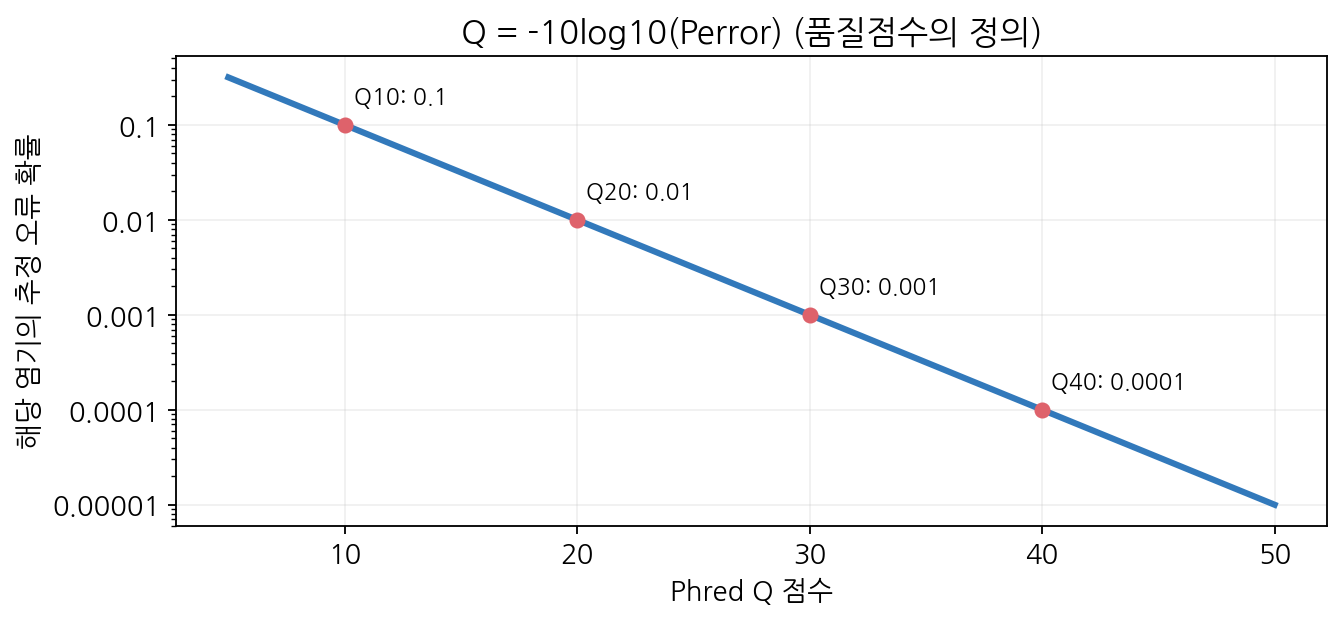
- Phred 품질점수 Q = −10 log₁₀P_error, Q20은 0.01·Q30은 0.001
- 예: Q30이면 1,000염기의 기대 오판독 수는 1개이나 반드시 1개 오류가 있다는 뜻은 아님
07
[별도설명 8-1] 법의학에 있어서 강력한 무기
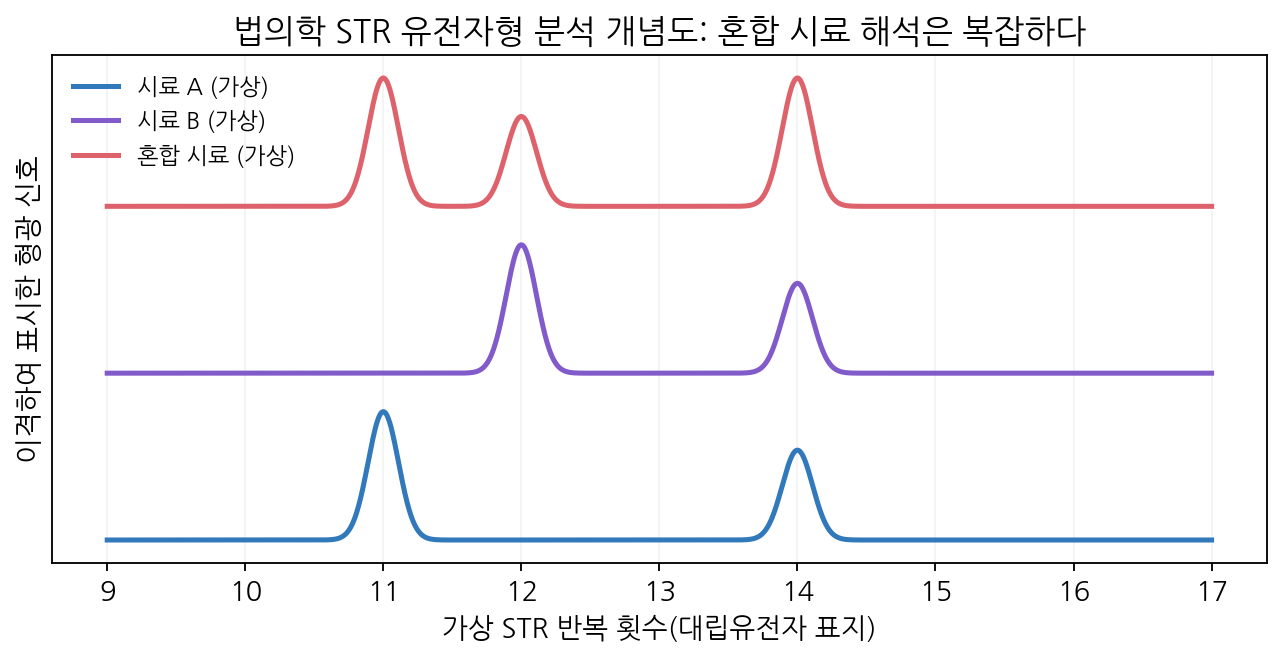
- STR = 짧은 염기서열이 여러 번 반복되는 구간으로 반복 횟수가 개인마다 달라 식별력이 생김
- 법의학에서는 PCR 증폭과 모세관 전기영동으로 대립유전자 길이를 분석
- 단일 좌위의 일치나 일부 피크의 일치만으로 개인을 식별할 수 없음
- 혼합 시료·미량 시료에서는 대립유전자 소실·stutter·오염·2차 전달을 고려해야 함
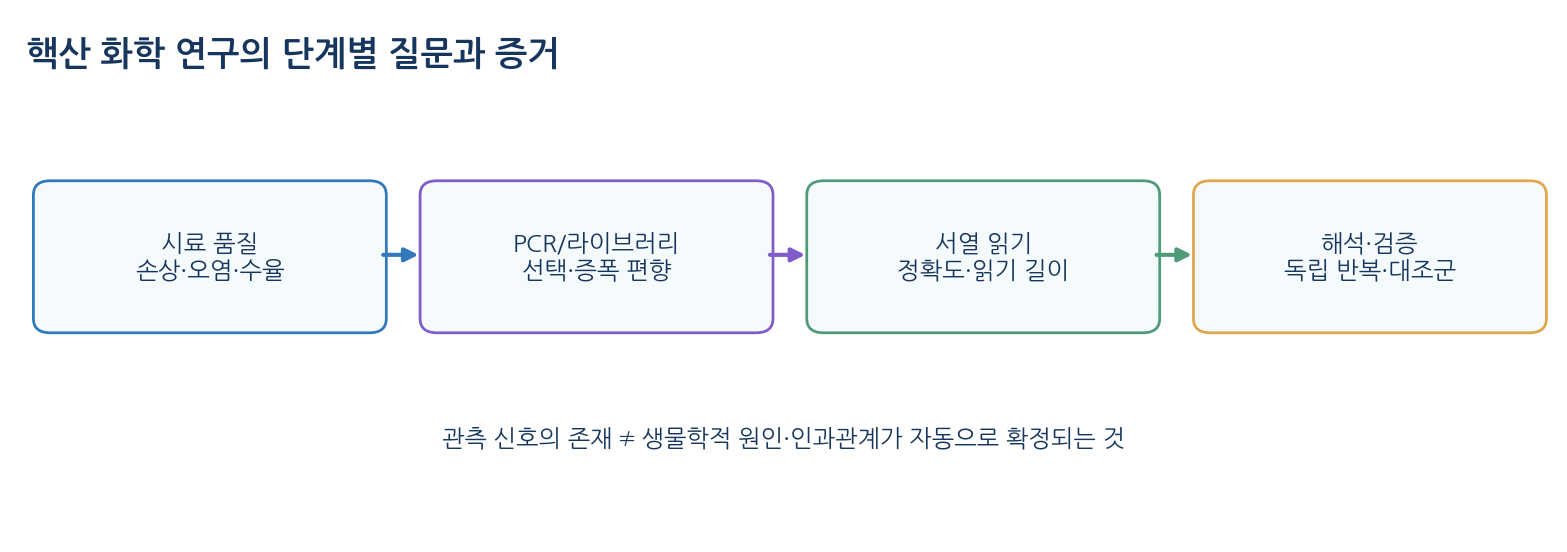
- 유전자형 일치는 누가 어떤 행위를 했는지를 그 자체로 증명하지 않음
- 수사·재판에서는 방법 적합성·시료 기록·인구집단 빈도·통계 해석을 함께 검토
08
유전체 서열분석 기술은 빠르게 발전하고 있다
- 단일 유전자 분석에서 전체 유전체·전사체·단일세포·후성유전 변형으로 범위가 확대
- 짧은 읽기와 긴 읽기는 서로 대체가 아니라 목표에 따른 상호보완적 선택
- 반복 구간·큰 구조 변이는 긴 읽기가, 다수 시료의 표적 변이 탐색은 대량 병렬이 유리
- 방법 선택은 정확도·길이·비용·시료량의 균형으로 결정
참조 자료 · References
| 변수 | 일반적 영향 | 주의할 조건 |
|---|---|---|
| GC 함량 증가 | 비슷한 길이·조건에서 Tm 증가 경향 | 인접 염기쌍 배열에 따라 차이가 있다 |
| 염 농도 증가 | 인산기 반발 차폐로 Tm 증가 경향 | 과도한 염 조건과 특정 이온은 별도 평가 |
| 가닥 길이 증가 | 짧은 이중가닥에서 안정성에 큰 영향 | 긴 DNA와 올리고의 식을 혼용하지 않는다 |
| 불일치 염기쌍 | 국소 안정성 감소 가능 | 불일치 종류·위치에 따라 달라진다 |
| pH 극단화 | 염기 상태와 결합 변화 | 가닥 분리와 골격 손상은 다르다 |
| 화학 변화 | 분자 수준의 변화 | 잠재적 결과 |
|---|---|---|
| 탈퓨린화 | 퓨린–당 N-글리코시드 결합 가수분해 | AP 자리 형성 |
| 탈아미노화 | C→U, 5mC→T | 복제 시 염기 치환 가능성 |
| 산화 | 8-oxoG 등 산화 손상 생성 | 오배합·복구 부담 증가 |
| 자외선 손상 | 인접 피리미딘의 광생성물 | 복제·전사 장애 |
| 알킬화 | 염기에 알킬기가 추가됨 | 특이적 염기쌍 변화 또는 교차결합 |
| 방법 | 직접 얻는 주요 정보 | 대표적인 강점 | 해석상 주의 |
|---|---|---|---|
| PCR + 겔 | 특정 크기의 증폭 산물 | 간단한 표적 검출 | 산물의 정확한 서열은 따로 확인 |
| 생거법 | 길이별 종료 조각의 염기 순서 | 단일 표적 서열 확인 | 혼합·긴 복잡구간 분석에 한계 |
| 짧은 읽기 NGS | 병렬로 얻은 많은 짧은 읽기 | 다수 시료·좌위 동시 분석 | 반복서열·편향·정렬 모호성 |
| 긴 읽기 시퀀싱 | 상대적으로 긴 연결 정보 | 구조 변이·반복 구간 연결 | 데이터 품질·시료 길이 관리 |
| STR 프로필 | 반복 횟수의 대립유전자 신호 | 개체 식별 관련 통계 정보 | 혼합 시료와 증거 강도 해석 |